Microbiote vaginal #11
Par le Pr. Markku Voutilainen
Faculté de médecine de l’Université de Turku ; gastro-entérologie, Hôpital universitaire de Turku, Finlande
Section professionnels de santé
Retrouvez ici votre espace dédiéPar le Pr. Markku Voutilainen
Faculté de médecine de l’Université de Turku ; gastro-entérologie, Hôpital universitaire de Turku, Finlande
Les échecs d’implantation à répétition (EIR) sont définis par l’absence de grossesse clinique après le transfert d’au moins quatre embryons de bonne qualité chez une femme âgée de moins de 40 ans. Des facteurs embryonnaires et utérins ou des maladies systémiques maternelles peuvent être à l’origine des EIR, mais chez certaines femmes, l’étiologie ne peut être identifiée. Les auteurs se sont concentrés sur le microbiote vaginal et le métabolome des femmes présentant des EIR. Ils ont constaté que ces dernières souffraient de dysbiose vaginale et avaient des bactéries plus diversifiées et abondantes avec une augmentation de nombreuses bactéries anaérobies et aérobies qui pourraient être liées, respectivement, à une vaginose bactérienne et à une vaginite aérobie ou à une infection urinaire. À l’inverse, leur microbiote vaginal présentait une diminution du genre Lactobacillus (LB), la quantité de L. iners était réduite et L. crispatus était l’espèce la plus abondante dans le groupe EIR. L’augmentation de la diversité bactérienne vaginale, la déplétion en LB et les modifications métaboliques liées pourraient constituer des biomarqueurs pour prédire le risque d’EIR.
Cette revue résume le rôle joué par le microbiote vaginal dans les infections urinaires (IU). En effet, de plus en plus d’éléments indiquent que le vagin pourrait servir de réservoir aux bactéries uropathogènes et augmenter la prédisposition aux IU. Escherichia coli est la cause la plus fréquente d’IU et peut coloniser le vagin, phénomène pouvant être accentué si la colonisation vaginale par Lactobacillus (LB) est réduite. Certaines bactéries vaginales sont fréquemment détectées dans les urines mais leur caractère uropathogène est sous-évalué car elles sont difficiles à détecter en pratique clinique de routine. Par exemple, la vaginose bactérienne (VB) est caractérisée par la présence de bactéries anaérobies à Gram négatif et d’espèces appartenant aux phyla Actinobacteria et Firmicutes, associée à une réduction de LB, et les patientes atteintes de VB présentent un risque plus élevé d’IU. Gardnerella vaginalis est détectée dans la VB et peut causer une IU aiguë ou récidivante. Les streptocoques du groupe B pourraient être à l’origine à la fois d’une vaginite aérobie et d’une IU. Pour finir, certaines bactéries vaginales pourraient pénétrer dans les voies urinaires et y transiter brièvement, causer une immunomodulation ou des lésions et déséquilibrer les interactions hôte-pathogène influençant ainsi l’issue de l’uropathogenèse.
Retour de congrès
Par le Dr Dragos Ciocan
CCA Service Hépato-gastroentérologie et nutrition, Hôpital Antoine-Béclère, Clamart, France
Malgré la pandémie de Covid-19, nous avons pu profiter cette année d’une version en ligne des Journées francophones d’hépato-gastroentérologie avec l’avantage de pouvoir bénéficier des présentations enregistrées du 3 au 20 juillet 2020. Ces eJFHOD ont réuni 7 924 utilisateurs, et 172 937 pages ont été vues. Comme chaque année, des études originales sur le microbiote intestinal (MI) ont été présentées lors de ce congrès.
Troisième cancer le plus fréquent chez l’homme, le cancer colorectal sporadique (CCR) se développe suite à des interactions entre l’hôte et l’environnement, et le MI pourrait être impliqué [1]. Le Pr Sobhani a présenté les résultats d’une étude qui s’est intéressée aux liens entre les mécanismes épigénétiques favorisés par des bactéries du MI dans la survenue des CCR [2]. Des souris transplantées avec des selles de patients atteints de CCR ont développé des lésions coliques précancéreuses, associées à une augmentation des gènes hyperméthylés. Les donneurs avec un CCR présentaient des anomalies de méthylation de certains gènes promoteurs associées à une dysbiose intestinale. En utilisant les signatures microbiennes et épigénétiques identifiées, une étude pilote (n = 266) a été menée chez l’homme afin de mettre au point un test sanguin pour le diagnostic de CCR. Un index cumulé de méthylation (CMI, mesurant le niveau d’hyperméthylation de 3 gènes) a été identifié comme facteur prédictif de la survenue de CCR. Ces résultats ont été validés dans une cohorte prospective de 1 000 patients. La dysbiose intestinale des patients avec un CMI positif était caractérisée par une augmentation d’espèces bactériennes prométhylatrices. Ces travaux indiquent que la dysbiose intestinale associée au CRC pourrait favoriser la carcinogenèse du côlon via une dérégulation de la méthylation de certains gènes. Le taux cumulé d’hyperméthylation (CMI) et/ou les bactéries pro-méthylatrices pourraient ainsi devenir des marqueurs diagnostiques ou être utilisés dans l’évaluation des effets des traitements modulateurs du MI dans le CCR.
Dans une étude coordonnée par le Pr Seksik, les auteurs ont étudié le rôle de la MAM (molécule anti-inflammatoire du microbiote, produite par Faecalibacterium prausnitzii et diminuée chez les patients atteints de la maladie de Crohn, MC [3]) comme biomarqueur de dysbiose intestinale et aide au diagnostic de MC. Les auteurs montrent que la perte de MAM est associée au diagnostic de la MC. Cette étude préliminaire réalisée sur un petit nombre des patients (24 patients en poussée, 24 en rémission et 12 témoins sains) ouvre la voie du diagnostic de la MC basé sur le MI, mais ces résultats préliminaires devront être validés dans des cohortes indépendantes.
On sait que les bactéries détectent et répondent à des signaux environnementaux (aptitude appelée « Quorum Sensing »). Parmi les molécules de ce système, la 3-oxo-C12:2 est diminuée chez les patients atteints de maladies inflammatoires chroniques de l’intestin (MICI), et cette diminution semble corrélée à la dysbiose intestinale observée [4]. Dans une étude présentée par D. Aguanno, les auteurs ont étudié l’impact de cette molécule sur les cellules épithéliales de l’intestin et ont montré que celle-ci ne modifie pas la perméabilité paracellulaire mais atténue les altérations des jonctions serrées induites par les cytokines pro-inflammatoires. Dans une deuxième étude, Coquant et al. montrent que la 3-oxo-C12:2 exerce un effet anti-inflammatoire sur les cellules immunitaires, en partie médié par le récepteur T2R138. Ainsi, cette molécule pourrait avoir des effets protecteurs sur la barrière intestinale, moduler la réponse inflammatoire et donc représenter une nouvelle piste thérapeutique dans les MICI.
Article commenté - Rubrique enfant
Par le Pr Emmanuel Mas
Gastro-entérologie et nutrition, Hôpital des Enfants, Toulouse, France
Le microbiote des premières semaines de vie joue un rôle crucial dans la santé en agissant comme une barrière contre l’invasion des pathogènes et en maintenant l’homéostasie immunitaire intestinale. Une altération de l’écologie du microbiote fécal (MF) a été signalée chez des nouveau-nés atteints d’ischémie intestinale. L’objectif de cette étude était de décrire, chez ces patients, le MF, le microbiote des muqueuses (MM) et l’immunité des muqueuses.
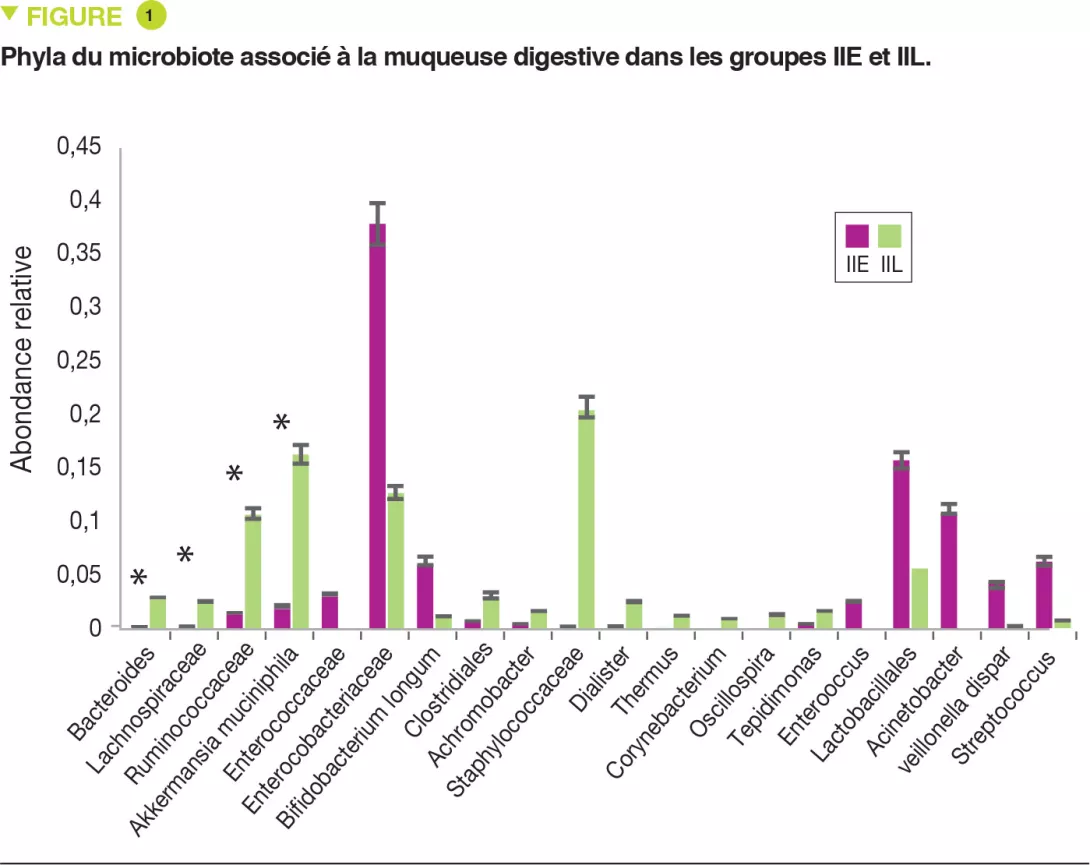
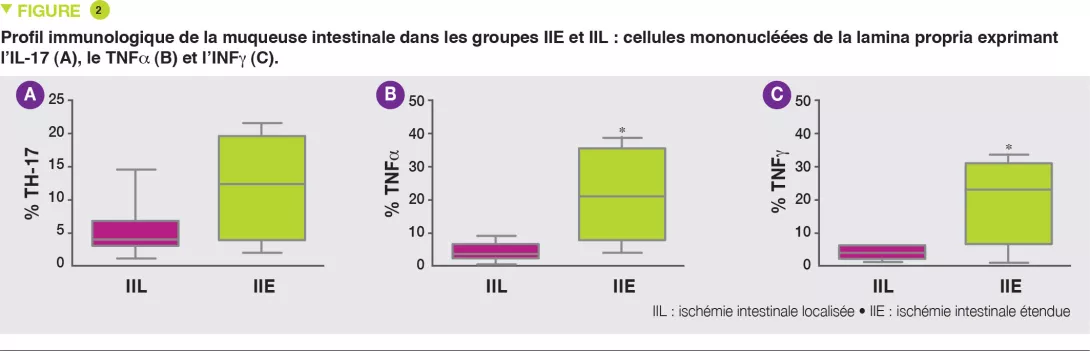
Quatorze nouveau-nés ont subi une résection intestinale en raison d’une ischémie intestinale. Sur la base de la gravité des lésions, deux groupes ont été identifiés : ischémie intestinale étendue (IIE) et ischémie intestinale localisée (IIL). Cette étude a montré la variation du MF et du MM dans les groupes IIE et IF. [1]
Le microbiote intestinal des nouveau-nés est caractérisé par une plus faible diversité bactérienne et une proportion plus importante de bactéries pathogènes. En outre, leur système immunitaire intestinal est immature. Ces deux facteurs altèrent la barrière épithéliale intestinale et favorisent la production de médiateurs pro-inflammatoires.
L’entérocolite ulcéro-nécrosante (ECUN) est une atteinte ischémique et inflammatoire digestive qui affecte les nouveau-nés prématurés. La physiopathologie de l’ECUN est encore mal connue mais une dysbiose intestinale est présente, de même qu’un processus inflammatoire. L’utilisation d’antibiotiques et d’anti-acides favorise la dysbiose et augmente aussi le risque de survenue d’ECUN.
D’autres atteintes ischémiques et inflammatoires peuvent aussi affecter les nouveau- nés, comme le volvulus du grêle et les perforations localisées digestives.
Cette étude pilote monocentrique a caractérisé le MF et le MM ainsi que les cellules mononucléées de la lamina propria et les cytokines pro-inflammatoires de deux groupes de nouveau-nés à terme ou prématurés. Sept enfants avaient une ischémie intestinale étendue (IIE) (5 ECUN, 1 volvulus du grêle et 1 ischémie colique totale) et 7 enfants une ischémie intestinale localisée (IIL) (4 perforations isolées et 3 atrésies intestinales). Le MF de 9 nouveau-nés à terme a été utilisé comme contrôle. Le MM des nouveau-nés ayant une IIE, en comparaison de ceux ayant une IIL, contient : plus de Proteobacteria (p = 0,049) et moins de Bacteroidetes (p = 0,007) et de Verrucomicrobia (p = 0,01) (Figure 1) ; moins de Bacteroides, Lachnospiracee, Ruminococcaceae et Akkermansia muciniphila (p < 0,05).
Le MF a une diversité (index de Shannon) plus faible chez les IIE que chez les IIL (p = 0,01). L’abondance relative est similaire au MM entre IIE et IIL pour les Proteobacteria et Firmicutes (p < 0,05). De même, on retrouve une distribution bactérienne avec plus d’Enterobacteriaceae chez les IIE et plus de Ruminococcaceae, Bacteroides, Lachnospiracee et Staphylococcaceae chez les IIL.
Le groupe IIE a une augmentation des lymphocytes B, T et NK (Natural Killer), notamment des lymphocytes T CD3+, TH17 (Figure 2A) et une diminution des lymphocytes T régulateurs (Tregs), avec une augmentation des cellules exprimant le TNFa (Figure 2B) et l’INFg (Figure 2C).
L’entérocolite ulcéro-nécrosante est une pathologie digestive sévère qui affecte les nouveau-nés prématurés.
Les anomalies du microbiote fécal et du microbiote associé à la muqueuse digestive pourraient intervenir dans le processus inflammatoire et ischémique de l’ECUN.
Cette étude pilote confirme que la faible diversité bactérienne et la prédominance d’Enterobacteriaceae sont des facteurs de risque d’ECUN, de même que la réduction des taux d’A. muciniphila. Une correction de cette dysbiose pourrait permettre de modifier le déséquilibre TH17/Tregs et de réduire la production de médiateurs de l’inflammation (TNFa et INFg).
Le microbiote fécal et le microbiote associé à la muqueuse digestive ont des caractéristiques spécifiques chez les prématurés ayant des lésions ischémiques. Des études complémentaires sont nécessaires pour déterminer le rôle de ces bactéries dans le processus inflammatoire et ischémique de l’ECUN.
Article commenté - Rubrique Adulte
Par le Pr Harry Sokol
Gastro-entérologie et nutrition, Hôpital Saint-Antoine, Paris, France
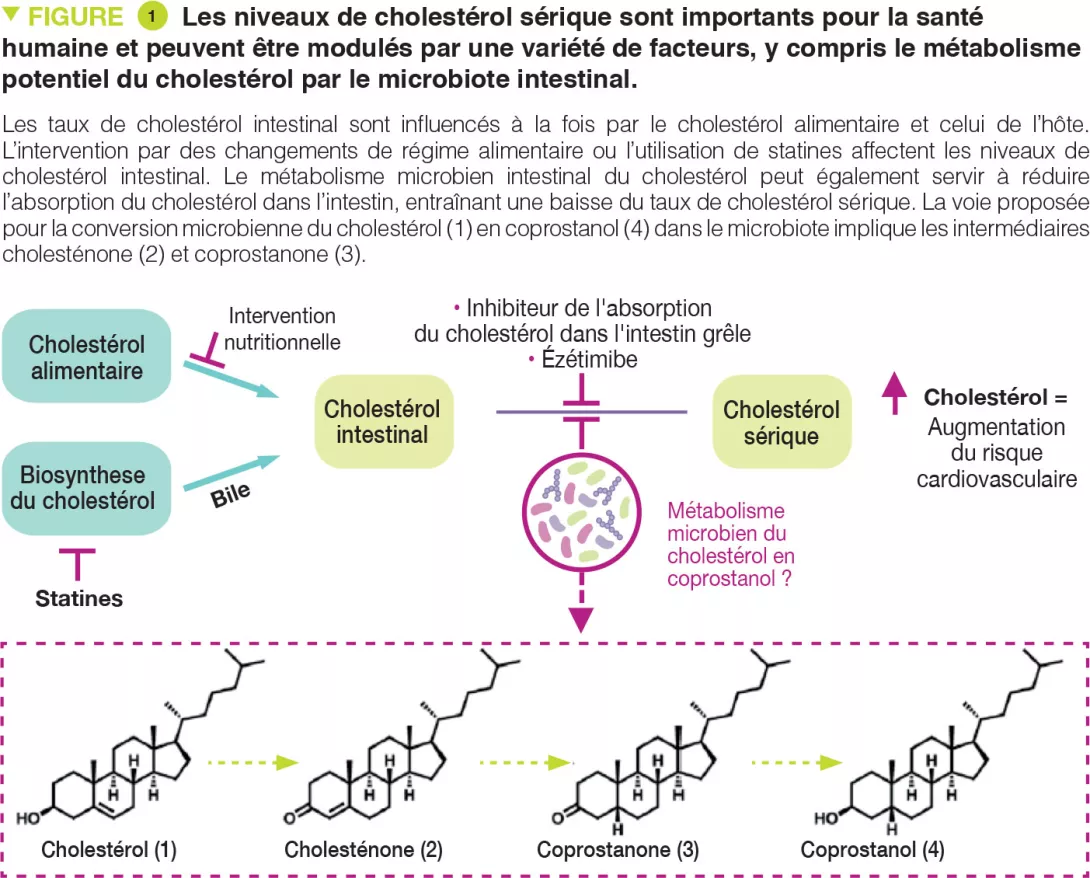
Le microbiome humain possède des capacités métaboliques étendues, mais notre compréhension des mécanismes reliant les bactéries intestinales au métabolisme humain reste limitée. Dans leur article, les auteurs se sont concentrés sur la conversion par le microbiote intestinal du cholestérol en coprostanol, un stérol mal absorbé, pour l’identification d’enzymes fonctionnelles et de bactéries impliquées dans ce processus. En intégrant des données appariées de métagénomique et de métabolomique provenant de cohortes existantes avec des connaissances et des expériences biochimiques, les auteurs proposent de prédire et valider l’existence d’un groupe de cholestérol déshydrogénases bactériennes qui contribuent à la formation du coprostanol. Ces enzymes sont codées par les gènes ismA dans un groupe de bactéries non cultivées, qui sont répandues dans des cohortes humaines géographiquement diverses. Les individus hébergeant les bactéries intestinales contribuant à la formation du coprostanol ont des taux de cholestérol fécal significativement plus bas et un cholestérol total sérique inférieur avec des effets comparables à ceux attribués aux variations des gènes de l’homéostasie lipidique. Ainsi, le métabolisme du cholestérol par ces bactéries pourrait jouer un rôle important dans la réduction des concentrations intestinales et sériques de cholestérol, ayant un impact direct sur la santé humaine. [1]
Le cholestérol est une molécule biologique clé qui fonctionne comme un composant structurel de toutes les membranes cellulaires animales et est un précurseur des hormones stéroïdes, de la vitamine D et des acides biliaires. Deux sources principales de cholestérol influencent sa concentration dans le sérum : le cholestérol endogène synthétisé dans le foie et le cholestérol exogène dérivé de composants alimentaires d’origine animale (Figure 1). Le cholestérol synthétisé dans les hépatocytes est transporté vers la vésicule biliaire et est ensuite sécrété dans l’intestin grêle avec d’autres sels biliaires. Dans l’intestin, le cholestérol biliaire (~ 1-2 g/jour) se mélange au cholestérol alimentaire (~ 0,2-0,4 g/jour dans le régime alimentaire américain moyen), et les deux sources sont finalement transportées dans les entérocytes pour être conditionnées en particules de lipoprotéines et sécrétées dans le plasma. L’hypercholestérolémie est un facteur de risque des maladies cardiovasculaires (MCV), qui sont à l’origine d’un quart de tous les décès dans les pays industrialisés.
La réduction du transport du cholestérol dans l’intestin est une stratégie cliniquement validée pour abaisser le taux de cholestérol sérique. Une gamme de bactéries intestinales métabolisent et modifient les molécules alimentaires et dérivées de l’hôte dans l’intestin grêle. Étant donné que les deux sources de cholestérol traversent cet environnement, le microbiote intestinal pourrait influencer les taux de cholestérol sérique. En effet, le transfert de microbiote de donneurs humains avec des taux sériques élevés de cholestérol peut transmettre ce phénotype hyperchlolestérolémique chez la souris [2, 3]. D’autres études ont rapporté que l’administration d’espèces bactériennes particulières peut avoir des effets hypocholestérolémiants [4]. Cependant, les mécanismes précis sous-tendant ces observations sont actuellement inconnus. Le microbiote intestinal pourrait exercer des effets hypocholestérolémiants en métabolisant le cholestérol intestinal en coprostanol (Figure 1), qui réduirait la quantité de cholestérol absorbée par l’intestin.
On sait depuis le début des années 1900 que cette transformation dépendante du microbiote se produit chez l’homme. Plusieurs bactéries intestinales générant du coprostanol avec des caractéristiques physiques et biochimiques similaires ont été signalées à partir de diverses sources, notamment des rats, des babouins et des humains. Cependant, la plupart de ces souches ne sont actuellement pas disponibles et n’ont jamais été séquencées. Les premiers travaux ont montré que la formation de coprostanol par ce groupe de bactéries intestinales passe par une voie de réduction indirecte impliquant l’oxydation initiale du cholestérol (1) en cholesténone (2), suivie de la réduction de la double liaison D4,5 pour former la coprostanone (3), et re-réduction ultérieure de la cétone pour générer du coprostanol (4) (Figure 1). Les enzymes bactériennes responsables de ce métabolisme n’ont jamais été identifiées. Plus récemment, d’autres rapports ont impliqué d’autres bactéries intestinales phylogénétiquement diverses dans la formation du coprostanol [5]. Alors que les efforts visant à élucider comment le métabolisme microbien intestinal du cholestérol affecte le taux de cholestérol sérique humain s’étendent sur plus de 100 ans, les éléments mécanistiques sont restés insaisissables en raison d’une compréhension limitée des bactéries intestinales, gènes et enzymes responsables de la formation du coprostanol.
Certaines bactéries du microbiote intestinal humain possèdent des enzymes, de la famille ismA, capables de dégrader le cholestérol.
La présence d’espèces ismA + dans le microbiote intestinal est associée à une diminution du cholestérol fécal et sérique chez l’homme.
L’effet des espèces ismA + sur le cholestérol sérique est comparable à celui de la génétique humaine.
Les auteurs ont utilisé une stratégie multidisciplinaire pour la découverte d’enzymes bactériennes intestinales. Cette stratégie, basée sur des corrélations entre données de métagénomique et de métabolomique provenant de cohortes humaines existantes, a permis d’identifier et de caractériser une famille étendue d’enzymes de cholestérol déshydrogénase à partir d’un groupe de bactéries intestinales non cultivées qui interviennent dans le métabolisme du cholestérol en coprostanol. Tout d’abord, l’enzyme responsable de la première étape de dégradation du cholestérol, nommé ismA, a été identifiée dans Eubacterium coprostanoligenes, une bactérie déjà connue pour cette fonction. L’analyse des données de séquençages sur cohortes humaines a ensuite permis d’identifier des enzymes homologues dans un groupe de bactéries anaérobies non cultivées. La présence de ces gènes ismA dans le microbiome était associée à la présence de coprostanol dans les selles et à une réduction fécale des taux de cholestérol. Enfin, pour démontrer le potentiel de ces bactéries à influencer la santé humaine, les auteurs montrent que la présence de gènes ismA dans les métagénomes humains est associée à une diminution des concentrations de cholestérol total dans le sérum, comparable aux effets observés à partir de variants des gènes humains impliqués dans l’homéostasie lipidique.
Ensemble, ces résultats confirment le rôle du métabolisme bactérien intestinal dans la modulation des niveaux de cholestérol de l’hôte dans l’intestin mais, plus important, aussi au niveau systémique. Ces travaux ouvrent la voie à l’utilisation du microbiote intestinal comme biomarqueur prédictif du risque d’hypercholestérolémie et jettent les bases d’interventions thérapeutiques ciblées sur le microbiote.
Cette étude met en lumière le rôle du microbiote intestinal dans la dégradation du cholestérol avec des effet sur le niveau sérique de cholestérol. Le microbiote intestinal pourrait prochainement être une cible pour les thérapies hypocholestérolémiantes.
Synthèse
Par le Dr François Trottein
Centre d’Infection et d’Immunité de Lille, Inserm U1019, CNRS UMR 9017, Université de Lille, CHU Lille, Institut Pasteur de Lille, France
La nouvelle maladie à coronavirus 19 (COVID-19) nous rappelle que les interactions entre le microbiote intestinal et le système immun itaire sont essentielles lors des infections virales des voies respiratoires. Les virus respiratoires peuvent déclencher des symptômes gastro-intestinaux, mettant en évidence le rôle de l’axe poumon-intestin dans la maladie. Des études cliniques et l’exploitation de modèles expérimentaux indiquent que les infections respiratoires aiguës d’origine virale modifient la composition et les fonctions du microbiote intestinal. Dans cette revue, nous examinons ces changements majeurs et discutons des causes potentielles de la dysbiose intestinale induite lors d’infections respiratoires virales. Nous présentons également les conséquences de la dysbiose intestinale sur la maladie. Enfin, nous suggérons des stratégies interventionnelles visant à cibler le microbiote intestinal afin de r éduire la sévérité des maladies respiratoires d’origine virale.
Les infections des voies respiratoires d’origine virale constituent une préoccupation majeure à l’échelle planétaire. En effet, elles entraînent des problèmes considérables sur les plans socio-économique et sanitaire. Malgré des campagnes vaccinales et les traitements antiviraux, l’infection par le virus grippal (influenza) reste la plus impactante quant au nombre d’individus infectés (5 à 10 % de la population mondiale) et de décès (> 600 000 par an). Parallèlement aux épidémies annuelles, la grippe est également responsable de pandémies tous les 10 à 20 ans. La plus connue est la grippe espagnole de 1918- 1919 (50 millions de décès), la plus récente est la grippe pandémique de 2009 à H1N1 (surmortalité de 400 000 décès) [1]. Les pandémies ne se limitent pas à la grippe, comme en témoigne l’exemple de la COVID-19 [2]. La fréquence accrue des pandémies survenues au cours des dernières décennies est particulièrement préoccupante. Ce phénomène s’explique en partie par les changements climatiques et les pratiques humaines.
Le microbiote intestinal joue un rôle crucial en santé humaine et il est déterminant dans le contrôle des infections, dont les infections respiratoires [3, 4]. De nombreux facteurs peuvent modifier la diversité et la composition du microbiote intestinal, conduisant à une dysbiose. Parmi ces facteurs, des situations pathologiques telles que des infections et des troubles inflammatoires ou métaboliques chroniques peuvent entraîner une profonde modification de la composition du microbiote intestinal et de sa fonction. La dysbiose intestinale influence l’évolution des maladies, même celles affectant d’autres organes comme le poumon [3, 4]. Nous récapitulons ci-dessous les effets des infections respiratoires aiguës d’origine virale sur le microbiote intestinal.
Des études chez l’homme ont montré la présence d’une dysbiose intestinale lors de l’infection grippale. L’abondance relative d’Actinobacteria, Erysipelotrichea, Clostridia et des producteurs de butyrate (familles des Lachnospiraceae et Ruminococcaceae) diminuent chez les patients H1N1. En revanche, les agents pathogènes opportunistes tels que Escherichia-Shigella et Prevotella se développent [5]. Dans des modèles expérimentaux (souris), une dysbiose intestinale transitoire survient également, avec un pic à 5 à 7 jours après l’infection [6-9]. On observe des changements aux niveaux taxonomiques sans modification de la diversité alpha. L’infection réduit la croissance de bactéries bénéfiques pour la santé telles que Lactobacilli ou Bifidobacteria, et des bactéries filamenteuses segmentées. De nombreuses espèces capables de transformer par fermentation les fibres alimentaires en acides gras à chaîne courte (AGCC) sont affectées. La production des AGCC chute drastiquement pendant l’infection grippale [9]. La diminution de la fréquence relative des bactéries commensales bénéfiques s’accompagne d’une prolifération des bactéries délétères, notamment Gammaproteobacteria (Escherichia coli) et Verrucomicrobia (du genre Akkermansia) et Ruminococcus, ces dernières étant capables de dégrader le mucus intestinal. Des travaux récents montrent que l’infection par le SARS-CoV-2 (l’agent de la COVID-19) déclenche également des modifications du microbiote intestinal chez l’homme avec notamment une réduction de la fréquence des producteurs de butyrate tels que plusieurs genres bactériens appartenant aux familles Ruminococcaceae et Lachnospiraceae (Roseburia) [5, 10]. En revanche, une proportion relative significativement plus élevée de bactéries pathogènes opportunistes comprenant Streptococcus (de la classe Bacilli), Rothia et Actinomyces a été observée. Il convient de noter qu’une prolifération de pathogènes opportunistes fongiques (Aspergillus et Candida spp.) a également été décrite chez les patients atteints de COVID-19 [11]. De manière générale, les infections respiratoires d’origine virale entraînent un appauvrissement des bactéries commensales bénéfiques et une augmentation des bactéries opportunistes délétères. Les changements putatifs de la structure du microbiote intestinal, de sa composition et de son activité fonctionnelle pourraient constituer des biomarqueurs de la sévérité de la maladie.
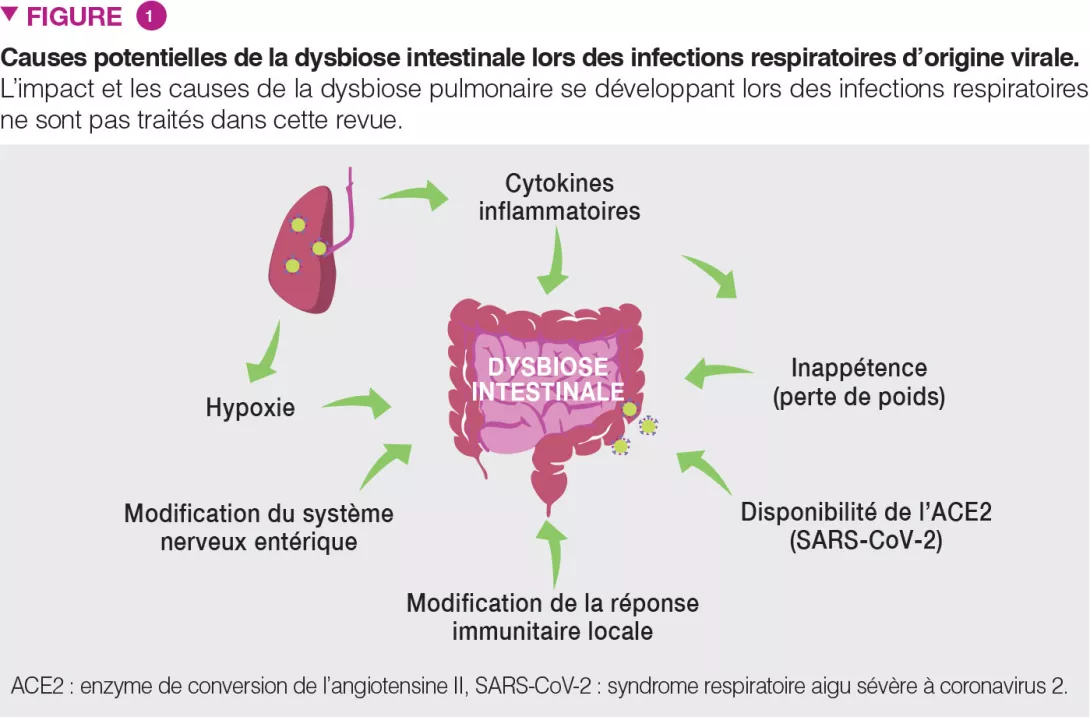
Les causes de la dysbiose intestinale survenant lors des infections respiratoires d’origine virale sont probablement multiples. Elles peuvent comprendre la libération de cytokines inflammatoires et la réduction de la prise alimentaire (Figure 1). L’infection induit une perte de poids importante due à une perte de l’appétit. Des expériences de transfert de flore fécale indiquent clairement qu’une baisse rapide de l’absorption de nourriture reproduit les modifications du microbiote intestinal observées lors de la grippe [8]. Des preuves récentes suggèrent un rôle du TNFa dans la dysbiose associée à l’inappétence lors d’infections respiratoires d’origine virale [12]. Les interférons de type I et de type II, essentiels pour assurer la réponse antivirale de l’hôte, jouent également un rôle dans la dysbiose intestinale [5,6].
L’hypoxie (une caractéristique de l’infection respiratoire aiguë d’origine virale), les modifications au niveau du système nerveux entérique et la dérégulation de la réponse immunitaire locale pourraient aussi participer à la dysbiose intestinale [13] (Figure 1). Dans le cas de la COVID-19, parallèlement à ces mécanismes, la réplication virale locale est susceptible de jouer un rôle dans la dysbiose intestinale. L’enzyme de conversion de l’angiotensine II (ACE2), le récepteur du SARS-CoV-2, est essentielle pour maintenir l’écologie microbienne de l’intestin. Il a été montré que l’infection par le SARS-CoV-2 altère l’expression d’ACE2, ce qui pourrait perturber la composition et les fonctions du microbiote intestinal [13].
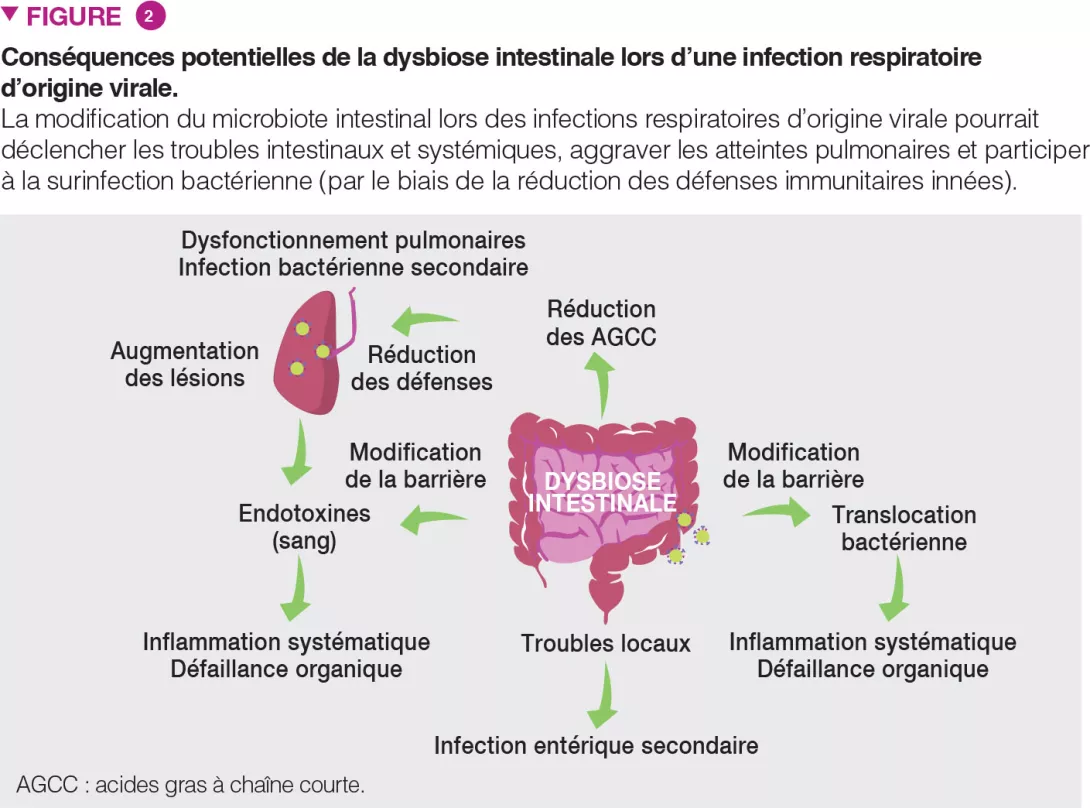
La dysbiose intestinale observée lors des infections respiratoires d’origine virale a des conséquences locales et distales. Elle pourrait contribuer de façon importante à la sévérité de la maladie et à une évolution fatale (Figure 2). Les patients présentant une infection respiratoire d’origine virale peuvent développer des symptômes de type gastro-entérite tels que des douleurs abdominales, des nausées, des vomissements et des diarrhées. Les modifications du microbiote intestinal peuvent expliquer ces troubles. Il est également probable que la modification du microbiote intestinal joue un rôle dans l’inflammation locale et dans la rupture de l’intégrité de la barrière intestinale [6]. Cette rupture de barrière pourrait augmenter les concentrations d’endotoxines dans le sang, déclenchant une inflammation, une surproduction de cytokines et des dysfonctionnements pulmonaires [14]. Les infections respiratoires aiguës d’origine virale peuvent entraîner des infections entériques secondaires et une septicémie. La dysbiose intestinale et la diminution des AGCC pourraient être importantes dans ce contexte. En effet, les AGCC jouent un rôle essentiel dans l’homéostasie, l’intégrité de la barrière intestinale et le contrôle des agents pathogènes entériques [15]. Parallèlement aux troubles locaux, nos données récentes montrent que la dysbiose intestinale peut entraver à distance les défenses de l’hôte au niveau pulmonaire [9] (Figure 2). À l’homéostasie, le microbiote intestinal arme les poumons contre les infections bactériennes, en partie en renforçant l’activité bactéricide des macrophages alvéolaires [16].
Pendant une grippe, cet axe est modifié et des bactéries opportunistes envahissent les poumons. Cela entraîne une surinfection bactérienne, une cause majeure de décès lors des épidémies et pandémies grippales [1]. Nous avons montré que la réduction de la production d’acétate (un AGCC majeur) par le microbiote intestinal est en partie responsable de cet effet [9]. Pour conclure, la dysbiose provoquée par l’infection respiratoire virale pourrait participer aux symptômes gastro-intestinaux et à la sévérité de la maladie, dont les surinfections bactériennes. Pouvons-nous exploiter l’axe intestin-poumon pour mieux contrôler la sévérité des infections respiratoires virales et réduire le taux de mortalité ?
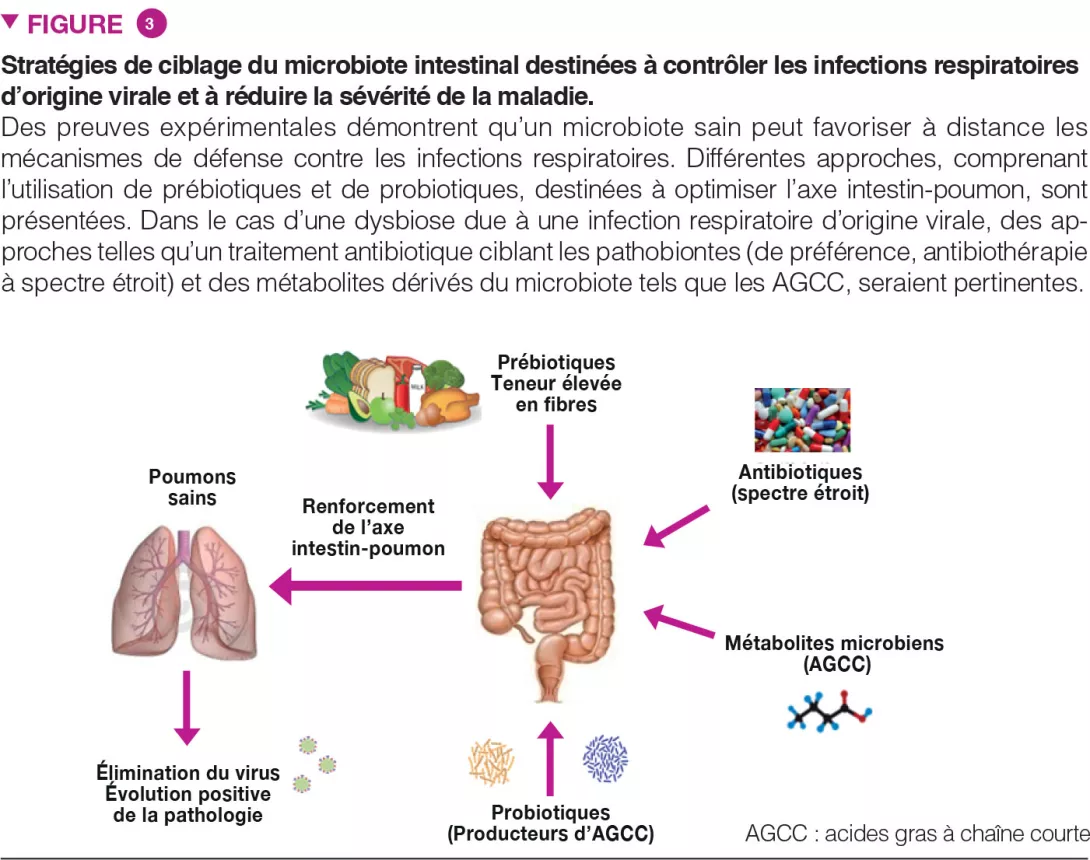
Le microbiote intestinal est essentiel dans les défenses pulmonaires contre les infections respiratoires. Des stratégies interventionnelles ciblant les bactéries commensales de l’intestin pourraient donc être développées pour armer de façon préventive les poumons contre les agents pathogènes. Cette approche permettrait de protéger le microbiote des perturbations associées aux infections virales (Figure 3). Cela est particulièrement vrai chez les individus qui présentent un déséquilibre général du microbiote intestinal, tels que les personnes âgées et les individus présentant des comorbidités, plus sensibles aux infections.
Des approches telles que (i) des compléments alimentaires enrichis en fibres végétales destinés à nourrir nos micro-organismes bénéfiques et (ii) la supplémentation en probiotiques pourraient être pertinentes. Ces stratégies, en particulier lorsqu’elles sont personnalisées (c’està- dire basées sur l’analyse du microbiote intestinal dans la population « à risque ») pourraient améliorer les paramètres cliniques et accélérer la récupération des patients souffrant d’infections virales. Les probiotiques tels que certaines bifidobactéries et Lactobacillus spp. peuvent réduire la gravité de la grippe bien que les mécanismes soient encore peu compris [17]. Sujet d’actualité, une étude récente a montré qu’une bactériothérapie orale, en combinaison avec le traitement médicamenteux classique, pourrait améliorer le devenir des patients atteints de la COVID-19 [18].
L’axe intestin-poumon est important dans les mécanismes de défense contre les infections respiratoires. Ces dernières peuvent modifier la composition et la fonction du microbiote intestinal et ainsi contribuer à la sévérité de la maladie. Le microbiote intestinal représente donc une cible de choix pour prévenir et limiter la gravité des infections respiratoires. Les moyens d’intervention comprennent l’apport raisonné de fibres végétales et de probiotiques.
Synthèse
Par le Dr. Dorota Czerucka
Biologie médicale, Équipe écosystèmes et immunité, Centre scientifique de Monaco, Monaco
Les êtres vivants ont évolué depuis des millions d’années dans des environnements complexes occupés par des écosystèmes microbiens, et ont ainsi forgé des relations symbiotiques régulées par le système immunitaire. Les nouvelles techniques de séquençage ont révolutionné nos connaissances et ont permis de mettre en évidence que chaque individu héberge un microbiote qui lui est propre, ainsi que son rôle dans la physiologie de l’hôte et de nombreuses maladies telles que les infections. Le dialogue entre le microbiote intestinal et le système immunitaire débute dès la vie foetale. L’organisation spécifique du microbiote – séparé de l’hôte par une monocouche cellulaire – pose un défi particulier pour le système immunitaire, dont le rôle est de reconnaître le « non-soi » comme un potentiel signe d’infection pour initier les cascades immunitaires. Par conséquent, les échanges continuels avec le microbiote ont un impact considérable sur le système immunitaire de l’hôte. La réponse immunitaire, qui doit tolérer le microbiote, a également un impact sur la composition et la fonction du microbiote. Ainsi, les échanges bidirectionnels et constants entre ces deux entités façonnent à la fois l’immunité de l’hôte et le microbiote intestinal pour protéger des infections et de nombreuses pathologies.
Le microbiote intestinal constitue une première barrière pour protéger la muqueuse intestinale des pathogènes. Cet écosystème complexe habite de manière stable le tractus gastro-intestinal et limite l’accès aux niches de l’intestin ainsi qu’aux nutriments nécessaires à la multiplication des bactéries exogènes à celui-ci par le phénomène de « résistance à la colonisation » [1] (Figure 1). Les entérocytes, qui assurent une barrière physique entre la lumière intestinale et l’hôte, absorbent l’eau et les nutriments, et sécrètent des peptides antimicrobiens PAMs (RegIIIg, b-defensins et cathelicidin) [2]. Grâce à la reconnaissance des motifs moléculaires associés aux micro-organismes (Microbe-Associated Molecular Patterns, MAMPs) par des récepteurs spécifiques (dont les Toll-Like-Receptors, TLR), ces cellules seront capables de transduire le signal en cytokines et chemokines pour signaler une infection et recruter les cellules immunitaires (Figure 2). Les cellules de Paneth participent à la résistance à la colonisation en sécrétant également des PAMs (lysosyme, a-defensins, RegIIIg) [2]. Les cellules caliciformes – sécrétrices de mucus – et les cellules M ont la capacité de faire passer des antigènes intacts et captés au hasard dans la lumière intestinale provenant des bactéries commensales ou des pathogènes ou des antigènes alimentaires. Ceux-ci seront ensuite apprêtés par les cellules dendritiques (CD) et présentés aux cellules de l’immunité adaptative. Cette fonction est primordiale pour la tolérance intestinale et l’induction des réponses immunitaires mucosales [2] : une balance entre des réponses pro- et anti-inflammatoires s’opère donc en permanence (Figure 2). Cela a été notamment démontré dans des modèles murins de colite induite et chez des souris déplétées en récepteurs TLR : l’absence de microbiote ou de reconnaissance de celui-ci réduit la prolifération des cellules épithéliales intestinales ou la réparation de la barrière [2]. Enfin, le mucus assure aussi une protection en capturant les PAM qui vont maintenir les pathogènes éloignées de l’épithélium. Dans un modèle de souris déficiente en Muc2 (gène codant pour une des protéines composant le mucus), on observe une augmentation de la translocation de bactéries commensales et ces animaux développent des maladies inflammatoires intestinales [3].
Parmi les acteurs du système immunitaire inné qui participent à l’homéostasie intestinale, les cellules présentatrices d’antigènes (CPA), tels que les macrophages (Mj) et les CD ont un rôle majeur. Les Mj et les CD synthétisent l’IL-10 et favorisent ainsi la différenciation en Treg [4] ainsi que la maturation des lymphocytes Th17 via l’implication de bactéries commensales : les bactéries segmentées filamenteuses (Segmented Filamentous Bacteria, SFB). Celles-ci ont la particularité d’adhérer aux cellules épithéliales intestinales entrainant une active stimulation du système immunitaire [5] (Figure 3). Une étude montre que la colonisation de souris par ces SFB induit la différenciation de Th17 et exerce ainsi une protection vis-à-vis de Citrobacter rodentium (équivalent murin des EPEC et EHEC). Cette protection serait attribuée à la capacité des SFB à stimuler la synthèse d’IL-22 par Th17, cytokine connue pour stimuler la synthèse des PAM [6]. Les CD, quant à elles, sont capables, grâce à une extension de leurs dendrites entre les cellules épithéliales, de phagocyter des bactéries présentes dans la lumière intestinale. Ces bactéries commensales sont ensuite transportées jusqu’aux ganglions lymphatiques mésentériques pour induire la production d’IgA sécrétées par les plasmocytes [1]). Les cellules lymphoïdes innées (Innate Lymphoid Cells, ILC) jouent également un rôle important dans l’homéostasie intestinale, lié à leur capacité à initier et orienter les réponses immunes intestinales. Plus particulièrement, les ILC de type 3 (ILC3) ont une place à part dans l’interaction avec le microbiote intestinal. Au travers de synthèse d’IL-22, ces cellules stimulent la production de mucus, de PAM ainsi que la sécrétion de chemokines et le recrutement de cellules polymorphonucléaires (PMN) (Figure 2) [1].
La maturation finale du système immunitaire adaptatif se caractérise par le peuplement de la muqueuse intestinale par des
lymphocytes matures effecteurs T pro-inflammatoires (Th17), anti-inflammatoires (Treg) et des lymphocytes B (Figure 2). En dehors des effets sur les macrophages et la différenciation des Th17, les SFB stimulent également le développement des organes lymphoïdes et participent à la différenciation des lymphocytes B en plasmocytes producteurs d’IgA qui vont contenir les bactéries pathogènes dans le mucus [5]. D’autres bactéries commensales peuvent stimuler les réponses immunitaires adaptatives : un mélange de 17 souches de Clostridia, isolée d’un échantillon fécal humain et introduit chez la souris induit une réponse anti-inflammatoire en stimulant les Treg [7]. Faecalibacterium prausnitzii a aussi été identifié pour son action anti-inflammatoire in vitro et in vivo en agissant sur le facteur NF-kB, les CD et Mj qui sécrète de l’IL-10 et favorise la différenciation des Treg au détriment des Th17 [8]. Parmi les Bacteroidetes, Bacteroides fragilis et B. thetaiotaomicron ont aussi été décrits comme exerçant une activité anti-inflammatoire. B. fragilis synthétise un polysaccharide A (PSA) qui supprime la production pro-inflammatoire d’IL-17, et stimule la sécrétion anti-inflammatoire d’IL- 10 (Figure 3). Dans un modèle spécifique de colite induite par Helicobacter hepaticus, PSA stimule le développement des organes lymphoïdes, stimule le lymphocyte Treg et protège les souris [9].
Les acides gras à chaîne courte (AGCC), les métabolites dérivés du tryptophane et les sels biliaires sont les principaux métabolites issus du microbiote intestinal exerçant un effet protecteur contre les infections [9, 10]. Le butyrate, propionate, et succinate sont connus pour leurs actions sur l’homéostasie intestinale, sur la sécrétion du mucus, mais également sur les différentes cellules du système immunitaire. Le butyrate exerce entre autres des effets anti-inflammatoires et anti-microbiens. Cette action passe par les récepteurs couplés aux protéines G (GPR) retrouvés sur les cellules épithéliales et les macrophages [9]. F. prausnitzii est un grand producteur de butyrate ce qui peut en partie expliquer son effet anti-inflammatoire. En effet, il inhibe l’activation de NF-kB et inhibe ainsi la synthèse de cytokines pro-inflammatoires IFN-g, TNF-a, IL-1b, IL-8 par les entérocytes [8] (Figure 3). Il induit également des modifications métaboliques et épigénétiques (via les histones deacétylases HDAC) des macrophages chez la souris, amplifiant ainsi leurs activités anti-microbiennes in vitro et in vivo [11]. Les bactéries commensales peuvent aussi métaboliser le tryptophane et produire des substances antimicrobiennes. Ainsi, les Lactobacilli l’utilisent comme source d’énergie pour synthétiser un indole qui se lie aux récepteurs aryl hydrates de carbone (AhR) présents sur les ILC3. AhR va induire la sécrétion d’IL-22 par les ILCs et par la suite la sécrétion d’AMP et induire une protection vis-à-vis des infections [9].
Parmi les virus entériques, le norovirus et le rotavirus sont les principales causes de gastro-entérites [12]. Les virus entériques infectent différents types cellulaires : les entérovirus 71 infectent spécifiquement les cellules caliciformes, tandis que le tropisme des rotavirus est dirigé vers les entérocytes principalement [13] (Figure 4A). Le microbiote intestinal agit comme une barrière contre les infections virales entériques. Les virus ont évolué et se sont adaptés à leur hôte pour mettre en place des mécanismes qui leur permettent de passer la barrière intestinale et d’échapper à l’immunité de barrière : en effet, il est difficile d’infecter efficacement, par voie orale, les souris par des virus entériques humains [13]. La pénétration du virus dans l’entérocyte entraîne la sécrétion d’interféron (IFN) de type III. La détection virale peut induire IL-la qui active les ILC3 pour produire l’IL-22. Cette IL protège des infections virales entériques et agit en synergie avec les IFN de type III pour induire l’expression d’effecteurs antiviraux et d’IL-15. La reconnaissance virale par les TLR-3 conduit à l’activation de la voie NF-kB et également à la production d’IL-15. L’IL-15 active les lymphocytes cytotoxiques (cellules NK). Les virus ayant traversé la barrière intestinale induisent la production d’IFN de type I par les macrophages de la lamina propria (Figure 4B). Certains virus entériques (rotavirus, réovirus, entérovirus) sont capables de se lier aux bactéries intestinales, favorisant la pénétration dans les cellules épithéliales intestinales [13]. Les SFB, qui permettent un renouvellement épithélial, entraînent une protection à l’infection par le rotavirus chez la souris en expulsant les cellules infectées [14]. Les acides biliaires métabolisés par le microbiote intestinal jouent également un rôle en protégeant l’intestin grêle (mais pas le côlon) de l’infection aiguë par le norovirus chez la souris en favorisant la production d’IFN de type III au niveau du grêle [15].
L’étude des relations entre le microbiote intestinal et l’immunité intestinale constitue une grande avancée dans la recherche en gastroentérologie. L’homéostasie intestinale est maintenue grâce à la reconnaissance de bactéries commensales par les cellules du système inné et les cellules de l’épithélium intestinal, soit par un contact direct (cas de SFB), soit via la synthèse de métabolites issus du microbiote. La rupture de l’homéostasie (dysbiose intestinale, infections etc..) entraine une stimulation des réponses innées et une activation du système adaptatif. Une mauvaise « gestion » de l’inflammation pourrait entrainer l’apparition de maladies, telle que le syndrome de l’intestin irritable post-infectieux.
1 Perez-Lopez A, Behnsen J, Nuccio SP, Raffatellu M. Mucosal immunity to pathogenic intestinal bacteria. Nat Rev Immunol 2016 ; 16 : 135-48.
2 Allaire JM, Crowley SM, Law HT, et al. The intestinal epithelium: central coordinator of mucosal immunity. Trends Immunol 2018 ; 39 : 677-96.
3 Van der Sluis M, De Koning BA, De Bruijn AC, et al. Muc2-deficient mice spontaneously develop colitis, indicating that MUC2 is critical for colonic protection. Gastroenterology 2006 ; 131 : 117-29.
4 Kim M, Hill A A, Wu WJ, et al. Intestinal microbes direct CX3CR1+ cells to balance intestinal immunity. Gut Microbes 2018 ; 17 : 151-63.
5 Flanningan KL, Denning TL. Segmented filamentous bacteria-induced immune responses: a balancing act between host protection and autoimmunity. Immunology 2018 ; 154 : 537-46.
6 Ivanov I I, Atarashi K, Manel N, et al. Induction of intestinal Th17 cells by segmented filamentous bacteria. Cell 2009 ; 139 : 485-98.
7 Atarashi K, Tanoue T, Oshima K, et al. Treg induction by rationally selected mixture of Clostridia strains from the human microbiota. Nature 2013 ; 500 : 232-6.
8 Miquel S, Martin R, Rossi O, et al. Faecalibacterium prausnitzi and human intestinal health. Curr Opin Microbiol 2013 ; 16 : 255- 61.
9 Levy M, Blacher E, Elinav E. Microbiome, metabolites and host immunity. Curr Opin Microbiol 2017 ; 35 : 8-15.
10 Michaudel C, Sokol H. The gut microbiota at the service of immunometabolism. Cell Metabolism 2020 ; 32 : 514-23.
11 Schulthess J, Pandey S, Capitani S, et al. The short Chain Fatty Acid Butyrate imprints an antimicrobial program in macrophages. Immunity 2019 ; 50 : 432-45.
12 Bányai K, Estes MK, Martella V, et al. Viral gastroenteritis. Lancet 2018 ; 392 : 175-86.
13 Segrist E, Cherry S. Using diverse model systems to define intestinal epithelial defenses to enteric viral infections. Cell Host Microbe 2020 ; 27 : 329-44.
14 Shi Z, Zou J, Zhang Z, et al. Segmented filamentous bacteria prevent and cure rotavirus infection. Cell 2019 ; 179 : 644-658.e13.
15 Grau KR, Zhu S, Peterson ST, et al. The intestinal regionalization of acute norovirus infection is regulated by the microbiota via bile acid-mediated priming of type III interferon. Nat Microbiol 2020 ; 5 : 84-92.
Synthèse
Par le Pr. Emily P. Balskus
Département de Chimie et de Biologie chimique, Université de Harvard, Cambridge, États-Unis
Le microbiote intestinal transforme les structures chimiques des substances ingérées, y compris les médicaments à petites molécules administrés par voie orale. Ce métabolisme, qui peut considérablement varier d’un patient à l’autre, a un impact à la fois positif et négatif sur l’efficacité des médicaments et il peut également influer sur leur toxicité. Son rôle potentiel dans la variabilité interindividuelle de la réponse aux médicaments est de plus en plus reconnu depuis ces 10 dernières années. Nous allons ici étudier ce phénomène en nous concentrant en particulier sur les récentes avancées réalisées et sur leur impact potentiel futur sur la prise en charge des patients et la découverte des médicaments.
Les milliers de milliards de micro-organismes qui peuplent l’intestin humain possèdent un nombre de gènes bien plus important que le génome de l’hôte. Beaucoup de ces gènes codent pour des catalyseurs protéiques (enzymes) qui permettent aux micro-organismes intestinaux d’opérer un large éventail de réactions chimiques venant enrichir la chimie associée au corps humain. L’une des caractéristiques principales du métabolisme microbien intestinal est sa variabilité : à l’image de la composition du microbiote, les capacités métaboliques de cette communauté diffèrent selon les individus. À mesure que se poursuit le travail d’identification des liens entre le microbiote intestinal et la santé, il devient de plus en plus important de caractériser les transformations métaboliques microbiennes au niveau moléculaire.
L’une des propriétés majeures du microbiote intestinal est sa capacité à modifier chimiquement les structures des médicaments à petites molécules [1]. Les médicaments administrés par voie orale peuvent rencontrer les micro-organismes intestinaux soit avant d’être absorbés dans l’intestin grêle, soit dans le côlon si leur biodisponibilité orale est faible. Les médicaments administrés par voie orale ou injectés, ou leurs métabolites, entrent également en contact avec le microbiote s’ils sont excrétés par voie biliaire dans l’intestin. Dans la mesure où l’activité pharmacologique d’un médicament est directement liée à sa structure chimique, le métabolisme microbien peut avoir un effet important sur son action.
Le métabolisme microbien intestinal produit plusieurs conséquences en aval sur l’action et l’efficacité des médicaments (Figure 1). Comme le montrent les exemples des médicaments azoïques, la métabolisation de « promédicaments » (précurseurs inactifs) par des micro-organismes pourrait être nécessaire pour générer l’agent pharmacologique actif. La connaissance de ce phénomène est à l’origine de la conception de nouvelles stratégies basées sur les activités métaboliques microbiennes visant à libérer les médicaments de manière ciblée dans le côlon. La métabolisation assurée par le microbiote intestinal peut également avoir des effets négatifs sur l’activité des médicaments en perturbant les interactions avec les cibles prévues chez l’hôte. Prenons l’exemple de la digoxine, une molécule naturelle utilisée pour traiter certaines affections cardiaques. Chez 5 à 10 % des patients, le microbiote intestinal réduit le cycle lactone αβ-insaturé de la digoxine pour donner la dihydrodigoxine. Cette modification subtile opérée par la bactérie intestinale Eggerthella lenta réduit fortement l’affinité de liaison de la digoxine pour sa cible (la Na+/K+ ATPase) et entraîne donc une perte d’efficacité [2]. Un autre exemple est celui du principal médicament utilisé pour traiter la maladie de Parkinson, la L-dopa. La métabolisation de la L-dopa en dopamine par des enzymes de l’hôte au niveau du cerveau est essentielle pour le soulagement des symptômes. La métabolisation de la L-dopa par le microbiote intestinal produit également de la dopamine [3,4]. Étant donné que la dopamine générée au niveau périphérique ne peut pas franchir la barrière hémato-encéphalique, cette activité pourrait réduire la quantité de L-dopa atteignant le cerveau.
Pour finir, en plus de réduire l’activité, les modifications chimiques opérées par les micro-organismes intestinaux peuvent également produire une toxicité non voulue. Par exemple, le métabolisme microbien intestinal a été impliqué dans la létalité associée à la co-administration du médicament antiviral sorivudine et d’agents chimiothérapeutiques de type fluoropyrimidine. Il s’est avéré que le mécanisme en cause était la métabolisation, par le microbiote intestinal, de la sorivudine en bromovinyluracile. Ce métabolite inhibe en effet une enzyme clé de l’hôte impliquée dans la détoxification du 5-fluorouracile, ce qui augmente sa concentration à des niveaux létaux.
Les études de la métabolisation des médicaments par le microbiote intestinal ont débuté il y a plus de 80 ans quand on a découvert que l’antibiotique Prontosil, une molécule azoïque inactive vis-à-vis des isolats bactériens mais montrant une efficacité in vivo, subissait une réduction sous l’action du microbiote intestinal pour donner l’agent actif sulfanilamide.
D’autres exemples ont été découverts depuis, souvent en lien avec l’observation d’une variabilité au niveau de l’efficacité ou de la toxicité chez les patients. Pourtant, malgré ces découvertes, ces activités ne sont généralement toujours pas prises en compte dans le développement ou l’administration des médicaments.
Effets du microbiote intestinal sur le métabolisme des médicaments : certaines bactéries intestinales peuvent activer ou inactiver des substances pharmaceutiques comme la digoxine, le prontosil ou l’irinotécan. Ces transformations modulent l’efficacité et la toxicité des traitements, illustrant le rôle central du microbiote dans la pharmacocinétique.
Une caractéristique importante de la métabolisation des médicaments par le microbiote intestinal est sa variabilité entre les patients, dont l’origine est la variabilité du microbiote intestinal. Même si certaines activités métaboliques sont retrouvées dans de nombreux micro-organismes, d’autres sont assurées par un petit sous-groupe peu abondant de la communauté intestinale. Le métabolisme peut varier entre des souches de la même espèce, et des bactéries même étroitement liées peuvent présenter des différences importantes au niveau de leur génome. Il n’est donc peut-être pas surprenant que la composition de la communauté soit souvent un mauvais facteur prédictif du métabolisme et que le métabolisme de certains médicaments puisse être rapide chez certaines personnes et absent chez d’autres. Cette variabilité a probablement des conséquences importantes mais incomplètement comprises pour les patients prenant différents médicaments à petites molécules.
Afin de bien comprendre la métabolisation des médicaments par le microbiote intestinal, il faut établir des liens entre les activités individuelles et les micro-organismes, les gènes et les enzymes. L’identification des micro-organismes métabolisant des médicaments spécifiques est typiquement nécessaire pour permettre de réaliser les études des mécanismes en aval. Pour ce faire, on peut cribler les isolats microbiens intestinaux disponibles ou isoler les micro-organismes métabolisateurs directement dans des échantillons de microbiote intestinal complexe. Il faut ensuite relier les transformations d’intérêt aux gènes et aux enzymes. Cette étape est cruciale pour étudier le métabolisme dans des communautés intestinales complexes car les gènes codant pour les enzymes métaboliques permettent de détecter et de prédire les activités individuelles dans les génomes microbiens et les données de séquençage du microbiome. Le lien entre le métabolisme des médicaments et les gènes microbiens peut être établi de différentes manières, notamment par l’analyse rationnelle des génomes à la recherche d’enzymes possédant les capacités catalytiques requises, l’utilisation du séquençage de l’ARN pour identifier les gènes dont l’expression est spécifiquement augmentée en réponse à un médicament, et l’utilisation de la génomique comparative pour associer les gènes à des capacités métaboliques.
En 2019, environ 60 exemples de métabolisation des médicaments par le microbiote intestinal avaient été rapportés. Deux récentes études ont utilisé des approches issues du criblage à haut débit et de l’expérimentation pour réaliser des recherches à grande échelle sur la métabolisation des médicaments par le microbiote intestinal, et ont ainsi fortement élargi l’éventail des transformations connues. Goodman et son équipe ont criblé 76 isolats bactériens intestinaux humains pour analyser leur capacité à métaboliser 271 médicaments à petites molécules et ils ont constaté que les deux tiers des médicaments étaient modifiés par au moins un micro-organisme [8]. Le groupe de Donia a réalisé un criblage analogue sur 575 médicaments en utilisant un échantillon de microbiote intestinal de patient ex vivo et il a découvert 45 nouvelles transformations [6]. Ces travaux suggèrent que les médicaments susceptibles d’être ainsi métabolisés pourraient être plus nombreux que ceux précédemment identifiés. Toutefois, la grande majorité de ces activités nouvellement rapportées n’ont pas encore été confirmées in vivo, donc on ne connaît pas leur signification pour les patients.
La chimie de la métabolisation des médicaments par le microbiote intestinal, qui a tendance à être réductrice et hydrolytique, est souvent distincte de celle des transformations
de l’hôte, qui impliquent une oxydation des médicaments et une conjugaison avec des métabolites plus polaires pour faciliter l’excrétion. Le métabolisme microbien a souvent des effets inverses sur la disponibilité des médicaments en prolongeant leur circulation dans l’organisme. Cependant, les transformations induites par le microbiote n’ont pas besoin d’être différentes pour avoir un impact sur l’action des médicaments. En effet, de récentes études réalisées avec l’antiviral brivudine suggèrent que ces activités pourraient affecter la pharmacocinétique du médicament même quand elles sont identiques au métabolisme de l’hôte [5].
Une fois que l’on sait que le microbiote intestinal transforme un médicament à petites molécules, la prochaine étape logique est de chercher à savoir comment cette activité peut être contrôlée, à la fois pour évaluer les conséquences du métabolisme sur l’action du médicament et pour améliorer le traitement du patient si ce métabolisme s’avère nocif. Différentes méthodes ont été utilisées à cette fin. Grâce aux modèles animaux gnotobiotiques (animaux axéniques colonisés de manière contrôlée avec un microbiote défini), on peut comparer des communautés contenant des souches intestinales métabolisant les médicaments ou des mutants de délétion dépourvus d’activités spécifiques. L’utilité de cette approche a été parfaitement illustrée par les études du laboratoire de Goodman sur la brivudine [5].
Cependant, la manipulation génétique est difficile dans les communautés microbiennes complexes natives et des approches alternatives sont donc évaluées. Une stratégie potentielle consiste à utiliser les connaissances en matière de physiologie bactérienne intestinale pour guider la manipulation de l’environnement intestinal via des interventions alimentaires. Pour la digoxine par exemple, Turnbaugh et son équipe ont observé que la présence de L-arginine diminue la métabolisation de la molécule par E. lenta [2]. Ils ont ensuite montré que l’administration d’aliments riches en protéines à des souris gnotobiotiques colonisées avec E. lenta réduisait l’inactivation de cette molécule in vivo.
Une autre stratégie très intéressante consiste à identifier des petites molécules qui inhibent l’activité d’enzymes microbiennes intestinales métabolisant les médicaments, comme l’a montré le laboratoire de Redinbo dans ses études sur le métabolisme de l’irinotécan. L’irinotécan est un promédicament qui est métabolisé par les cellules de l’hôte en SN-38, inhibiteur actif des topo-isomérases. Le SN-38 est métabolisé par l’hôte par glucuronoconjugaison, produisant un conjugué inactif (SN-38G). Ce métabolite est excrété dans l’intestin où le glucuronide est éliminé par les enzymes bactériennes intestinales β-glucuronidases (GUS). Cette réactivation produit une toxicité dose-limitante au niveau du tube digestif. Le groupe de Redinbo a utilisé le criblage à haut débit pour identifier des inhibiteurs sélectifs des enzymes bactériennes intestinales GUS, et il a montré que ceux-ci empêchaient la survenue des effets indésirables sévères causés par l’irinotécan dans un modèle murin [9]. Des travaux ultérieurs ont révélé que ces molécules augmentaient l’efficacité de l’irinotécan en limitant sa toxicité [10]. Ces travaux ont fourni une preuve très intéressante du concept du ciblage thérapeutique du métabolisme bactérien intestinal et sont à l’origine d’autres initiatives pour découvrir des inhibiteurs.
On estime que 70 % des microorganismes intestinaux n’ont pas encore été cultivés et il est donc difficile de caractériser leurs activités. Donia et son équipe ont utilisé la métagénomique fonctionnelle, qui consiste introduire dans un hôte hétérologue de l’ADN isolé directement dans un microbiote complexe, afin d’identifier une enzyme bactérienne intestinale métabolisant l’hydrocortisone [6]. Des enzymes métabolisant le cholestérol ont aussi été découvertes récemment dans des bactéries intestinales non cultivées en corrélant la présence de gênes microbiens dans les microbiomes aux données métabolomiques [7]. Ces deux stratégies pourraient être utiles pour étudier la métabolisation des médicaments par des microorganismes
non cultivés.
Le développement d’inhibiteurs de GUS comme candidats thérapeutiques est une illustration de la manière dont la compréhension des mécanismes moléculaires de la métabolisation des médicaments par le microbiote intestinal pourrait bénéficier aux patients. Un autre domaine qui pourrait être transformé par ces connaissances est la médecine de précision. En effet, en comprenant comment des traitements spécifiques sont métabolisés par les micro- organismes intestinaux, les médecins pourraient un jour utiliser les données de séquençage du microbiome ou des tests diagnostiques basés sur le microbiote pour décider si, et de quelle manière, il convient de prescrire des médicaments particuliers.
La reconnaissance croissante du rôle de la métabolisation des médicaments par le microbiote intestinal pourrait également influer sur le processus-même de découverte des médicaments. En raison de leurs associations passées avec des toxicités et des effets indésirables, de nombreux groupes fonctionnels dont on sait qu’ils sont transformés par les bactéries intestinales sont typiquement évités par les chimistes médicinaux. On pourrait imaginer découvrir de nouvelles transformations inattendues dans les premières phases du développement des médicaments, en criblant des micro-organismes intestinaux individuels ou des communautés complexes de patients à des fins de détermination du métabolisme ex vivo, de la même manière que l’on teste typiquement les candidats-médicaments afin d’analyser leur métabolisation par les enzymes de l’hôte. Les différences entre les modèles animaux et les êtres humains en termes de composition et de fonctions du microbiote intestinal devraient être prises en compte dans les études précliniques et cliniques. Enfin, il pourrait être opportun d’intégrer dans les essais cliniques le recueil d’échantillons de microbiote et leur analyse en termes de métabolisme du médicament. La mise en corrélation du métabolisme avec les différences au niveau de la toxicité ou de l’efficacité pourrait aider à interpréter les résultats de ces essais et à définir les populations de patients cibles.
En résumé, ces 10 dernières années ont été le témoin d’avancées considérables dans la compréhension des mécanismes moléculaires de la métabolisation des médicaments par le microbiote intestinal et de ses conséquences sur l’efficacité des médicaments. Des travaux supplémentaires pour explorer ce domaine de recherche passionnant pourraient permettre de faire avancer la médecine de précision et la découverte des médicaments.
Synthèse
Par le Pr. Tao Zuo
Institut de recherche en gastroentérologie de SYSU, Institut de gastroentérologie du Guangdong, sixième hôpital affilié de l’Université Sun Yat-Sen, Guangzhou, Chine
Le microbiote intestinal, avec ses fractions bactériennes, fongiques et virales, colonise les intestins humains et régule l’immunité de l’hôte contre l’invasion d’agents pathogènes. La composition largement hétérogène du microbiote intestinal (MI) entre les personnes pourrait influencer les réponses immunitaires de l’hôte à l’infection au SARS-CoV-2, conduisant à des symptômes et des issues différents de la Covid-19. Par ailleurs, même si l’infection au SARS-CoV-2 provoque principalement des symptômes respiratoires, elle dérègle profondément l’immunité systémique de l’hôte et affecte le système gastro-intestinal avec des conséquences à court comme à long terme sur le microbiote intestinal. Nous passons ici en revue les preuves actuelles sur l’impact de la Covid-19 sur le MI humain ainsi que les associations entre la composition du GM et la sévérité de la Covid-19.
La Covid-19 est une maladie respiratoire provoquée par un nouveau coronavirus (SARS-CoV-2) qui touche encore des dizaines de millions de personnes aujourd’hui dans le monde. Même si la majorité des patients Covid-19 présentent des symptômes respiratoires, près de 20 % d’entre eux ont des symptômes gastro-intestinaux, notamment des diarrhées [1], suggérant que le tube digestif est un site extrapulmonaire d’expression de la maladie et d’infection au SARS-CoV-2. De plus, la Covid- 19 présente un large éventail de sévérité de la maladie, allant de formes asymptomatiques à des formes légères, des formes sévères et jusqu’à des formes critiques associées à une insuffisance respiratoire voire au décès [2].
Le tractus gastrointestinal est le plus vaste organe immunitaire chez l’être humain, jouant un rôle essentiel dans la défense de l’hôte contre les infections pathogènes. Des milliers de milliards de micro-organismes vivent dans l’intestin humain et le colonisent – des bactéries, des champignons, des virus et d’autres formes de vie, collectivement appelés microbiote – régulant l’immunité de l’hôte. Il est donc de la plus haute importance de comprendre si le microbiote intestinal module la sensibilité de l’hôte à l’infection au SARS-CoV-2 et la sévérité de celle-ci ainsi que l’impact de l’infection au SARS-CoV-2 sur le GM de l’hôte et ses effets en aval à long terme sur la santé humaine.
Les patients Covid-19 présentent des altérations importantes du microbiote bactérien intestinal comparativement aux personnes en bonne santé, caractérisées par une déplétion des commensaux bénéfiques et un enrichissement en agents pathogènes opportunistes dans l’intestin (Figure 1) [3]. La déplétion des symbiotes intestinaux a persisté y compris après la résolution de la Covid-19. L’abondance initiale (lors de l’hospitalisation du patient) des bactéries Coprobacillus, Clostridium ramosum et Clostridium hathewayi a montré une corrélation positive avec la sévérité de la Covid 19, tandis qu’une corrélation inverse entre l’abondance de Faecalibacterium prausnitzii (connue pour être une bactérie anti-inflammatoire) et la sévérité de la maladie a été observée. Le SARS-CoV-2 utilise le récepteur de l’enzyme 2 de conversion de l’angiotensine (ACE2) pour pénétrer chez l’hôte et ce récepteur est fortement exprimé à la fois dans les voies respiratoires et dans les voies digestives [4]. L’ACE2 joue un rôle important pour contrôler l’inflammation intestinale et l’écologie microbienne intestinale [5]. Quatre espèces Bacteroides, B. dorei, B. thetaiotaomicron, B. massiliensis et B. ovatus, ont été rapportées comme étant inversement associées à l’expression de l’ACE2 dans l’intestin murin [6]. Il est intéressant de noter que leur abondance respective dans le microbiome fécal a également montré une corrélation inverse avec la charge virale du SARS-CoV-2 dans les matières fécales chez les patients Covid- 19 au cours de l’évolution de la maladie. Ces observations suggèrent que le MI bactérien humain est affecté par la Covid-19 et pourrait calibrer les défenses de l’hôte contre l’infection au SARS-CoV-2.
Le tractus gastro-intestinal abrite également un grand nombre de champignons, collectivement connus sous le nom de mycobiome (microbiome fongique), qui ont été impliqués dans l’assemblage du MI et le développement immunitaire [7]. Les patients atteints de la Covid-19 présentaient également une altération du mycobiome intestinal, caractérisée par un enrichissement en Candida albicans et des configurations du mycobiome hautement hétérogènes (Figure 1) [8]. La diversité du mycobiome fécal chez les patients atteints de la Covid-19 lors de leur sortie de l’hôpital était 2,5 fois plus élevée que chez les personnes en bonne santé. Les agents pathogènes fongiques opportunistes, Candida albicans, C. auris et Aspergillus flavus, étaient fortement présents dans les fèces des patients Covid-19 au cours de l’évolution de la maladie. Deux agents pathogènes fongiques associés à des symptômes respiratoires, A. flavus et A. niger, ont été détectés dans les échantillons fécaux d’un sous-ensemble de patients atteints de la Covid-19, y compris après la résolution de la maladie. Un mycobiome intestinal instable et une dysbiose prolongée ont persisté chez environ 30 % des patients atteints de la Covid-19.
Grâce au séquençage aléatoire de l’ARN viral, une signature d’infection virale intestinale active a été retrouvée chez 47 % des patients atteints de la Covid-19, y compris en l’absence de symptômes gastro-intestinaux et après élimination respiratoire du SARS-CoV-2 [9], suggérant une infection « quiescente » au SARS-CoV-2 dans le tractus gastro-intestinal et un risque potentiel de transmission féco-orale. Les patients avec une telle activité gastro-intestinale du SARS-CoV-2 avaient un MI ayant une composition et des fonctions anormales, avec notamment une abondance élevée d’agents pathogènes opportunistes et une capacité renforcée de biosynthèse des nucléotides et des acides aminés et de métabolisme des glucides (glycolyse) [9].
Le tractus gastro-intestinal humain abrite également en abondance des virus et des phages collectivement connus sous le nom de virome intestinal. Les patients Covid-19 avaient une sous-représentation du virus de la marbrure légère du piment (virus à ARN) et de multiples lignées de bactériophages (virus à ADN) ainsi qu’un enrichissement en virus à ADN eucaryotes issus de l’environnement dans les échantillons fécaux comparativement aux patients non-Covid-19 (Figure 1) [10]. Le virome fécal dans l’infection au SARS-CoV-2 montrait une augmentation de la capacité de codage des gènes associés au stress, à l’inflammation et à la virulence. Initialement (lors de l’hospitalisation du patient), l’abondance fécale du virus à ARN, le virus des taches chlorotiques du piment et de multiples espèces de bactériophages étaient inversement corrélés à la sévérité de la Covid-19. Ces virus étaient également inversement associés aux taux sanguins de protéines pro-inflammatoires, de globules blancs et de neutrophiles, indiquant que les virus intestinaux pourraient adapter la réponse immunitaire de l’hôte à l’infection au SARSCoV- 2. Parmi les espèces de virus à ADN associées à la sévérité de la Covid-19, 40 % ont montré une corrélation inverse avec l’âge, ce qui pourrait étayer l’observation selon laquelle les sujets âgés présentent un risque plus élevé de développer une forme plus sévère de la Covid-19.
En résumé, l’ensemble des preuves disponibles suggère que le MI humain (microbiote bactérien, mycobiome et virome) est altéré dans la Covid-19. Ce dérèglement persiste, y compris après la résolution de la maladie, ce qui fait potentiellement peser une menace à long terme pour la santé de l’hôte. La composition du microbiote intestinal est associée à la réponse immunitaire de l’hôte à l’infection au SARS-CoV-2 et à la sévérité de la Covid-19. Des recherches supplémentaires sont nécessaires pour explorer les effets à long terme de la Covid-19 et pour améliorer le MI et l’immunité de l’hôte face à cette pandémie virale sans précédent.
Pourquoi le microbiote intestinal est-il si important pour la santé ?
Notre intestin est peuplé de trillions1 de bactéries qui exercent des pouvoirs fascinants sur le corps humain. Essayons de mieux comprendre comment fonctionne le microbiote intestinal et pourquoi il faut en prendre soin !
Vous avez sans doute déjà entendu parler de la « flore intestinale ». Eh bien, son nom scientifique est « microbiote intestinal ». Quelle est la définition du microbiote intestinal ? Il est composé de trillions1 de (sidenote: Micro-organismes Organismes vivants qui sont trop petits pour être vus à l'œil nu. Ils incluent les bactéries, les virus, les champignons, les archées, les protozoaires, etc… et sont communément appelés "microbes". What is microbiology? Microbiology Society. ) qui peuplent notre intestin, tels que des bactéries, des virus, des champignons (y compris des levures) et même des parasites.
Signalons en passant que les mots « microbiote » et « microbiome » sont souvent utilisés indistinctement alors qu’ils n’ont pas tout à fait le même sens. En effet, le microbiote se rapporte aux micro-organismes individuels et répond à la question « qui est là ? », tandis que le terme « microbiome » s’applique à leur génome, à “ce qu’il y a dedans”2 et répond plutôt à la question « que font-ils ? » ou « quelle est leur fonction ? ».
Chacun de nous possède un microbiote unique, un peu comme une empreinte digitale1. À la naissance, les micro-organismes d’origine fécale et vaginale transmis par la mère au cours de l’accouchement par voie basse, ou les micro-organismes de l’environnement en cas de césarienne3, induisent le démarrage de la colonisation du microbiote intestinal4. Celui-ci met environ trois ans à se former, à se diversifier et à se stabiliser5. À l’âge adulte6, sa composition reste relativement stable jusqu’à la vieillesse, lorsqu’il il subit une profonde transformation dont il ressort quelque peu appauvri7.
100 000 100 000 milliards de « bonnes » bactéries peuplent nos intestins
2ème le microbiote intestinal est souvent considéré comme le deuxième cerveau
Le microbiote intestinal peut être considéré comme un organe fonctionnel du corps humain. Pourquoi faut-il prendre soin de son microbiote ? Il travaille en étroite collaboration avec les intestins et exerce quatre fonctions principales :
en contribuant à l’absorption des nutriments (sucres, acides aminés, vitamines…) par les cellules intestinales ou à la fermentation d’une petite partie des aliments. Ces processus de fermentation produisent du gaz et de nombreux métabolites, y compris des acides gras à chaîne courte qui représentent un véritable carburant pour les cellules du côlon8.
en participant activement à la production de mucus gastro-intestinal, à l’irrigation des cellules intestinales et à l’activité enzymatique de la muqueuse9.
contre les pathogènes et les toxines10. De surcroît, certaines bactéries libèrent des molécules antimicrobiennes agissant contre les bactéries (sidenote: pathogènes Un pathogène est un microorganisme qui cause, ou peut causer, une maladie Pirofski LA, Casadevall A. Q and A: What is a pathogen? A question that begs the point. BMC Biol. 2012 Jan 31;10:6. ) , tandis que d’autres stimulent la production de mucus afin de protéger les cellules intestinales contre les attaques et empêcher les effets nocifs sur l’organisme11.
dans le développement du système immunitaire. Les bactéries de la flore intestinale sont impliquées dans la maturation et l’activation des cellules du système immunitaire intestinal, qui nous protège contre les attaques de pathogènes tels que les bactéries et les virus. L’intestin constitue le principal réservoir de cellules immunitaires de l’organisme. De son côté, le système immunitaire exerce une influence sur la composition et la diversité du microbiote12.
La composition du microbiote intestinal se caractérise par sa grande diversité (nombre d’espèces différentes présentes chez un individu donné) et par son abondance (quantité totale de microbes présents). Lorsque cette composition est perturbée, l’équilibre est rompu et une (sidenote: Dysbiose La « dysbiose » n’est pas un phénomène homogène : elle varie en fonction de l’état de santé de chaque individu. Elle est généralement définie comme une altération de la composition et du fonctionnement du microbiote, provoquée par un ensemble de facteurs environnementaux et liés à l’individu, qui perturbent l’écosystème microbien. Levy M, Kolodziejczyk AA, Thaiss CA, et al. Dysbiosis and the immune system. Nat Rev Immunol. 2017;17(4):219-232. ) apparaît,13 qui peut être associée à différentes maladies.
De nombreux facteurs peuvent exercer un impact sur la diversité et la composition du microbiote intestinal. Parmi ces facteurs, citons les suivants :
Des facteurs individuels, tels que :
Des facteurs environnementaux, tels que:
La dysbiose, cause ou conséquence de ces maladies ? À ce jour, les études scientifiques n’ont toujours pas permis de répondre à cette question avec certitude.
Les coliques du nourrisson14 touchent entre 20 et 25 % des bébés âgés de 1 à 4 mois.
La diarrhée post-antibiotiques se manifeste chez 5 à 35 % des patients prenant des antibiotiques15.
La diarrhée du voyageur est une infection due à la consommation d’eau ou d’aliments contaminés. Le syndrome de l’intestin irritable (SII) affecte entre 3 et 17 % des patients ayant contracté cette infection16.
La gastro-entérite est généralement bénigne et d’origine virale, mais elle est tout de même responsable du décès de plus de 200 000 enfants par an dans le monde17.
L’obésité est une maladie chronique fréquente, grave et coûteuse qui, en 2016, touchait 13 % de la population adulte mondiale (11 % des hommes et 15 % des femmes18).
Le SII est l’un des troubles fonctionnels du système digestif les plus courants et se caractérise par des douleurs abdominales et des modifications des habitudes défécatoires de l’hôte (constipation, diarrhée ou une alternance entre les deux). Sa prévalence peut varier considérablement entre les différents pays19.
La maladie de Crohn est une maladie inflammatoire de l’intestin dans laquelle l’inflammation peut atteindre tous les niveaux du tube digestif, depuis la bouche jusqu’à l’anus. Des études récentes ont démontré que le microbiote intestinal joue un rôle important dans l’étiopathogénie de cette maladie20.
Le cancer de l’estomac21 et le cancer colorectal22 sont deux cancers gastro-intestinaux associés à une dysbiose intestinale.
Mais le rôle du microbiote intestinal humain ne se limite pas à l’intestin et des études récentes ont montré que son action s’étendrait bien au-delà du tube digestif. En effet, le microbiote intestinal a été associé à plusieurs maladies extraintestinales telles que l’acné23, certaines allergies24, l’obésité25, les troubles anxieux26, les troubles du spectre autistique26…Et ce n’est pas tout ! Le microbiote intestinal serait également associé à certaines pathologies dégénératives comme la maladie d’Alzheimer27 ou celle de Parkinson28. D’ailleurs, il existe un système de communication bidirectionnel entre l’intestin et le cerveau, qui a été baptisé « axe intestin-cerveau ». C’est pourquoi l’intestin est parfois appelé le deuxième cerveau.
Vous connaissez désormais le rôle central que joue le microbiote intestinal dans la santé humaine. Dans ces conditions, comment prendriez-vous soin de votre propre microbiote ? Comment renforcer son microbiote intestinal ? De nombreuses études scientifiques se sont demandé comment éviter toute perturbation de sa composition et comment en préserver l’équilibre le mieux possible 29. Hélas, la réponse n’est pas aussi simple qu’elle ne le paraît : il ne suffit pas d’apporter des bactéries ou des levures bénéfiques pour peupler le microbiote existant ou remplacer les micro-organismes nocifs. En réalité, l’idée est plutôt d’exercer une influence sur le microbiote pour l’aider à fonctionner correctement et améliorer ainsi la santé de l’hôte 30.
Alimentation : la diversité et la qualité de ce que nous mangeons contribuent à l’équilibre de notre microbiote intestinal 31,32. Par ailleurs, une alimentation déséquilibrée peut affecter la composition de notre microbiote intestinal et provoquer certaines maladies 33. Il est donc important de savoir quels types d’aliments exercent des effets bénéfiques ou nocifs afin de garder des intestins en pleine forme ! 34
Probiotiques : les probiotiques sont des micro-organismes vivants qui, s’ils sont administrés en quantités appropriées, bénéficient à la santé de l’hôte 35,36.
Prébiotiques : les prébiotiques sont des fibres alimentaires spécifiques non digestibles qui ont des effets favorables sur la santé. Ils sont utilisés de manière sélective par les micro-organismes bénéfiques du microbiote de l’hôte 37,38. Certains aliments sont particulièrement riches en prébiotiques, c’est pourquoi il est si important de faire attention à notre alimentation. Les produits spécifiques associant des probiotiques et des prébiotiques sont appelés symbiotiques 39.
Transplantation : comme les autres organes, le microbiote intestinal peut être greffé sur un autre individu afin d’essayer de rétablir l’équilibre de son écosystème microbien intestinal 32. Pour le moment, cette approche thérapeutique, connue sous le nom de transplantation de microbiote fécal (TMF), n’est autorisée que pour le traitement des infections récurrentes à Clostridioides difficile 32, mais elle fait l’objet de recherches intensives qui tentent d’évaluer ses effets sur d’autres pathologies spécifiques comme la maladie de Crohn, la rectocolite hémorragique, le syndrome de l’intestin irritable ou les maladies métaboliques 32…
Maintenant que vous êtes incollable sur le microbiote intestinal, vous devriez également savoir que l’on retrouve des micro-organismes dans toutes les parties du corps : la peau40, l’appareil urinaire41, le vagin42, la bouche43, les oreilles44, les poumons45. Comme dans le cas des intestins, les micro-organismes qui y habitent jouent un rôle crucial dans le fonctionnement de ces organes et, plus généralement, dans la protection de notre santé. Pour en savoir plus, consultez cette page.
Expliquez le microbiote à vos élèves grâce aux outils du Biocodex Microbiota Institute :
Et bien entendu, tout le contenu de notre site internet, dédié à la compréhension et à la connaissance des microbiotes.
11 Sokol H. Microbiota and barrier effect. In: Marteau P, Dore J, eds. Gut Microbiota: A Full-Fledged Organ. Paris: John Libby Eurotext; 2017:65-71.
17 Stuempfig ND, Seroy J. Viral Gastroenteritis. In: StatPearls. Treasure Island (FL): StatPearls
18 WHO. Fact sheets on obesity and overweight June 2021
27 Qian XH, Song XX, Liu XL, et al. Inflammatory pathways in Alzheimer's disease mediated by gut microbiota. Ageing Res Rev. 2021 Mar 9;68:101317.
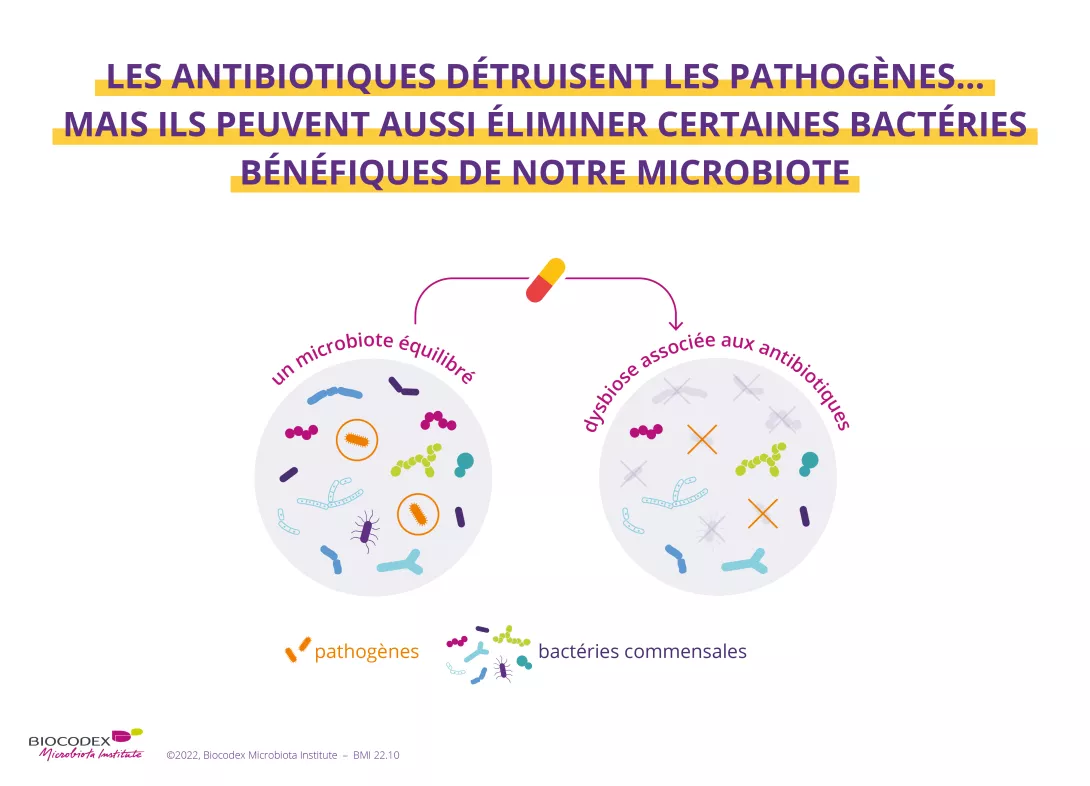
Les antibiotiques constituent un outil puissant dans la lutte contre les infections bactériennes. Si les traitements semblent parfois se dérouler sans effets secondaires évidents à court terme, le déséquilibre du microbiote intestinal qu’ils entraînent chez les patients peuvent provoquent des diarrhées chez jusqu'à 35% des patients1-3. Cette diarrhée associée aux antibiotiques peut parfois cacher une infection intestinale grave3.
Les antibiotiques, s'ils éradiquent les (sidenote: Pathogène Un pathogène est un microorganisme qui cause, ou peut causer, une maladie. Pirofski LA, Casadevall A. Q and A: What is a pathogen? A question that begs the point. BMC Biol. 2012 Jan 31;10:6. ) responsables de votre infection, peuvent également détruire certaines bactéries bénéfiques au sein de votre microbiote, provoquant systématiquement un déséquilibre plus ou moins important au sein de cet écosystème. Ce phénomène, connu sous le terme de (sidenote: Dysbiose La « dysbiose » n’est pas un phénomène homogène : elle varie en fonction de l’état de santé de chaque individu. Elle est généralement définie comme une altération de la composition et du fonctionnement du microbiote, provoquée par un ensemble de facteurs environnementaux et liés à l’individu, qui perturbent l’écosystème microbien. Levy M, Kolodziejczyk AA, Thaiss CA, et al. Dysbiosis and the immune system. Nat Rev Immunol. 2017;17(4):219-232. ) , serait à l'origine de la diarrhée associée aux antibiotiques, le microbiote intestinal étant alors moins apte à remplir ses fonctions protectrices. Celle-ci peut toucher jusqu’à 35% des patients1-3 et chez les enfants, ce pourcentage peut atteindre jusqu'à 80%1.
De plus, le microbiote intestinal, malgré un certain degré de résilience (c’est-à-dire que sa composition revient à une composition proche de celle qu’il avait avant le déséquilibre induit par les antibiotiques), peut parfois ne pas se restaurer complètement4,5. Des recherches récentes ont montré que les antibiotiques peuvent altérer la diversité et l'abondance des bactéries, et ce déséquilibre peut être prolongé (généralement 8 à 12 semaines après l'arrêt du traitement)1,6.
La principale conséquence à court terme d’un traitement antibiotique est la modification du transit intestinal chez certains patients, qui se traduit le plus souvent par une diarrhée. Celle-ci est définie par l’émission d’au moins trois selles très molles à liquides, dans les 24 heures suivant le début d’un traitement antibiotique, ou jusqu’à 2 mois après son arrêt7-9. L'incidence de la diarrhée associée aux antibiotiques dépend de plusieurs facteurs (âge, contexte, type d'antibiotique, etc.). Dans la grande majorité des cas, la diarrhée est d'origine fonctionnelle, c’est-à-dire associée au déséquilibre du microbiote intestinal, et elle est généralement d'intensité légère à modérée1. Les antibiotiques présentant le spectre le plus large d'activité antimicrobienne (c’est-à-dire qu’ils auront une action sur un très grand nombre de bactéries) sont associés à des taux plus élevés d’apparition de diarrhée3.
Les antibiotiques sauvent des vies ! Saviez-vous qu’ils ont aussi un impact sur votre microbiote ? Saviez-vous que l’usage abusif ou excessif des antibiotiques peut engendrer une résistance aux antimicrobiens ? Connaissez-vous la Semaine mondiale de sensibilisation à la résistance aux antimicrobiens (WAAW) ? Découvrez toutes les informations sur cette page dédiée :
Cependant, dans 10 à 20% des cas, la diarrhée résulte d'une infection par Clostridioides difficile (C. difficile): une bactérie qui peut devenir pathogène sous l’influence de certains facteurs, comme une prise d’antibiotiques par exemple, mais également un âge supérieur à 65 ans ou encore certaines pathologies associées3. La colonisation de cette bactérie dans le microbiote intestinal déclenche une réaction inflammatoire, avec des conséquences cliniques allant d’une diarrhée modérée à des symptômes beaucoup plus graves, voire la mort3.
La prise en charge de la diarrhée associée aux antibiotiques dépend des symptômes et de l’agent pathogène (C. difficile par exemple)10. Dans le cas d’une diarrhée légère à modérée, le traitement repose sur l'arrêt de l’antibiotique en cause (ou le remplacement par un antibiotique moins à risque de provoquer une diarrhée), afin de permettre au microbiote de se restaurer et au patient de se réhydrater10.
De nombreuses études ont montré l’intérêt des probiotiques pour permettre la reconstitution du microbiote intestinal : certains probiotiques ont une efficacité démontrée pour prévenir et traiter la diarrhée associée aux antibiotiques6, 11-12.
D’autres ont montré que leur prise pendant un traitement antibiotique réduit le risque de première infection à C. difficile ainsi que les infections récurrentes13-15. Enfin, la transplantation de microbiote fécal qui consiste à implanter par voie naturelle un microbiote sain chez un individu malade pour restaurer son écosystème microbien, est limitée pour l'instant aux cas d'infections les plus graves : elle est uniquement indiquée dans le traitement des rechutes des infections à la bactérie pathogène C. difficile16,17.
Cet article est issu de sources scientifiques validées mais ne se substitue pas à un avis médical. En cas de symptômes, n’hésitez pas à consulter votre médecin généraliste ou le pédiatre de vos enfants.
Depuis 2015, l’OMS organise chaque année la Semaine mondiale de sensibilisation à la résistance aux antimicrobiens (WAAW), qui a pour but de mieux faire connaître le phénomène mondial de résistance aux antimicrobiens.
La résistance aux antimicrobiens survient lorsque les bactéries, les virus, les parasites et les champignons évoluent et résistent aux effets des médicaments. En raison de cette pharmacorésistance, les antibiotiques et autres médicaments antimicrobiens perdent leur efficacité et les infections deviennent plus difficiles, voire impossibles à traiter, ce qui augmente le risque de propagation des maladies, de pathologie grave et de décès.
Organisée du 18 au 24 novembre, cette campagne invite le grand public, les professionnels de santé et les décideurs politiques à faire un usage raisonné des antibiotiques, des antiviraux, des antifongiques et des antiparasitaires afin de prévenir le développement accru de la résistance aux antimicrobiens. "
1 McFarland LV, Ozen M, Dinleyici EC et al. Comparison of pediatric and adult antibiotic-associated diarrhea and Clostridium difficile infections. World J Gastroenterol. 2016;22(11):3078-3104.
2 Bartlett JG. Clinical practice. Antibiotic-associated diarrhea. N Engl J Med 2002;346:334-9.
3 Theriot CM, Young VB. Interactions Between the Gastrointestinal Microbiome and Clostridium difficile. Annu Rev Microbiol. 2015;69:445-461.
4 Dethlefsen L, Relman DA. Incomplete recovery and individualized responses of the human distal gut microbiota to repeated antibiotic perturbation. Proc Natl Acad Sci U S A. 2011;108 Suppl 1(Suppl 1):4554-4561.
5 Francino MP. Antibiotics and the Human Gut Microbiome: Dysbioses and Accumulation of Resistances. Front Microbiol. 2016;6:1543.
6 Kabbani TA, Pallav K, Dowd SE et al. Prospective randomized controlled study on the effects of Saccharomyces boulardii CNCM I-745 and amoxicillin-clavulanate or the combination on the gut microbiota of healthy volunteers. Gut Microbes. 2017;8(1):17-32.
7 Wiström J, Norrby SR, Myhre EB, et al. Frequency of antibiotic-associated diarrhoea in 2462 antibiotic-treated hospitalized patients: a prospective study. J Antimicrob Chemother. 2001 Jan;47(1):43-50.
8 McFarland LV. Epidemiology, risk factors and treatments for antibiotic-associated diarrhea. Dig Dis. 1998 Sep-Oct;16(5):292-307.
9 Bartlett JG, Chang TW, Gurwith M, et al. Antibiotic-associated pseudomembranous colitis due to toxin-producing clostridia. N Engl J Med. 1978 Mar 9;298(10):531-4.
10 Barbut F, Meynard JL. Managing antibiotic associated diarrhoea. BMJ. 2002 Jun 8;324(7350):1345-6.
11 Szajewska H, Kołodziej M. Systematic review with meta-analysis: Saccharomyces boulardii in the prevention of antibiotic-associated diarrhoea. Aliment Pharmacol Ther. 2015 Oct;42(7):793-801.
12 Hempel S, Newberry SJ, Maher AR, et al. Probiotics for the prevention and treatment of antibiotic-associated diarrhea: a systematic review and meta-analysis. JAMA. 2012 May 9;307(18):1959-69.
13 McFarland LV, Surawicz CM, Greenberg RN, et al. A randomized placebo-controlled trial of Saccharomyces boulardii in combination with standard antibiotics for Clostridium difficile disease. JAMA. 1994 Jun 22-29;271(24):1913-8.
14 Kotowska M, Albrecht P, Szajewska H. Saccharomyces boulardii in the prevention of antibiotic-associated diarrhoea in children: a randomized double-blind placebo-controlled trial. Aliment Pharmacol Ther. 2005 Mar 1;21(5):583-90.
15 McFarland LV. Probiotics for the Primary and Secondary Prevention of C. difficile Infections: A Meta-analysis and Systematic Review. Antibiotics (Basel). 2015 Apr 13;4(2):160-78.
16 Surawicz CM, Brandt LJ, Binion DG, et al. Guidelines for diagnosis, treatment, and prevention of Clostridium difficile infections. Am J Gastroenterol. 2013 Apr;108(4):478-98; quiz 499.
17 Li YT, Cai HF, Wang ZH, et al. Systematic review with meta-analysis: long-term outcomes of faecal microbiota transplantation for Clostridium difficile infection. Aliment Pharmacol Ther. 2016 Feb;43(4):445-57.
Prise d’antibiotiques, microbiote de l’enfant et santé à long terme