Régime méditerranéen, microbiote intestinal et maladies non transmissibles

Revue de presse 

Par le Pr Markku Voutilainen
Faculté de médecine de l’Université de Turku ; gastro-entérologie, Hôpital universitaire de Turku, Finlande

Computer illustration of Bacteroides sp. bacteria. These are rod shaped, obligate anaerobic, Gram-negative, saccharolytic bacteria. 

Le régime méditerranéen est caractérisé par un apport significatif en légumes, fruits, légumineuses, fruits à coque, graines et céréales complètes, une consommation modérée de poisson et un apport faible en graisses saturées, viandes et produits laitiers, ainsi que par une consommation modérée d’alcool, notamment de vin rouge. Le régime alimentaire de certaines personnes vivant dans les pays nordiques se rapproche du régime méditerranéen. Chez les personnes suivant un régime méditerranéen, la morbi-mortalité cardiovasculaire est plus faible, et ce régime a un effet préventif et thérapeutique sur le syndrome métabolique, l’obésité, le diabète de type 2, les maladies inflammatoires et certains cancers.

L’intestin humain est colonisé par des milliers d’espèces microbiennes (bactéries, virus, archées, espèces eucaryotes unicellulaires) qui contiennent plus de trois millions de gènes différents (le génome humain contient 23 000 gènes). Le microbiote intestinal fermente les fibres alimentaires non digestibles et le mucus intestinal endogène, ce qui stimule la croissance de micro-organismes produisant des acides gras à chaîne courte (butyrate, propionate, acétate).

La dysbiose est liée à une inflammation localisée de la muqueuse intestinale, à une détérioration de la physiologie intestinale et à des troubles métaboliques ; elle est associée à de nombreuses maladies gastro-intestinales et extra-intestinales. Le microbiote présente cependant des variations interindividuelles significatives chez les personnes souffrant d’une même maladie, et la population microbienne est très variable selon les maladies.

Des études conduites chez l’animal ont montré que l’alimentation a un impact important sur le microbiote intestinal. Le régime méditerranéen contient des glucides complexes qui sont fermentés par un microbiote sain produisant des acides gras à chaîne courte. Il a des effets bénéfiques sur le microbiote et son profil métabolomique. Une plus grande diversité du microbiote intestinal a également été rapportée même après une consommation modérée de vin rouge. Le régime méditerranéen accroît l’abondance des Bacteroides et diminue le nombre de Firmicutes. Chez les personnes dont l’observance du régime méditerranéen est meilleure, la concentration fécale de butyrate et de propionate est plus élevée. On a détecté chez elles un ratio élevé bifidobactéries/ Escherichia coli, associé à un bon équilibre intestinal et à un bon état de santé. Ce régime augmente également les taux de Faecalibacterium prausnitzii et de certaines espèces appartenant aux Clostridiales, ainsi que la capacité du microbiote intestinal à métaboliser les polyphénols alimentaires.

Le régime méditerranéen a été proposé en complément thérapeutique pour les patients atteints de maladies métaboliques (diabète de type 2, obésité, stéatose hépatique non alcoolique) car il pourrait résorber la dysbiose et les troubles du profil métabolomique souvent détectés chez ces patients. Cependant, nous aurions besoin de davantage de données sur les profils de variation temporelle du microbiote intestinal dans le cadre du régime méditerranéen. Nous devons également mieux comprendre les mécanismes par lesquels l’alimentation modifie le microbiote et de quelle manière la dysbiose est impliquée dans la pathogenèse des maladies non transmissibles.

Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
Revue de presse

Microbiote intestinal et fragilité liée à l'âge

Revue de presse 

Par le Pr. Markku Voutilainen
Faculté de médecine de l’Université de Turku ; gastro-entérologie, Hôpital universitaire de Turku, Finlande

Les auteurs ont analysé le rôle du microbiote intestinal et de la dysbiose dans le développement du vieillissement [1] qui se manifeste par de la fragilité liée à l’âge, la perte de poids, une faiblesse musculaire, la fatigue, un mode de vie sédentaire et une marche ralentie. La faiblesse musculaire est due à la sarcopénie, caractérisée par une perte de masse et de fonction musculaire (force et puissance) et dont la prévalence est de 5 à 13 % chez les personnes âgées de 60 à 70 ans, et de 11 à 50 % chez celles de plus de 80 ans.

Le vieillissement se traduit par une augmentation des réponses inflammatoires, un dysfonctionnement endothélial, des modifications du système immunitaire et un accroissement du stress nitrosatif. Avec l’âge, la biodiversité du microbiote intestinal diminue, et le nombre de micro- organismes pathogènes augmente. Ces modifications sont typiques des personnes de plus de 65 ans et sont imputables à une altération de l’alimentation causée par une réduction de l’appétit, une perte des dents et de l’efficacité de la mastication, des troubles de la déglutition et une malabsorption. Les modifications du microbiote ne sont pas uniformes, mais elles pourraient être associées à la localisation géographique, à l’habitat, au mode de vie (tabagisme, consommation d’alcool), à l’activité physique, à la prise d’antibiotiques et d’autres médicaments ainsi qu’à des facteurs génétiques. Les modifications du microbiote liées à l’âge les plus typiques sont la diminution des bactéries productrices de butyrate (bifidobactéries, Firmicutes) et l’augmentation des Bacteroides. Malgré une importante hétérogénéité interindividuelle, le nombre de micro-organismes pathogènes opportunistes tend à augmenter, ce qui peut accentuer la perméabilité intestinale.

La dysbiose est associée à une réduction de la synthèse des protéines musculaires (résistance anabolique), qui conduit à la sarcopénie. La dysbiose pourrait également réduire la biodisponibilité des acides aminés alimentaires et perturber le métabolisme vitaminique des cellules musculaires squelettiques. Les principaux mécanismes de la sarcopénie induite par la dysbiose sont la résistance anabolique, l’inflammation, les troubles du métabolisme mitochondrial, le stress oxydatif et l’insulinorésistance. La réduction des acides gras à chaîne courte pourrait jouer un rôle central dans les troubles du métabolisme énergétique et protéique musculaire.

Les carences nutritionnelles et l’inactivité physique jouent un rôle central dans la pathogenèse de la sarcopénie et elles ont également un impact majeur sur le microbiote intestinal. Réciproquement, la dysbiose intestinale pourrait moduler l’inflammation systémique, la synthèse des protéines musculaires, la sensibilité à l’insuline et le métabolisme énergétique. À l’heure actuelle, rien ne prouve que la composition du microbiote soit particulière chez les patients sarcopéniques. La présente revue soutient cependant le concept selon lequel le microbiote intestinal joue un rôle dans les effets de la nutrition sur les cellules musculaires (« axe intestin-muscle »).

Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
Revue de presse

Principales contributions autour du microbiote intestinal de l’enfant

Retour de Congrès

Par le Pr Patrick Bontems
Université Libre de Bruxelles, Bruxelles, Belgique

L’ESPGHAN, créé il y a plus de 50 ans, organise un congrès annuel dont l’audience dépasse les 4 000 participants venant de plus de 100 pays différents.

Développement du microbiote à la naissance

Le développement du microbiote après la naissance est déterminé par les échanges entre la mère et l’enfant. La perturbation de ces échanges augmente le risque de survenue de certaines maladies [1]. Les principales causes de dysbioses induites en période néonatale sont la naissance par césarienne, l’utilisation d’antibiotiques et l’absence ou l’arrêt prématuré (avant l’âge de 4 à 6 mois) de l’allaitement maternel. Certaines indications de césarienne et un usage raisonné des antibiotiques ne pouvant être remis en question, la promotion de l’allaitement maternel est une priorité pour les pédiatres.

Diverses études présentées renforcent cette notion. Par exemple, 267 enfants ont été suivis par Sakwinski et al. jusqu’à l’âge de 2 ans. L’étude longitudinale a montré que les enfants non-allaités avaient un risque d’infections respiratoires 3,84 fois supérieur. L’effet protecteur de l’allaitement est dû à la modulation du microbiote, le lait maternel favorisant sa composition en faveur d’une prédominance de bifidobactéries comme le rappelait Berger et al. Cette étude portait sur l’analyse de selles recueillies auprès de nourrissons exclusivement allaités aux États-Unis, en Belgique, en Italie, aux Philippines et au Bangladesh. Cependant, la prédominance de bifidobactéries n’était présente que parmi 17 % des nourrissons aux États-Unis, contre une moyenne de plus de 70 % dans les autres pays. Cette différence pourrait être due à la composition du lait maternel, au microbiote de la mère, ou à d’autres facteurs environnementaux.

La composition du microbiote des enfants nés prématurément est perturbée en raison de la séparation de la mère et de l’enfant. L’administration de lait maternel permet de réduire ces perturbations [2]. Ainsi, l’administration de colostrum par voie oropharyngée favorise la présence de bifidobactéries comme le montrent Feferbaum et al. La pasteurisation du colostrum entraîne toutefois une augmentation des proteobactéries comparativement au colostrum cru. L’administration concomitante de colostrum et de Bifidobactérium breve, dans une étude réalisée par Yamashiro et al. au Japon, semble permettre d’augmenter la colonisation du tube digestif par des bifidobactéries et d’entraîner une amélioration de la croissance chez le prématuré.

Oligosaccharides (HMO)

Les HMOs représentent le troisième composant du lait maternel après le lactose et les graisses [3]. Ce sont principalement des galacto-oligosaccharides qui ont des effets sur le microbiote [4]. Ces dernières années, les laits pour nourrissons ont été supplémentés par certains HMOs [5]. De nombreuses études ont été présentées à ce sujet durant le congrès. Par exemple, Binia et al. ont montré que l’absence de 2’-fucosylated HMO dans le lait de mère, dû à une variation génétique, entraîne une fréquence plus élevée d’infections respiratoires. Sprenger et al. ont rapporté les résultats d’un essai randomisé contrôlé montrant que cet effet protecteur est dû à un microbiote plus riche en bifidobactéries. Tomasi et al. ont étudié les capacités cognitives de souris en fonction de la présence ou absence de 6’-sialyllactose. La mémoire et l’orientation spatiale des souris est améliorée en présence de ce HMO dans l’alimentation des jeunes souris.

Transplantation fécale

La transplantation fécale est une thérapeutique destinée à renouveler le microbiote d’un receveur en cas de dysbiose. L’indication indiscutablement reconnue à ce jour est la colite à Clostridium réfractaire ou récidivante. Une étude chinoise, réalisée par Zhang et al. sur 11 enfants, rapporte une efficacité de 64 % après une seule administration, les cas restants s’améliorant après 2-3 administrations. Dans une deuxième présentation, les mêmes auteurs mettaient en garde contre le risque de ces transplantations, en particulier chez les patients immunodéprimés. Des effets indésirables étaient rapportés chez un quart des patients, mais surtout deux cas sévères ont été observés, dont un entraînant le décès.

Symbiotiques

Le développement de symbiotiques représente probablement une solution d’avenir plus reproductible (pas de variation en fonction des donneurs) et potentiellement moins dangereuse que la transplantation fécale. Durant le congrès, l’intérêt de symbiotiques a été illustrée notamment par une étude réalisée en Russie par Larkova et al. (allergie alimentaire) et par Lin et al. (cirrhose hépatique non-alcoolique). Pour cette dernière, les auteurs ont montré, chez la souris, l’effet protecteur d’un symbiotique pour prévenir la fibrose et la stéatose en cas de régime riche en graisse. L’assemblée s’est ensuite intéressée aux effets cliniques des probiotiques seuls. L’efficacité de Lactobacillus rhamnosus pour améliorer les symptômes en cas d’allergie aux protéines du lait de vache a été démontrée dans un essai contrôlé randomisé avec bras placebo par Bastruk et al. L’efficacité de certains probiotiques pour diminuer la durée d’une gastroentérite aiguë a été rappelée par Nardi et al., pour réduire les effets indésirables digestifs des antibiotiques par Moretti et al., et pour les troubles digestifs fonctionnels des nourrissons par Nocerino et al.

Microbiote et maladies du tube digestif

Les symptômes de dyspepsie sont extrêmement fréquents. Des inhibiteurs de la pompe à protons sont souvent prescrits. Acharyva et al. ont montré que 60 % des enfants avec des symptômes digestifs évoquant une pathologie oesophagienne ou gastrique présentaient une prolifération/ pullulation bactérienne de l’intestin grêle (PBIG). Les auteurs suggèrent de réaliser un test au glucose en cas de gastroscopie négative chez ces patients.

Divers auteurs ont mis en évidence le rôle du microbiote dans la maladie de Crohn, la mucoviscidose et l’intolérance au lactose. En revanche, une revue systématique effectuée par Bezawada et al. n’a pas permis de démontrer le rôle du microbiote dans l’autisme. De même, Lukasik n’a pas pu démontrer de lien entre l’administration d’antibiotiques en période néonatale et l’autisme.

Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
Retour congrès

Focus sur le 4e congrès biennal de la ESNM

Retour de Congrès 

Par le Pr. Fernando Man
Gastro Health, Buenos Aires, Argentine

Bandeau-article4-NL08

Le 4e Congrès biennal de la Société européenne de neurogastroentérologie et de motilité (NeuroGASTRO 2019) s’est tenu du 5 au 7 septembre à Lisbonne (Portugal). Plus de 400 médecins et chercheurs du monde entier ont fait de ce congrès un événement exceptionnel, grâce à la présentation des toutes dernières recherches expérimentales et de nombreuses conférences passionnantes.

Syndrome de l’intestin irritable et microbiote 

Le syndrome de l’intestin irritable (SII) est un trouble chronique associé à des douleurs et à une modification de la consistance et de la fréquence des selles. L’influence de la composition du microbiote intestinal a été proposée comme axe d’étude [1]. Une diminution de la diversité alpha, une augmentation du ratio Firmicutes/Bacteroidetes et une abondance accrue de Streptococcus et de Ruminococcus ont été décrites. Même si le traitement par probiotiques dans le SII n’est pas encore clairement défini, de nombreuses études ont montré des résultats prometteurs. Une pullulation bactérienne de l’intestin grêle (PBIG), diagnostiquée par un test respiratoire au lactulose/ glucose, a été associée au SII dans un sous-groupe de patients.

Lors d’un atelier Biocodex intitulé « Stratégies basées sur le microbiome dans la prise en charge du SII », le Professeur Magnus Simren a souligné le fait que le microbiote intestinal est altéré dans un sous-groupe de patients atteints de SII. Il a été proposé d’inscrire la physiopathologie du SII dans un cadre intégré, dans lequel le microbiote intestinal pourrait interagir avec le système immunitaire intestinal, la barrière épithéliale et l’axe intestin-cerveau. Une signature microbienne intestinale spécifique pourrait être liée à la sévérité des symptômes du SII. En outre, les probiotiques pourraient agir sur l’hypersensibilité viscérale, le dysfonctionnement neuromoteur, la dysbiose, l’altération de la barrière intestinale et l’inflammation de bas grade. En fait, la plupart des méta-analyses sont en faveur de l’utilisation des probiotiques dans le SII [2]. Reste à déterminer quel probiotique est utile chez chaque patient.

Dans un essai contrôlé versus placebo, une souche de l'espèce Bifidobacterium longum (anciennement B. infantis) s’est montrée supérieure au placebo concernant l’évaluation globale du soulagement des symptômes dans tous les sous-types de SII [3]. Le mécanisme proposé est une normalisation de l’équilibre entre les cytokines anti- et pro-inflammatoires IL-10 et IL-12.

Le régime pauvre en FODMAP a récemment été proposé dans le cadre de la prise en charge du SII. Davantage d’études doivent être réalisées afin d’évaluer son effet à long terme sur la composition du microbiote ainsi que ses conséquences nutritionnelles. La réponse à une intervention de ce type pourrait être prédite par les profils bactériens fécaux.

De nombreuses études passionnantes sur le SII et le microbiote ont été présentées à l’occasion de ce congrès.

La transplantation de microbiote fécal (TMF) est devenue un candidat prometteur dans le traitement du SII. Toutefois, une récente méta-analyse [4] n’a montré aucune différence entre le placebo et la TMF. La disponibilité d’un super donneur (sportif, jeune et en bonne santé, n’ayant pris des antibiotiques que 3 fois dans sa vie), comme l’a montré une étude présentée par M. El Salhy, pourrait être la clé pour obtenir de meilleurs résultats.

Dans un poster présenté par V. Passananti, l’espèce Bifidobacterium infantis a démontré une amélioration des symptômes chez les non-répondeurs au régime pauvre en FODMAP. Les résultats étaient similaires pour la sévérité et la fréquence des douleurs et de la distension abdominale. Le nombre de cas sévères de SII a également été réduit de moitié et une réduction significative des scores d’anxiété (p < 0,005) et de dépression (p < 0,006) a été observée.

L’effet d’un probiotique contenant seulement Saccharomyces boulardii (Sb) ou plusieurs espèces (Lactobacillus casei, L. rhamnosus, L. acidophilus, L. bulgaricus, Bifidobacterium longum et B. brevis) a été étudié chez 53 patients souffrant de ballonnements et de douleurs abdominales, et a été présenté par D. Vera dans une étude. Les deux probiotiques ont entraîné une diminution des ballonnements et des douleurs, avec un effet plus important de Sb pour le soulagement des douleurs abdominales (p < 0,001).

L’impact de S. boulardii (Sb) chez des patients présentant un SII-D et une PBIG a été évalué par L. Bustos Fernandez. Une tendance à une plus forte diminution de l’ASC de la production d’hydrogène au test respiratoire a été observée dans le groupe Sb, avec une amélioration du score IBSSSS et une normalisation des selles suivant l’échelle de Bristol par rapport au groupe témoin. L’espèce Faecalibacterium prausnitzii était plus abondante chez les patients présentant une amélioration clinique marquée avec Sb, à savoir une normalisation de la consistance des selles (+ 120 %), un test PBIG négatif avec une amélioration des symptômes liés au SII (+ 400 %) et une réduction des douleurs abdominales (- 76,5 %). Les analyses du mycobiote ont montré des modifications significatives de Sb et des lignées phylogénétiques proches (les genres Saccharomyces [+ 27 %], Debaryomyces [– 88 %] et Filobasidium [> 1 000 %]). En outre, le genre Penicilium et la lignée supérieure proche étaient 100 fois plus abondants dans les échantillons PBIG-négatifs après le traitement par Sb.

Microbiote et obésité 

Le rôle du microbiote dans l’obésité a suscité un vif intérêt, et il a été suggéré que certaines signatures microbiennes pourraient augmenter la capacité d’absorption énergétique.

P. Enck a souligné le fait qu’une faible diversité du microbiote intestinal pourrait également être utilisée comme biomarqueur de l’obésité, et qu’une signature microbienne spécifique entraîne une préférence pour les aliments hautement caloriques. Le rôle de l’altération du ratio Firmicutes / Bacteroidetes a été avancé, mais cette caractéristique n’est pas spécifique à l’obésité. Cette hypothèse n’a pas été confirmée dans une récente méta-analyse [5].

Pour qu’un biomarqueur putatif de l’obésité soit pertinent, la composition du microbiote doit être sensible aux variations de poids, ce qui n’est pas toujours observé en chirurgie bariatrique ; inversement, la modification du microbiote doit induire une variation de poids. Ni les pré/probiotiques, ni la TMF n’ont atteint cet objectif.

Même si l’on sait que le microbiote intestinal est impliqué dans l’obésité, il n’est pas possible aujourd’hui d’identifier une signature fiable à titre de biomarqueur. Les essais cliniques conduits chez l’Homme sont perturbés par l’alimentation quotidienne et d’autres facteurs comme les probiotiques, l’exercice physique et la TMF.

Microbiote et axe intestin-cerveau

Le microbiote intestinal joue un rôle dans la détermination de la santé mentale, aspect ciblé par les «psychobiotiques». Les probiotiques, les prébiotiques, l’alimentation, la TMF et l’altération de consortiums microbiens et leurs métabolites représentent un champ d’investigation passionnant dans le cadre des troubles liés au stress.

G. Clarke a présenté des études montrant que le microbiote intestinal peut moduler le volume de l’amygdale et qu’une hypertrophie dendritique au niveau des neurones de l’amygdale basolatérale est observée chez les animaux axéniques. La sérotonine et le tryptophane, un précurseur de la sérotonine, jouent un rôle dans l’axe intestin-cerveau. Le microbiote peut réguler le système sérotoninergique de l’hippocampe et une déplétion en tryptophane normalise les comportements dépressifs.
De plus, l’altération du microbiote est associée à un comportement de désespoir induit par le stress chez le rat ; la restauration des taux intestinaux de Lactobacillus a normalisé le comportement induit par le stress et a amélioré la production de sérotonine. Une réduction de la diversité microbienne est également présente dans la dépression, avec une diminution de Prevotella. Les comportements de type anhédonie, l’anxiété et le profil métabolique du tryptophane peuvent être transférés via le microbiote intestinal. Les travaux présentés par G. Clarke montrent que l’espèce B. longum pourrait jouer un rôle antidépresseur chez le rat et réduire la réponse au stress chez le volontaire sain en bonne santé.

Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
Retour congrès

Critères cliniques et biologiques de réponse à un traitement standardisé de rectocolite chez l’enfant : une étude multicentrique prospective

Article commenté - Rubrique Enfant

Par le Pr Emmanuel Mas
Gastro-entérologie et nutrition, Hôpital des Enfants, Toulouse, France

Section of the large intestine with Ulcerative Colitis. Illustration.

Commentaire de l’article original de Hyams et al. (Lancet 2019 [1])

Du fait de l’absence de données basées sur les preuves d’efficacité thérapeutique, le choix des traitements pour les enfants chez lesquels une rectocolite hémorragique (RCH) vient d’être diagnostiquée est aléatoire. C’est pourquoi les auteurs ont fait l’hypothèse que des facteurs cliniques, transcriptomiques et microbiens pourraient prédire l’évolution de la maladie avant le traitement. Dans cette étude de cohorte initiale, ils ont recruté des patients de 4 à 17 ans atteints de RCH nouvellement diagnostiquée dans 29 centres aux États-Unis et au Canada. Les patients ont d’abord reçu de la mésalazine ou des corticoïdes selon un protocole préétabli, avec des critères d’escalade vers des immunomodulateurs (thiopurines) ou une biothérapie par anti-TNFα. Un séquençage de l’ARN a été réalisé pour définir l’expression génique rectale avant le traitement, et un séquençage 16S pour caractériser les microbiotes rectal et fécal. Le critère principal était une rémission sans corticoïde à la 52e semaine, sans autre traitement que la mésalazine.

Que sait-on déjà à ce sujet ?

Les scores cliniques, biologiques et/ou endoscopiques, tels que le PUCAI (pediatric ulcerative colitis activity index), permettent de classer la sévérité de la RCH chez l’enfant. On distingue les formes minimes (PUCAI 10-30), modérées à sévères (35-60) et sévère/fulminante (≥ 65). Les 5-aminosalycilates peuvent être efficaces dans les formes minimes, alors que les corticoïdes sont utilisés dans les formes modérées ; toutefois, un certain nombre d’enfants seront cortico-dépendants ou réfractaires et nécessiteront une escalade thérapeutique (immunomodulateurs, voire anti-TNFα).

Cependant, il n’existe pas d’étude prospective ayant évalué la réponse à un traitement standardisé lors du diagnostic de RCH.

Image

Quels sont les principaux résultats apportés par cette étude ? 

Dans cette étude prospective multicentrique, réalisée dans 29 centres aux États-Unis et au Canada entre 2012 et 2015, 467 enfants âgés de 4 à 17 ans ont été recrutés (Figure 1). Le critère principal de jugement était la rémission, définie par un PUCAI < 10, à la semaine 52, sans autre traitement que la mésalazine (sans corticoïdes ni colectomie). Les auteurs ont défini la sévérité initiale en minime (traitement par mésalazine ou corticoïdes oraux avec PUCAI < 45) et modérée à sévère (corticoïdes oraux avec PUCAI ≥ 45 ou corticoïdes intraveineux). En plus des paramètres cliniques et biologiques habituels, cette étude a évalué l’expression génique à partir de biopsies rectales ainsi que les microbiomes rectal et fécal avant traitement. 428 enfants ont débuté le traitement : âge moyen de 12,7 ans, 50 % de filles, 42 % de formes minimes (PUCAI moyen de 31,9 ± 12,1 DS) et 58 % de formes modérées à sévères (PUCAI moyen de 62,9 ± 13,2 DS). À 52 semaines, 150 (38 %) des 400 participants évaluables étaient en rémission sans corticoïdes, dont 80 (49 %) avaient une forme minime et 70 (30 %) avaient une forme modérée à sévère (Tableau 1).

Des paramètres cliniques, biologiques et endoscopiques qui étaient associés à une rémission sans corticoïdes ont été validés dans une autre étude prospective indépendante ayant inclus 307 enfants. À noter que la rémission sans corticoïdes est obtenue avant 16 semaines pour les formes modérées à sévères (après quoi elle ne peut plus être obtenue) alors qu’elle peut l’être jusqu’à 52 semaines dans les formes minimes. En outre, même des enfants avec des formes très sévères ont pu obtenir une rémission sans corticoïdes à 52 semaines (41/133 [31 %] avec PUCAI ≥ 65) et, à l’inverse, certains enfants qui avaient une forme minime étaient sous anti-TNFα à 52 semaines (13/90 [14 %] avec PUCAI < 35). Les auteurs ont trouvé que 33 gènes étaient exprimés différemment entre les patients ayant une forme modérée à sévère qui avaient obtenu une rémission sans corticoïdes (n = 51) ou non (n = 101). Parmi ces gènes, 18 étaient surexprimés, associés au transport cellulaire et à des canaux ; 15 étaient sous-exprimés, associés à la réponse antimicrobienne (Figure 2). La voie de signalisation des α-défensines antimicrobiennes avait la plus forte association négative avec la rémission sans corticoïdes à la semaine 52. Cependant, l’ensemble de ces 33 gènes était associé négativement avec la nécessité d’une escalade thérapeutique vers les anti-TNFα.

Image

Points clés

  • Les choix thérapeutiques dépendent de la sévérité
    de la RCH (scores PUCAI, Mayo) mais aussi de la réponse thérapeutique à 4 semaines

  • D’autres critères (taux Hb, éosinophiles rectaux, 25-OH vitamine D) sont aussi à prendre en considération

  • L’intégration de nouveaux paramètres (expression génique et microbiote) pourrait faciliter une médecine personnalisée dans le futur

Image

Quelles sont les conséquences en pratique ?

Il est important de retenir les facteurs prédictifs de rémission sans corticoïdes et d’escalade thérapeutique déterminées d’après les analyses multivariées.


Les facteurs prédictifs d’une rémission sans corticoïdes à 52 semaines étaient :

  • PUCAI < 45, Hb ≥ 10 g/dL ;
  • rémission à 4 semaines ;
  • expression faible des gènes antimicrobiens ;
  • abondance relative augmentée des Ruminococcaceae et diminuée de Sutterella.

Les facteurs prédictifs d’une escalade vers les anti-TNFα étaient :

  • score Mayo total ≥ 11 ;
  • nombre d’éosinophiles dans biopsies rectales < 32 par champs à fort grossissement ;
  • 25O-H vitamine D < 20 ng/mL ;
  • Hb < 10 g/dL ;
  • absence de rémission à 4 semaines ;
  • diminution des gènes impliqués dans le transport et des gènes antimicrobiens ;
  • abondance relative diminuée de Oscillospira.

Conclusion

Cette étude a montré des paramètres qu’il faut prendre en considération dans les choix thérapeutiques pour les enfants nouvellement diagnostiqués avec une RCH. L’analyse de l’expression des gènes rectaux et du microbiote pourrait aider à prédire la réponse thérapeutique, mais aussi à déterminer de nouvelles cibles thérapeutiques.

Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
Article commenté

Parkinson : découverte et inhibition du métabolisme de la lévodopa par les bactéries intestinales

Article commenté - Rubrique adulte

Par le Pr. Harry Sokol
Gastro-entérologie et nutrition, Hôpital Saint-Antoine, Paris, France

Levodopa (L-DOPA) Parkinson's disease drug, molecular model. L-DOPA is a precursor of the catecholamine neurotransmitters dopamine, norepinephrine and epinephrine and is used in the treatment of Parkinson's disease. Atoms are represented as wires. A map of electrostatic potential surrounds the molecule.

Commentaire de l’article original de Rekdal et al. (Science 2019 [1])

Le microbiote intestinal humain métabolise la lévodopa (L-dopa), médicament utilisé pour le traitement de la maladie de Parkinson, réduisant potentiellement la disponibilité du médicament et provoquant des effets indésirables. Cependant, les micro-organismes, gènes et enzymes responsables de cette activité chez les patients et la sensibilité aux médicaments inhibiteurs ciblant l’hôte sont inconnus. Ici, les auteurs décrivent une voie inter-espèces pour le métabolisme de la L-dopa dans le microbiote intestinal. La conversion de la L-dopa en dopamine par une tyrosine décarboxylase dépendante du pyridoxal phosphate chez Enterococcus faecalis est suivie par la transformation de la dopamine en m-tyramine par une déshydroxylase dépendante du molybdène d’Eggerthella lenta. Ces enzymes prédisent le métabolisme des médicaments dans des microbiotes intestinaux humains complexes. Le médicament, qui cible la décarboxylase des acides aminés aromatiques de l’hôte, ne prévient pas la décarboxylation de la L-dopa par le microbiote intestinal ; mais les auteurs ont identifié un composé qui inhibe cette activité dans les microbiotes des patients atteints de maladie de Parkinson, augmentant ainsi la biodisponibilité de la L-dopa dans un modèle murin.

Que sait-on déjà à ce sujet ?

La maladie de Parkinson est une maladie neurologique invalidante affectant plus de 1 % de la population mondiale âgée de plus de 60 ans. Le principal médicament utilisé pour traiter la maladie de Parkinson est la lévodopa (L-dopa) [2]. Pour être efficace, la L-dopa doit pénétrer dans le cerveau et être convertie en dopamine (neurotransmetteur) par une enzyme humaine, la décarboxylase des acides aminés aromatiques (AADC). Cependant, le tractus gastro-intestinal est également un site majeur pour la décarboxylation de la L-dopa, et ce métabolisme est problématique car la dopamine générée en périphérie ne peut pas traverser la barrière hémato-encéphalique et provoque des effets secondaires indésirables. Ainsi, la L-dopa est co-administrée avec des médicaments qui bloquent son métabolisme périphérique, y compris le carbidopa, qui est un inhibiteur de l’AADC. Même avec ces médicaments, jusqu’à 56 % de la L-dopa ne parvient pas au cerveau. En outre, l’efficacité et les effets secondaires du traitement par L-dopa sont extrêmement hétérogènes chez les patients atteints de Parkinson, et cette variabilité ne peut être complètement expliquée par les différences de métabolisme de l’hôte. Des études antérieures chez l’homme et sur modèles animaux ont démontré que le microbiote intestinal peut métaboliser la L-dopa [3]. La principale voie proposée implique une décarboxylation initiale de la L-dopa en dopamine, suivie par la conversion de la dopamine en m-tyramine par une réaction de déshydroxylation.

Bien que ces activités métaboliques se soient produites dans des échantillons de microbiote intestinal, les organismes spécifiques, les gènes et les enzymes responsables restent inconnus. Les effets des inhibiteurs ciblant l’hôte, comme la carbidopa, sur le métabolisme microbien intestinal de la L-dopa ne sont pas clairs non plus. Pour faire un premier pas vers la compréhension du rôle du microbiote intestinal dans le traitement de la maladie de Parkinson, les auteurs ont cherché à élucider les bases moléculaires du métabolisme microbien intestinal de la L-dopa et de la dopamine.

Image

Points clés

  • Certaines bactéries du micro- biote intestinal peuvent méta- boliser la L-dopa en dopamine puis en m-tyramine, limitant la disponibilité de la L-dopa au cerveau

  • Le microbiote joue un rôle dans l’efficacité et la toxicité de la L-dopa pour le traitement de la maladie de Parkinson

  • L’utilisation d’un inhibiteur spé- cifique du métabolisme bactérien de la L-dopa peut permettre d’augmenter la biodisponibilité de la L-dopa, et donc d’augmenter son efficacité

Quels sont les principaux résultats apportés par cette étude ? 

Les auteurs ont émis l’hypothèse que la décarboxylation de la L-dopa nécessiterait une enzyme dépendante du pyridoxal phosphate (PLP). Ils ont analysé les génomes de bactéries intestinales et identifié une tyrosine décarboxylase conservée (TyrDC) dans Enterococcus faecalis (Figure 1A). Des expériences génétiques et biochimiques ont révélé que TyrDC décarboxyle simultanément la L-dopa et son substrat préféré, la tyrosine. Ensuite, ils ont utilisé des méthodes d’enrichissement pour isoler une souche d’Eggerthella lenta capable de déhydroxyler la dopamine (Figure 1A). Une analyse transcriptomique a permis d’identifier que l’enzyme responsable de cette activité est une déshydroxylase dépendante du molybdène (Dadh). De façon inattendue, la présence de cette enzyme dans le microbiote intestinal n’est pas corrélée avec le métabolisme de la dopamine. C’est en fait un polymorphisme génétique sur un nucléotide (SNP) dans le gène Dadh qui prédit l’activité. La capacité à métaboliser la L-dopa selon cette voie était variable d’un sujet à l’autre (Figure 1B). Dans le microbiote intestinal des patients atteints de Parkinson, l’abondance d’E. faecalis, de tyrDC, et du SNP de Dadh est corrélée avec le métabolisme de la L-dopa et de la dopamine, ce qui confirme leur pertinence. Les auteurs ont ensuite montré que la carbidopa, qui inhibe l’AADC humain, n’avait un effet que minime sur la décarboxylation de la L-dopa par E. faecalis, et un effet nul sur le microbiote intestinal complexe de patients, ce qui suggère que ce médicament ne peut probablement pas empêcher le métabolisme microbien de la L-dopa in vivo. Etant donné la préférence de TyrDC pour la tyrosine, les auteurs ont recherché des molécules « imitant » la tyrosine. Ils ont identifié la (S)-α-fluorométhyltyrosine (AFMT) comme inhibiteur sélectif de la décarboxylation bactérienne intestinale de la L-dopa. L’AFMT, co-administrée avec la L-dopa et la carbidopa à des souris colonisées avec E. faecalis, permettait d’augmenter la concentration sérique de L-dopa.

Quelles sont les conséquences en pratique ? 

Ces résultats démontrent que le microbiote intestinal est un acteur du métabolisme de la L-dopa et qu’il peut jouer un rôle dans son efficacité et sa toxicité. Cette étude ouvre la voie vers la mise au point de biomarqueurs prédictifs de l’efficacité et de la toxicité de la L-dopa. D’autre part, étant donné que les mécanismes moléculaires sont élucidés, l’utilisation d’inhibiteurs spécifiques du métabolisme de la L-dopa par le microbiote intestinal est envisageable chez les patients porteurs des activités bactériennes délétères dans leur microbiote.

Conclusion

Chez certains patients, le microbiote intestinal peut métaboliser la L-dopa. Cela joue possiblement un rôle dans l’hétérogénéité de l’efficacité et de la toxicité de ce traitement de la maladie de Parkinson. L’utilisation d’inhibiteurs de ce métabolisme bactérien pourrait être une solution. Plus globalement, cette étude est une nouvelle preuve du rôle du microbiote intestinal dans la pharmacocinétique et la pharmacodynamie des médicaments. Elle ouvre des perspectives prometteuses pour le nouveau champ que l’on pourrait appeler la « pharmacomicrobiomique ».

Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
Article commenté

Microbiote et maladies métaboliques

Synthèse

Par le Pr. Yolanda Sanz
Unité de recherche en Écologie microbienne, Nutrition et Santé ; Institut d’agrochimie et de technologie alimentaire ; Conseil supérieur de recherches scientifiques (IATA-CSIC), Valence, Espagne

Human digestive system microbiota, 3D illustration.

En raison de sa forte prévalence et de son rôle dans le développement de multiples maladies non transmissibles (syndrome métabolique [SMet] et diabète de type 2 [DT2]), l’obésité est l’un des plus grands défis de santé publique du XXIe siècle. Les données prouvant le rôle des altérations du microbiote intestinal, en partie dues à une alimentation déséquilibrée, dans les mécanismes faisant le lien entre l’obésité, l’inflammation et les troubles métaboliques, offrent de nouvelles perspectives : elles permettent de mieux comprendre l’étiologie de la maladie et mettre au point des stratégies de prise en charge. Les pistes explorées portent notamment sur la transplantation de microbiote fécal (TMF), les aliments destinés à nourrir nos micro-organismes bénéfiques (prébiotiques) et nos bactéries indigènes (probiotiques) pour restaurer nos intestins avec les micro-organismes bénéfiques manquants. Les éléments dont on dispose sont prometteurs mais il faut encore identifier les bactéries intestinales qui aideront à prévenir l’obésité, et personnaliser les régimes alimentaires afin d’optimiser les fonctions métaboliques de nos micro-organismes intestinaux.

Obésité, syndrôme métabolique et diabète

L’obésité est une épidémie mondiale qu’aucun pays n’a su endiguer à ce jour. Depuis les années 1980, la prévalence globale de l’obésité a triplé aux États-Unis et dans de nombreux pays européens, faisant de cette maladie l’un des plus grands défis de santé publique du XXIe siècle. En effet, l’obésité est associée à des taux élevés de comorbidités, qui constituent un facteur de risque majeur de multiples maladies non transmissibles. L’insulino-résistance induite par l’obésité est considérée comme un facteur clé du SMet, entraînant souvent une défaillance des cellules β pancréatiques et conduisant au DT2 [1].

Inflammation métabolique : de l'obésité aux comorbidités chroniques

On sait aujourd’hui que l’état inflammatoire chronique associé à l’obésité affecte les tissus adipeux mais également d’autres organes notamment le cerveau, les muscles, le foie, le pancréas et l’intestin [1, 2]. L’implication du système immunitaire intestinal et les micro-organismes qui se développent en cas d’alimentation déséquilibrée sont notamment apparus récemment comme des facteurs supplémentaires de l’inflammation métabolique associée à l’obésité, et pourraient également représenter des cibles thérapeutiques [2, 3].

Image

En quoi le microbiote intestinal est-il impliqué?

L’implication du microbiote intestinal dans l’obésité a été en partie déduite d’études observationnelles faisant état de dysbiose chez des sujets obèses comparativement à des sujets minces dans des évaluations transversales. Les preuves de modulations du microbiote intestinal lors d’interventions diététiques, médicamenteuses ou chirurgicales dans le but de perdre du poids et d’améliorer les complications métaboliques ont permis d’établir des relations similaires où l’obésité était associée à une réduction de la diversité des espèces et une augmentation des taxa bactériens comme Proteobacteria et Bilophila wadsworthia. En revanche, les phénotypes métaboliques sains étaient souvent associés à des augmentations du phylum Bacteroidetes ou du ratio Firmicutes/Bacteroidetes ou des genres Bacteroides, Prevotella, Akkermansia, Faecalibacterium ou Christensenella [4, 5]. Les résultats obtenus étaient cependant parfois contradictoires, en partie à cause de l’hétérogénéité des études et de leurs limites méthodologiques. D’autres méta-analyses ont montré que le seul biomarqueur qui pouvait être généralisé concernant l’obésité était la réduction de la diversité des espèces bactériennes [6]. Par ailleurs, les sujets obèses n’ont probablement pas tous le même profil dysbiotique, notamment en raison de la grande variabilité du microbiote et de la complexité des phénotypes métaboliques (obésité avec et sans autres complications). Plus récemment, les altérations du microbiote intestinal qui précèdent le développement de l’obésité ont été identifiées comme un des facteurs étiologiques. Une récente étude longitudinale a notamment montré qu’une réduction de la diversité des espèces bactériennes, liée à de mauvaises habitudes alimentaires, produit les conditions favorables à une prolifération de Proteobacteria (entérobactéries), qui précède l’apparition du surpoids chez des enfants suivis pendant 4 ans [7].

Une preuve encore plus concluante du rôle causal du microbiote dans la définition du phénotype métabolique du sujet a été obtenue grâce à la TMF, via laquelle le microbiote dysbiotique de sujets malades a été transféré à de nouveaux animaux receveurs. La plupart de ces expériences ont montré que la TMF était suffisante pour reproduire le phénotype métabolique du donneur (mince ou obèse) [8].

Le biomarqueur microbiotique le plus fréquemment associé à l'obésité est la réduction de la diversité d'espèces bactériennes, qui pourrait également prédisposer au développement de l'obésité, de l'inflammation chronique et des complications métaboliques.

Mécanismes d'action médiés par le microbiote

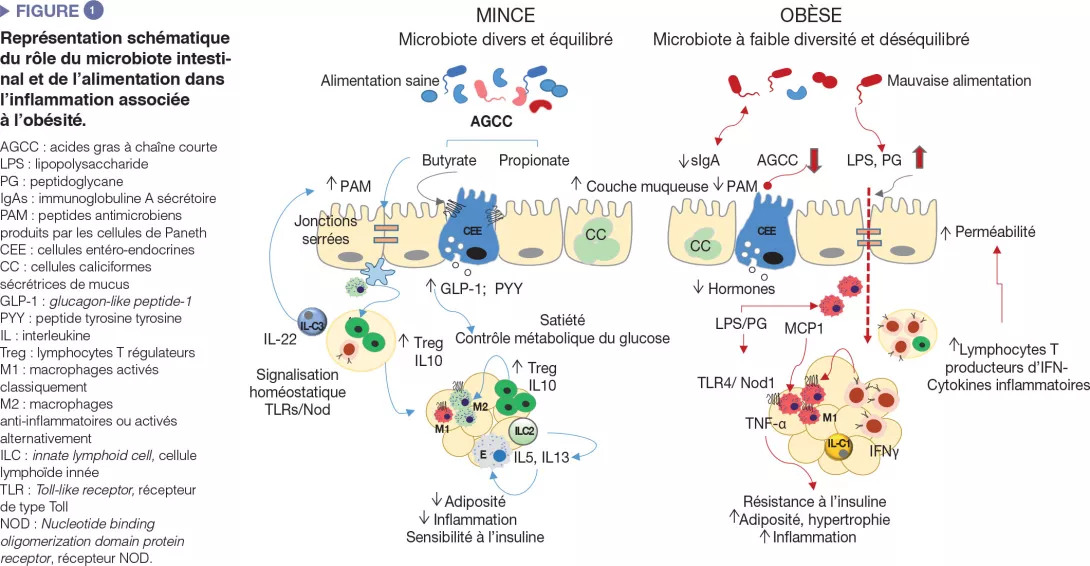
Les micro-organismes intestinaux influencent le métabolisme énergétique en stimulant notre capacité à métaboliser les nutriments et à extraire les calories de l’alimentation mais également en régulant l’absorption des sucres et des lipides ainsi que leur dépôt dans les tissus périphériques [8]. Les micro-organismes intestinaux et leurs produits métaboliques sont également impliqués dans la régulation du système entéro-endocrinien via, par exemple, la production d’acides gras à chaîne courte induisant la synthèse d’hormones intestinales (entre autres GLP-1, PYY) qui agissent par des voies endocriniennes et neuronales et qui régulent l’appétit, la prise alimentaire et le métabolisme du glucose [9]. Le microbiote intestinal est aussi un régulateur majeur de la barrière intestinale et du système immunitaire, dont les altérations sont impliquées dans l’inflammation de bas grade et l’insulino-résistance associées à l’obésité (Figure 1) [2, 3].

Il est probable qu'un modèle unique de dysbiose intestinale pour l'obésité ne puisse pas être identifié, celui-ci pouvant dépendre des complications métaboliques sous-jacentes et d'autres caractéristiques biologiques et environnementales du sujet.

Altérations de la fonction barrière de la muqueuse dans l'obésité

Une alimentation déséquilibrée provoque des altérations de la muqueuse intestinale qui affectent sa pénétrabilité et favorisent la translocation de composants bactériens comme le lipopolysaccharide (LPS) et le peptidoglycane, voire de micro-organismes entiers, qui peuvent activer l’immunité innée dans des organes métaboliquement actifs. Ces défauts dans la fonction barrière ont été attribués à une inflammation locale causée par une alimentation riche en graisses saturées et la dysbiose résultante, ainsi qu’à des perturbations au niveau de la couche de mucus [10] et de la production de peptides antimicrobiens par les cellules de Paneth (Reg3γ, lysozyme 1) [11]. On a par exemple démontré que des taux plasmatiques accrus de LPS (« endotoxémie métabolique ») provoquaient une obésité et des troubles métaboliques dans des modèles animaux et qu’ils étaient associés à une élévation de l’indice de masse corporelle, à une alimentation riche en graisses, à une inflammation postprandiale et à un risque de DT2 chez l’homme. Ce phénomène pourrait être favorisé par la prolifération de bactéries à Gram négatif comme les entérobactéries, qui sont une source de LPS en cas d’alimentation riche en graisses. Les LPS pourraient activer l’immunité innée dans l’intestin et au-delà induire le recrutement de cellules immunitaires inflammatoires dans les tissus métaboliques, comme les macrophages. Une alimentation riche en graisses saturées pourrait également favoriser la croissance d’autres bactéries à Gram négatif comme Bilophila wadsworthia, qui génèrent le sulfure d’hydrogène, un métabolite toxique pour les entérocytes qui conduit à une hyperperméabilité intestinale, à une inflammation et à des troubles métaboliques [12]. Enfin, une alimentation riche en graisses pourrait également augmenter les taux circulants de peptidoglycanes, probablement par le biais des modifications induites par l’alimentation au niveau de l’expression du peptide antimicrobien lysozyme 1, qui hydrolyse les composants des parois cellulaires bactériennes. En fonction du type de peptidoglycanes, ceux-ci pourraient agir comme des ligands de Nod1 au niveau des macrophages pro-inflammatoires du tissu adipeux ou du foie et provoquer une résistance à l’insuline, alors que des effets opposés semblent se produire dans les cellules bêta-pancréatiques, possiblement selon un mécanisme de compensation [13].


Dérèglement des cellules immunocompétentes intestinales dans l'obésité

Comme dans d’autres organes métaboliques, notamment le tissu adipeux et le foie, une dégradation de l’homéostasie immunitaire a été observée au niveau intestinal dans l’obésité. Lorsque l’obésité est induite par l’alimentation, divers sousgroupes de cellules de l’immunité innée et adaptative au sein de l’intestin adoptent un phénotype pro-inflammatoire, principalement démontré par une augmentation des macrophages et cytokines pro-inflammatoires (IFNγ).

En parallèle, on observe une réduction des proportions de lymphocytes Treg et d’ILC de type 3 productrices d’IL-22, qui aident à maintenir l’intégrité de la muqueuse et l’homéostasie intestinale chez les sujets minces [2, 3]. Certaines de ces altérations sont inversées par une déplétion du microbiote (par exemple par une antibiothérapie) ou par l’administration de bifidobactéries spécifiques qui restaurent également la dysbiose intestinale induite par l’alimentation dans l’obésité, ce qui confirme le rôle causal du microbiote intestinal dans l’inflammation métabolique [3]. De plus, les cellules immunitaires intestinales IgA+ agissent comme des médiateurs de la muqueuse pour la régulation glycémique systémique dans l’obésité induite par l’alimentation riche en graisses.

Ce type de régime réduit le nombre de cellules immunitaires IgA+ et d’IgA sécrétoires. La réduction des IgA pourrait venir renforcer les effets de l’alimentation riche en graisses et ajouter un niveau supplémentaire de déstabilisation de la communauté bactérienne par l’augmentation de la perméabilité intestinale et l’inflammation du tissu adipeux [14].


Comment la modulation du microbiote pourrait-elle impacter l'évolution de la maladie ?

FMT

Un essai clinique a montré que la sensibilité à l’insuline pouvait être améliorée chez des patients atteints de SMet 6 semaines après une transplantation de microbiote fécal provenant d’un donneur sain mince [5]. Une augmentation de la diversité microbienne et de l’abondance des bactéries productrices de butyrate a également été observée. Un autre essai conduit chez des sujets présentant des signes de SMet et recevant le microbiote de patients répondant à la chirurgie bariatrique a rapporté des modifications au niveau de l’expression des récepteurs dopaminergiques qui pourraient expliquer un meilleur contrôle de la prise alimentaire, mais cette étude n’a pas confirmé les effets sur la résistance à l’insuline*. De nombreux autres essais visant à évaluer les effets de la TMF sur l’obésité sont en cours, mais les résultats n’ont pas encore été publiés [5]. Les preuves scientifiques justifiant le recours à cette stratégie de lutte contre les complications de l’obésité sont donc toujours très limitées.

Une dysbiose intestinale entretenue par une alimentation déséquilibrée contribue au dérèglement du système immunitaire intestinal, qui constitue un facteur supplémentaire de l'inflammation métabolique associée à l'obésité et représente également une cible thérapeutique.

Fibres alimentaires

De nombreuses données chez l’homme montrent que la consommation d’aliments avec une teneur en fibres supérieure aux recommandations en vigueur (25 g/jour pour les adultes) améliore le maintien du poids et réduit le risque de coronaropathie et de DT2. Certains des effets de ces fibres sont dus à leurs propriétés physico-chimiques (par exemple non digestibilité, viscosité, etc.) qui contribuent à réduire les réponses glycémiques et l’apport énergétique et à améliorer le profil lipidique sanguin. D’autres effets pourraient être médiés par leur impact sur le microbiote intestinal, qui fermente les fibres et génère des métabolites tels que les AGCC (butyrate, propionate, etc.), actifs dans le métabolisme de l’hôte. Les AGCC induisent la production de peptides entéro-endocrines (GLP-1, GLP-2, PYY) qui renforcent la barrière intestinale, induisent la satiété, améliorent le métabolisme du glucose et exercent des effets anti-inflammatoires dans l’obésité. La consommation de fibres augmente également la diversité du microbiote intestinal, qui est associée à un phénotype métabolique sain. En outre, les effets bénéfiques des fibres ne dépendent pas seulement du type et de la quantité de fibres, mais également de la structure du microbiote de la personne, de sa diversité et de la présence ou de l’absence d’espèces bactériennes spécifiques impliquées dans leur utilisation [15]. Tout cela montre la nécessité de tendre vers des recommandations diététiques plus personnalisées [15].

Bactéries bénéfiques

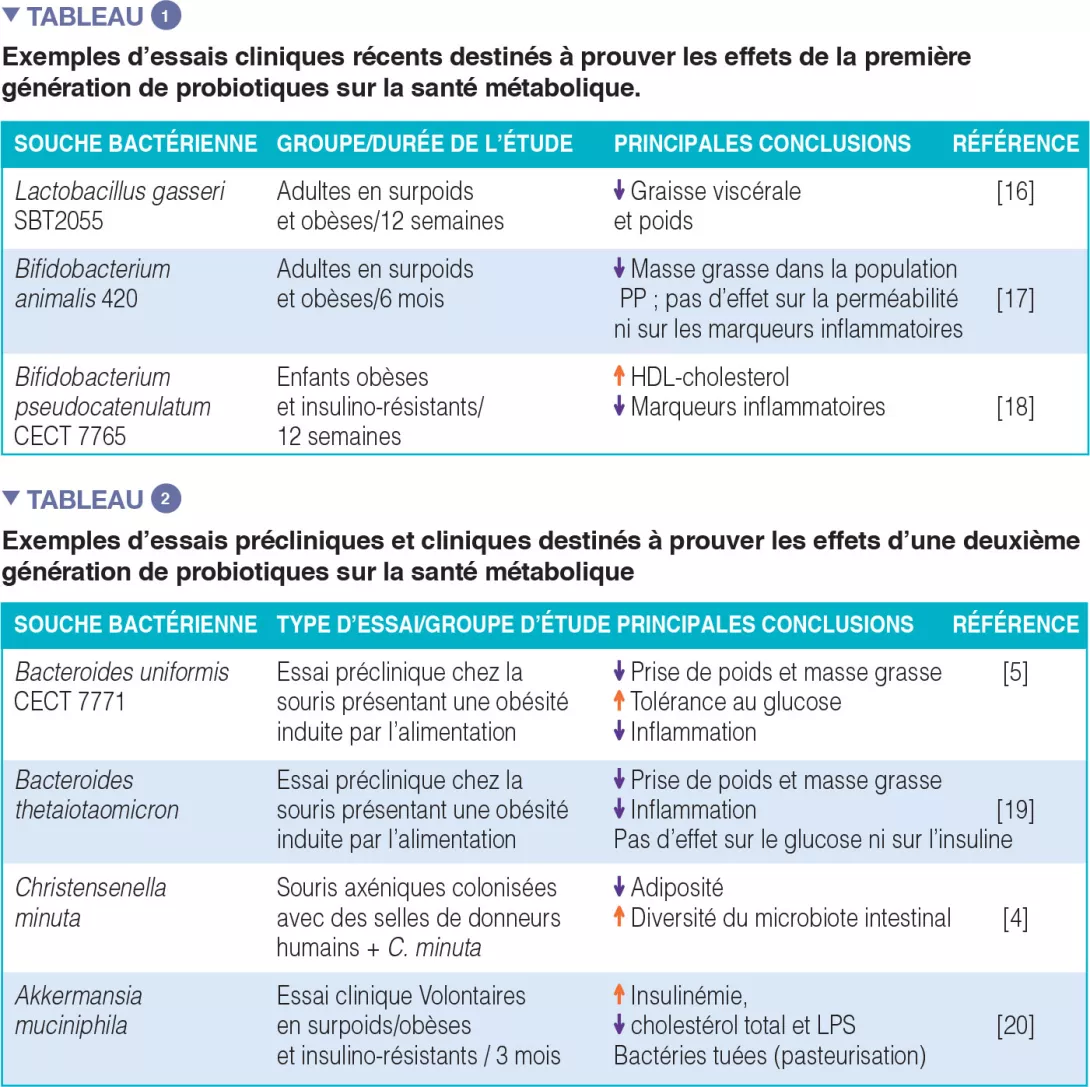
Les première et deuxième générations de probiotiques. La plupart des essais cliniques d’efficacité ont été conduits avec des souches bactériennes traditionnellement utilisées comme probiotiques chez l’homme, « la première génération de probiotiques », qui comprend essentiellement des Lactobacillus et des Bifidobacterium. Le Tableau 1 en donne quelques exemples, mais on peut en trouver bien d’autres dans la littérature, associés à des résultats positifs et négatifs. On a également tenté d’isoler, dans le microbiote indigène humain, de nouvelles espèces bactériennes systématiquement associées à un phénotype métabolique sain dans le but de créer une deuxième génération de probiotiques. Ceux-ci pourraient nous aider à apporter à notre microbiote intestinal les micro-organismes manquants. Le Tableau 2 reprend quelques-unes des études conduites chez des modèles animaux et la seule conduite chez l’homme à ce jour.

Image

Conclusion

Des données scientifiques confirment le rôle des altérations du microbiote intestinal, en partie dues à une alimentation déséquilibrée, dans l’obésité et les troubles métaboliques. L’inflammation intestinale apparaît comme un facteur de l’inflammation systémique dans l’obésité. Ce processus est modulé par le microbiote intestinal et l’alimentation, qui constituent ensemble à la fois une cause et une cible thérapeutique. Des essais expérimentaux ont fourni la preuve du concept selon lequel un « microbiote sain », des bactéries intestinales spécifiques ou des fibres alimentaires qui potentialisent leurs fonctions pourraient jouer un rôle dans la prise en charge de l’obésité. Pour pouvoir espérer développer des solutions concrètes dans la lutte contre l’obésité, il reste encore à identifier les bactéries intestinales impliquées et personnaliser les régimes alimentaires afin d’optimiser les fonctions du microbiote intestinal au bénéfice de notre santé métabolique.

References

1 Johnson AM, Olefsky JM. The origins and drivers of insulin resistance. Cell 2013 ; 152 : 673-84.

2 Winer DA, Luck H, Tsai S, et al. The intestinal immune system in obesity and insulin resistance. Cell Metab 2016 ; 23 : 413-26.

3 Sanz Y, Moya-Pérez A. Microbiota, inflammation and obesity. Adv Exp Med Biol 2014 ; 817 : 291-317.

4 Goodrich JK, Waters JL, Poole AC, et al. Human genetics shape the gut microbiome. Cell 2014 ; 159 : 789-99.

5 Romaní-Pérez M, Agusti A, Sanz Y. Innovation in microbiome-based strategies for promoting metabolic health. Curr Opin Clin Nutr Metab Care 2017 ; 20 : 484-491.

6 Sze MA, Schloss PD. Looking for a Signal in the Noise: Revisiting Obesity and the Microbiome. MBio 2016 ; 7: e01018-16.

7 Rampelli S, Guenther K, Turroni S, et al. Pre-obese children’s dysbiotic gut microbiome and unhealthy diets may predict the development of obesity. Commun Biol 2018 ; 1 : 222.

8 Sonnenburg JL, Bäckhed F. Diet-microbiota interactions as moderators of human metabolism. Nature 2016 ; 535 : 56-64.1.

9 Mulders RJ, de Git KCG, Schéle E, et al.. Microbiota in obesity: interactions with enteroendocrine, immune and central nervous systems. Obes Rev 2018 ; 19 : 435-51.

10 Schroeder BO, Birchenough GMH, Ståhlman M, et al. Bifidobacteria or fiber protects against diet-induced microbiota-mediated colonic mucus deterioration. Cell Host Microbe 2018 ; 23 : 27-40.e7.

11 Everard A, Geurts L, Caesar R, et al. Intestinal epithelial MyD88 is a sensor switching host metabolism towards obesity according to nutritional status. Nat Commun 2014 ; 5 : 5648.

12 David LA, Maurice CF, Carmody RN, et al. Diet rapidly and reproducibly alters the human gut microbiome. Nature 2014 ; 505 : 559-63.

13 Stojanović O, Trajkovski M. Microbiota guides insulin trafficking in beta cells. Cell Res 2019 ; 29 : 603-4.

14 Luck H, Khan S, Kim JH, et al. Gut-associated IgA(+) immune cells regulate obesity-related insulin resistance. Nat Commun 2019 ; 10 : 3650.

15 Sanz Y, Romaní-Perez M, Benítez-Páez A, et al. Towards microbiome-informed dietary recommendations for promoting metabolic and mental health: Opinion papers of the MyNewGut project. Clin Nutr 2018 ; 37(6 Pt A) : 2191-7.

16 Kadooka Y, Sato M, Imaizumi K, et al. Regulation of abdominal adiposity by probiotics (Lactobacillus gasseri SBT2055) in adults with obese tendencies in a randomized controlled trial. Eur J Clin Nutr 2010 ; 64 : 636-43.

17 Stenman LK, Lehtinen MJ, Meland N, et al. Probiotic with or without fiber controls body fat mass, associated with serum zonulin, in overweight and obese adults-randomized controlled Trial. EBioMedicine 2016 ; 13 : 190-200.

18 Sanchis- Chordà J, Del Pulgar EMG, Carrasco-Luna J, et al. Bifidobacterium pseudocatenulatum CECT 7765 supplementation improves inflammatory status in insulin-resistant obese children. Eur J Nutr. 2019 Oct;58(7):2789-2800. 

19 Liu R, Hong J, Xu X, et al. Gut microbiome and serum metabolome alterations in obesity and after weight-loss intervention. Nat Med 2017 ; 23 : 859-68.

20 Depommier C, Everard A, Druart C, et al. Supplementation with Akkermansia muciniphila in overweight and obese human volunteers: a proof-of-concept exploratory study. Nat Med 2019 ; 25 : 1096-103.

Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
Article

Modulation du microbiote intestinal dans les troubles du métabolisme et l’hépatite alcoolique

Revue de presse

Par le Pr. Markku Voutilainen
Faculté de médecine de l’Université de Turku ; gastro-entérologie, Hôpital universitaire de Turku, Finlande

Alcoholic hepatitis. Light micrograph of a section through a liver affected by hepatitis (inflammation of the liver) caused by excessive alcohol intake.

Liu Y, Wang Y, Ni Y, et al. Gut microbiome fermentation determines the efficacy of exercise for diabetes prevention. Cell Metabolism. 2020 Jan 7;31(1):77-91.e5. 

L’impact de l’exercice physique sur le microbiote intestinal a été évalué chez des hommes prédiabétiques. Les répondeurs à l’exercice physique ont vu leur taux d’insuline à jeun et leur résistance à l’insuline (HOMA-IR) diminuer, alors que chez les non-répondants, ce taux est resté inchangé ou s’est même détérioré. L’exercice physique a entraîné une augmentation de l’abondance de Firmicutes, Bacteroides et Proteobacteria. Les altérations du microbiote intestinal étaient corrélées à la réduction de l’indice HOMA-IR. La synthèse de l’ADN, le métabolisme des acides aminés (AA) et la synthèse des acides gras à chaîne courte (AGCC) ont été améliorés chez les répondeurs. Chez les non-répondeurs, la fermentation des AA a abouti à la production de gaz coliques et de composés nocifs, associés à une augmentation de la résistance à l’insuline. Une augmentation des taux sériques d’acides gras à chaîne courte, mais une diminution des acides aminés à chaîne ramifiée (AACR) et des acides aminés aromatiques n’étaient présentes que chez les répondeurs. Les AGCC jouent un rôle bénéfique dans le métabolisme énergétique et celui du glucose, alors qu’une quantité accrue d’AACR est associée à une résistance à l’insuline.

En conclusion, le microbiote intestinal des répondeurs à l’exercice physique est associé à une plus grande capacité de production d’acides gras à chaîne courte, mais également à une dégradation accrue des AACR, alors que le microbiote des non-répondeurs produit des composés nocifs du point de vue métabolique.

Duan Y, Llorente C, Lang S, et al. Bacteriophage targeting of gut bacterium attenuates alcoholic liver disease. Nature. 2019 Nov;575(7783):505-511.

Les patients atteints d’hépatite alcoolique (HA) présentent une concentration fécale plus importante d’Enterococcus faecalis (EF), 80 % des patients étant positifs. Des souris axéniques soumises à un régime à base d’éthanol ont été colonisées avec des selles de patients atteints d’HA contenant des bactéries EF produisant de la cytolysine (CL +). Les souris infectées avec des selles CL + ont développé des lésions hépatiques induites par l’éthanol plus sévères. Celles présentant une prolifération d’entérocoques intestinaux et soumises à un régime à base d’éthanol ont reçu des bactériophages détruisant les EF CL +. Leur atteinte hépatique était moins sévère. La phagothérapie pourrait donc atténuer l’atteinte hépatique liée à l’éthanol provoquée par les EF CL + et améliorer le pronostic de l’HA sévère.

Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
Revue de presse

Microbiote cutané : quel rôle dans l’eczéma atopique et l’acné ?

Revue de presse

Par le Pr. Markku Voutilainen
Faculté de médecine de l’Université de Turku ; gastro-entérologie, Hôpital universitaire de Turku, Finlande

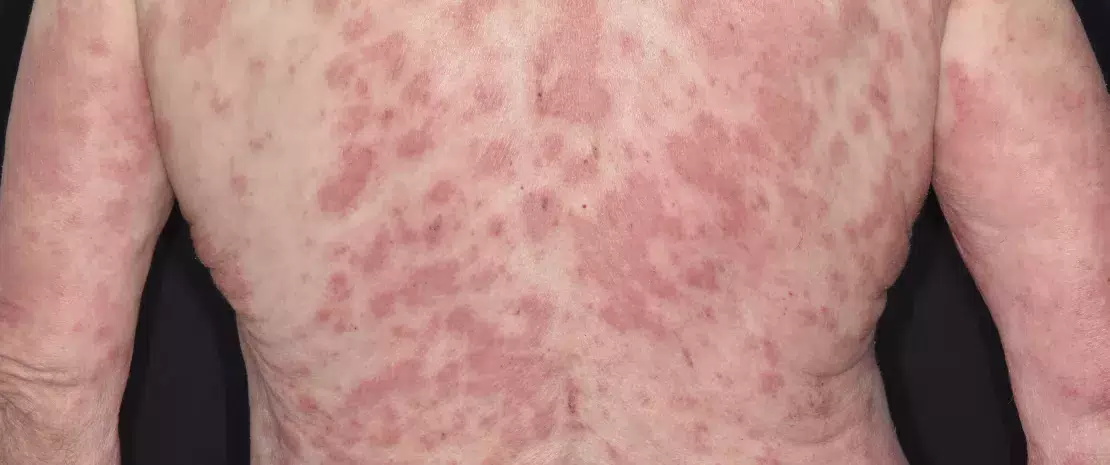
Atopic dermatitis on the upper body of an 83 year old male patient. Atopic dermatitis, also called atopic eczema, is an inflammatory skin reaction that occurs without any obvious external cause.

Fyhrqvist N, Muihead G, Prat-Nielsen S, et al. Microbe-host interplay in atopic dermatitis and psoriasis. Nat Commun. 2019 Oct 16;10(1):4703. 

Les auteurs ont comparé le microbiote de patients souffrant d’eczéma atopique (EA) ou de psoriasis à celui de volontaires sains. Ils ont détecté respectivement 26 et 24 micro-organismes typiques de l’EA et du psoriasis. Les taxa les plus discriminants pour l’EA appartenaient au genre Staphylococcus, et les micro-organismes les plus discriminants pour le psoriasis étaient Corynebacterium simulans, Neisseriaceae spp., C. kroppenstedtii, Lactobacillus spp. et L. iners.

L’EA se caractérise par une abondance de S. aureus. Dans le psoriasis, de nombreuses bactéries différentes peuvent être impliquées, notamment Corynebacterium. La disparition de Lactobacillus est typique des deux maladies. Dans l’EA, on retrouve typiquement une perte de bactéries anaérobies strictes avec une diminution de la production d’acide lactique et d’acides gras à chaîne courte, ce qui entraîne une augmentation du pH de la peau. Les interactions microbiote-hôte sont importantes tant pour l’homéostasie de la peau que pour la pathogenèse de la maladie.

Claudel JP, Affret N, Leccia MT, et al. Staphylococcus epidermidis: a potential new player in the physiopathology of acne? Dermatology; 2019;235(4):287-294. 

Les interactions entre la peau et le microbiote cutané sont essentielles pour différencier les bactéries commensales des micro-organismes pathogènes. Pendant la puberté, une surcolonisation des unités pilo-sébacées (UPS) de la peau par Cutibacterium acnes (CUA) peut causer de l’acné. Certaines souches de S. epidermidis modulent les réactions immunitaires innées de l’hôte, et certains isolats exercent une activité antimicrobienne contre CUA. Réciproquement, certaines souches de CUA exercent une activité antimicrobienne contre S. epidermidis, qui peut également contrôler la prolifération de CUA par l’intermédiaire de l’acide succinique. L’utilisation d’antibiotiques topiques peut être à l’origine du développement de souches antibiorésistantes de CUA et de S. epidermidis. N’éliminer que CUA peut conduire à la prolifération de S. aureus et S. epidermidis, ce qui peut augmenter le risque d’infections. Lactobacillus pourrait être efficace dans l’acné et d’autres maladies dermatologiques inflammatoires. Les auteurs suggèrent qu’une supplémentation orale ou topique régulière du microbiote cutané pourrait constituer une option thérapeutique dans l’acné.

Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
Revue de presse

Implication du microbiote vaginal dans la vaginose bactérienne et la candidose vaginale

Revue de presse

Par le Pr. Markku Voutilainen
Faculté de médecine de l’Université de Turku ; gastro-entérologie, Hôpital universitaire de Turku, Finlande

Gardnerella vaginalis bacteria. Coloured transmission electron micrograph (TEM) of Gardnerella vaginalis bacteria.

Rosca AS, Castro J, Sousa LGV, et al. Gardnerella and vaginal health: the truth is out there. FEMS Microbiol Rev. 2020 Jan 1;44(1):73-105. 

Le microbiote vaginal se divise en cinq grands sous-types (community state types 5 [CST], types d’états communautaires), dont quatre sont composés d’espèces de Lactobacillus. Le système immunitaire inné, les cellules épithéliales, les récepteurs de type Toll et les peptides antimicrobiens naturels sont d’autres composants du système de défense contre les agents pathogènes. Le genre Lactobacillus joue un rôle central dans les mécanismes de défense vaginaux par la production d’acide lactique et de bactériocines ainsi que dans la prévention de l’adhésion des bactéries pathogènes. La vaginose bactérienne (VB) se caractérise par une prolifération de micro-organismes pathogènes et la constitution d’un biofilm polymicrobien qui adhère à l’épithélium vaginal. Les bactéries Gardnerella constituent l’espèce prédominante de ce biofilm et sont les plus virulentes. Le traitement de la VB inclut métronidazole, clindamycine ou tinidazole. De nombreux isolats de Gardnerella et d’autres agents pathogènes sont résistants au métronidazole.

Un traitement adjuvant, notamment par probiotiques du genre Lactobacillus, pourrait renforcer l’effet thérapeutique du métronidazole. Des études visant à comprendre les interactions polymicrobiennes entre les agents pathogènes vaginaux pourraient permettre de développer des traitements basés sur l’écologie vaginale.

Tortelli BA, Lewis WG, Allsworth JE, et al. Associations between the vaginal microbiome and Candida colonization in women of reproductive age. Am J Obstet Gynecol; 2020 May;222(5):471.e1-471.e9. 

Candida albicans (CA) est présent dans le microbiote vaginal d’environ 30 % des femmes. Sur 255 femmes en âge de procréer non enceintes, 42 (16 %) étaient colonisées par CA. Les microbiotes vaginaux les plus courants ont été classés ainsi : prédominance de Lactobacillus crispatus (20 %), prédominance de L. iners (39 %) et divers (38 %). CA a été plus fréquemment retrouvé chez les femmes noires et dans les communautés dominées par L. iners que chez les femmes blanches et dans les communautés avec une prédominance de L. crispatus. In vitro, L. crispatus a produit davantage d’acide lactique et a inhibé plus significativement la croissance pH-dépendante de CA. La principale conclusion de ce travail est que les espèces du genre Lactobacillus ont des interactions différentes avec CA, et que L. crispatus pourrait prévenir la colonisation de CA plus efficacement que L. iners grâce à une production d’acide lactique plus importante.

Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
Revue de presse