Microbiome intestinal et neurodégénérescence

Synthèse

Par le Pr. John F. Cryan
Département d’anatomie et de Neurosciences, University College Cork, Cork, Irlande
Photo : The gut microbiome and neurodegeneration

Au cours des dix dernières années, la recherche portant sur le rôle du microbiote intestinal dans la modulation de l’état de santé et des maladies du cerveau a connu un grand engouement. Bien que la plupart des travaux aient porté sur les troubles liés au stress tels que l’anxiété, la dépression et le syndrome de l’intestin irritable, de plus en plus d’études, en grande partie précliniques, impliquent également le microbiote en tant que modérateur dans les maladies neurodégénératives telles que la maladie d’Alzheimer et la maladie de Parkinson. En parallèle, les recherches ont montré que le microbiome joue un rôle essentiel dans les principaux processus cérébraux impliqués dans le développement neurologique, la neuro-inflammation et le vieillissement. Actuellement, elles sont fortement orientées vers une meilleure compréhension des mécanismes précis qui permettent à l’intestin de communiquer avec le cerveau et d’entraîner une augmentation de la susceptibilité aux troubles neurologiques.

En médecine, la neurologie et la microbiologie ont largement évolué en suivant des trajectoires parallèles distinctes, ne se croisant que dans des situations pathologiques, lors d’infections directes du système nerveux central. Cependant, au cours de la dernière décennie, la découverte du fait que le microbiote intestinal (les trillions de bactéries présentes dans l’intestin) joue un rôle clé dans le maintien de l’homéostasie et dans la programmation des principaux systèmes corporels, y compris le cerveau, a constitué une révolution en biomédecine.

De plus en plus de recherches se concentrent sur la compréhension des voies de communication bidirectionnelle entre les bactéries intestinales et le système nerveux central, l’axe microbiote-intestin-cerveau ; cependant, ce domaine n’en est qu’à ses balbutiements [1]. Des modifications du microbiome, de ses métabolites et de son interaction avec l’axe intestin-cerveau sont associées à un large éventail de maladies, y compris à des troubles neurologiques. L’étude du microbiome nécessite des efforts de collaboration étroite entre cliniciens, chercheurs fondamentaux et bio-informaticiens et fonctionne mieux lorsque les barrières des disciplines traditionnelles entre la neurologie, la gastro-entérologie et la microbiologie sont levées.

Dans la recherche préclinique, un certain nombre de modèles expérimentaux se sont révélés essentiels pour évaluer l’effet du microbiome sur le cerveau et le comportement, et ces modèles incluaient l’usage de prébiotiques et probiotiques, l’administration d’antibiotiques, la transplantation fécale et l’utilisation d’animaux dépourvus de germes et gnotobiotiques [1]. Dans la recherche clinique, la plupart des données, en particulier dans le domaine de la neurologie, reposent sur des études transversales du microbiome chez des patients par rapport à des individus sains du même âge.

L’axe microbiote intestin- cerveau : mécanismes de communication

D’importants efforts expérimentaux sont déployés pour essayer de comprendre finement les voies de communication entre l’intestin et le cerveau. Les bactéries intestinales influencent les processus centraux via divers mécanismes (Figure 1). Premièrement, la capacité du microbiote à synthétiser des neurotransmetteurs (i.e.l’acide γ-aminobutyrique [GABA], la noradrénaline et la dopamine) est une voie de communication importante. Deuxièmement, les microbes ont une importance capitale dans l’activation du système immunitaire qui peut jouer un rôle fondamental dans le vieillissement, les troubles neurologiques et la neurodégénérescence. Enfin, les microbes produisent des métabolites, notamment des acides gras à chaîne courte (AGCC), qui sont essentiels à l’intestin, au système immunitaire et, potentiellement, à l’état de santé du cerveau. De plus, le microbiote intestinal et le cerveau sont liés par le nerf vague et par la modulation des principaux acides aminés alimentaires tels que le tryptophane.

Étant donné l’étroite association entre le microbiote intestinal et le cerveau, il n’est pas étonnant que les bactéries intestinales aient un rôle essentiel dans les maladies neurologiques et psychiatriques. Les données les plus probantes confirmant un rôle du microbiome dans la fonction cérébrale proviennent de souris dépourvues de germes. Les études menées par un certain nombre de groupes de recherche au Canada, en Suède et en Irlande ont montré que, chez les animaux dépourvus de germes, le cerveau ne se développe pas normalement en l’absence de microbiome intestinal [2]. En outre, il a également été montré que des processus cérébraux fondamentaux tels que la myélinisation, la neurogenèse chez l’adulte et l’activation de la microglie dépendent fortement de la composition du microbiote.

Image

Microbiote et vieillissement

La relation entre le microbiome et le vieillissement du cerveau suscite également beaucoup d’attention, ce qui présente un intérêt particulier dans le domaine de la neurologie car de nombreux troubles neurologiques et neurodégénératifs surviennent à un âge avancé. Une fois de plus, l’idée de relier le microbiome au vieillissement sain n’est pas nouvelle ; elle a été soutenue il y a plus de 100 ans par un immunologiste ayant reçu un prix Nobel, Elie Metchnikoff. Celui-ci a observé que les villageois vivant dans une région de la Bulgarie avaient une vie exceptionnellement longue, un fait qu’il a attribué à la présence de bactéries produisant de l’acide lactique dans leur alimentation. Nous avons récemment revisité l’étude initiale menée par Metchnikoff [3] et montré que les déficits comportementaux chez les animaux âgés coïncident avec des modifications du microbiome. De plus, l’étude ELDERMET a montré que la composition des bactéries intestinales chez les personnes âgées était corrélée avec leur état de santé général, leur fragilité et avec leur système immunitaire [4]. Un microbiome riche est le signe d’une meilleure santé. Ces investigateurs sont allés encore plus loin pour étudier ce qui induit un tel microbiome et ils ont montré qu’il s’agissait d’une alimentation variée. Lorsque les gens mangent des aliments fades transformés (souvent dans des maisons de retraite), la diversité de leurs microbiomes est réduite, tandis que ceux ayant une alimentation riche en fruits et en légumes ont de meilleurs résultats [4].

Une diminution de la diversité microbienne est associée à une augmentation concomitante de l’activation microgliale qui est corrélée avec des différences de masse cérébrale chez la souris. Cela contribue à une réponse inflammatoire associée à l’âge appelée “inflammaging”, qui à son tour a été associée à des maladies neurodégénératives telles que la maladie d’Alzheimer (MA) et la maladie de Parkinson (MP). Par ailleurs, il a été montré que le microbiome régule l’activation de la microglie ; mais également que des cerveaux de souris dépourvues de germes exprimaient une microglie défectueuse, partiellement rétablie après restauration de la communauté microbienne à des taux contrôles [5].

Maladie de parkinson (MP)

On est en train de se rendre compte que la MP pourrait en fait provenir de l’intestin [6]. En effet, l’α-synucléine, l’agrégat de protéines caractéristique de la MP dans le cerveau, a également été identifiée dans les fibres nerveuses de la sous-muqueuse et de la muqueuse et dans les ganglions de patients parkinsoniens. Des données précliniques suggèrent même que l’α-synucléine présente dans l’intestin peut être transportée au cerveau par le nerf vague. En outre, des symptômes intestinaux fonctionnels tels que la constipation sont souvent des symptômes prodromiques se produisant des années avant l’apparition des symptômes moteurs.

Depuis que Scheperjans et al. ont montré pour la première fois qu’il existait des altérations spécifiques de la composition du microbiome dans la MP [7], bien d’autres études ont été menées [8]. Cependant, à ce jour, il n’y a pas de consensus concernant l’existence d’une signature microbienne spécifique. Lorsque des souris ont été colonisées par le microbiote de patients atteints de la MP via une transplantation de microbiote fécal, elles ont développé des déficits moteurs et une neuro-inflammation, deux symptômes caractéristiques de la MP [9]. De plus, les symptômes se sont améliorés lorsque les souris ont été traitées par des antibiotiques. Ces études ont impliqué des acides gras à chaîne courte pour activer les processus neuro-inflammatoires dans la MP [9].

Le nerf vague est particulièrement bien placé pour conduire des signaux provenant de l’intestin vers le cerveau, soit d’origine bactérienne, soit via une translocation, similaire à celle du prion, de l’α-synucléine. En effet, des études épidémiologiques basées sur des registres de patients danois et suédois ont montré qu’une vagotomie tronculaire protège de la MP. Malgré un fort enthousiasme dans ce domaine, la prudence reste de mise lors de l’examen des données disponibles car elles sont en grande partie issues de petites cohortes et elles n’ont pas de perspective longitudinale. De nombreuses autres études mécanistiques sont nécessaires pour comprendre comment les modifications du microbiote peuvent modérer les symptômes moteurs et non moteurs de la MP et de ses comorbidités [10].

Maladie d’alzheimer (MA)

Le concept selon lequel les microbes peuvent jouer un rôle dans la physiopathologie de la MA n’est pas nouveau et l’idée que l’amyloïde, dont l’agrégation est une des principales caractéristiques de la MA, pourrait agir comme peptide antimicrobien dans le cerveau est un concept fascinant [11]. Cependant, selon le postulat de Koch, il est éthiquement difficile de prouver s’il existe une cause infectieuse de neuro-inflammation et de neurodégénérescence. Comme dans la MP, la relation entre les protéines intestinales et l’état de santé du cerveau fait l’objet d’une attention particulière. Il a été découvert que des protéines de type amyloïde produites par des bactéries pourraient augmenter les maladies associées à l’α-synucléine [12]. D’autres travaux sont nécessaires pour valider ces stratégies chez l’homme.

Récemment, des études transversales ont identifié que les taxons bactériens d’Escherichia/Shigella, qui sont associés à la médiation de l’inflammation, étaient augmentés dans les échantillons de selles de patients atteints de la MA par rapport aux sujets contrôles. En outre, les modifications du microbiote étaient corrélées avec les taux de cytokines pro-inflammatoires dans le sang [13]. Ces résultats suggèrent une relation causale entre la dysbiose du microbiote intestinal et l’inflammation systémique, qui peut initier ou exacerber la neurodégénérescence cérébrale dans la MA. Cependant, ces études sont encore relativement modestes et beaucoup d’autres recherches sont nécessaires sur de grandes cohortes pour évaluer la relation causale entre le microbiome intestinal et la MA.

En parallèle, il a été montré qu’un certain nombre de modèles de MA chez des souris transgéniques présentaient un microbiome altéré [14]. Des études pionnières menées chez des souris dépourvues de germes ont mis en évidence une absence marquée d’accumulation de plaques amyloïdes et de neuro-inflammation [14]. De même, le traitement chronique des souris transgéniques APP/PS1 par un cocktail d’antibiotiques réduisait l’accumulation de microglie et d’astrocytes entourant les plaques amyloïdes dans l’hippocampe et entraînait une diminution des plaques amyloïdes insolubles [15]. Toutes ces études montrent clairement que le microbiome régule les composants moléculaires clés de la MA.

Perspectives d’avenir

Il est clair que le microbiome est d’une importance cruciale pour le développement et le maintien appropriés de la fonction cérébrale. Par ailleurs, comme indiqué ci-dessus, de nombreuses données issues d’études précliniques et cliniques impliquent le microbiome dans un spectre de maladies neurologiques et neurodégénératives. Compte tenu des effets marqués du microbiote dans la régulation de la fonction cérébrale, il est plausible que sa composition affecte la progression, la susceptibilité et le traitement de presque tous les troubles neurologiques. Néanmoins, nos connaissances concernant le rôle du microbiome dans d’autres maladies neurodégénératives telles que la sclérose latérale amyotrophique ou la maladie de Huntington présentent des lacunes importantes, et il faut rester prudent afin de ne pas surinterpréter ces études. Le domaine doit s’éloigner des études corrélatives pour adopter des approches causales mécanistiques. De plus, davantage d’études interventionnelles utilisant des souches probiotiques et des prébiotiques sont nécessaires ; les transplantations de microbiote fécal pourraient même être importantes dans ce domaine. Il est possible que des approches similaires puissent cibler des troubles différents ; par exemple, la modulation de la signalisation des lymphocytes T dans le cerveau peut être utile pour atténuer l’état neuro- inflammatoire chez les patients après un accident vasculaire cérébral, de même que chez les patients atteints de la MA et au cours du vieillissement.

En ce qui concerne la neurologie clinique, de nombreux patients sont polymédicamentés et la relation entre le microbiome et l’action des médicaments est de mieux en mieux comprise. Ainsi, toutes les études devraient viser à faire la différence entre l’impact des médicaments et celui de la maladie sur le microbiome. En outre, des études temporelles menées chez des individus présymptomatiques seront importantes pour déterminer le rôle potentiel du microbiome en tant que biomarqueur de la maladie.

Conclusion

L’alimentation est peut-être l’un des plus importants facteurs influençant le microbiome. Comme de nombreux troubles neurologiques affectent l’appétit, la déglutition et l’alimentation en général, il est essentiel d’avoir des données nutritionnelles de bonne qualité pour toutes les études menées chez l’homme à l’avenir. Par ailleurs, cela permettra de mieux comprendre la relation entre l’alimentation, le microbiome et le cerveau, qui est essentielle dès le début de la vie et à mesure que nous vieillissons.

Sources

1 Cryan JF, Dinan TG. Mind-altering microorganisms: the impact of the gut microbiota on brain and behaviour. Nat Rev Neurosci 2012 ; 13 : 701-12.

2 Luczynski P, McVey Neufeld KA, Oriach CS, et al. Growing up in a Bubble: Using Germ-Free Animals to Assess the Influence of the Gut Microbiota on Brain and Behavior. Int J Neuropsychopharmacol 2016 ; 19.

3 Scott KA, Ida M, Peterson VL, et al. Revisiting Metchnikoff: Age-related alterations in microbiota-gut-brain axis in the mouse. Brain Behav Immun 2017 ; 65 : 20-32.

4 Claesson MJ, Jeffery IB, Conde S, et al. Gut microbiota composition correlates with diet and health in the elderly. Nature 2012 ; 488 : 178-84.

5 Erny D, Hrabe de Angelis AL, Jaitin D, et al. Host microbiota constantly control maturation and function of microglia in the CNS. Nature Neurosci 2015 ; 18 : 965-77.

6 Braak H, de Vos RA, Bohl J, et al. Gastric alpha-synuclein immunoreactive inclusions in Meissner’s and Auerbach’s plexuses in cases staged for Parkinson’s disease-related brain pathology. Neurosci Lett 2006 ; 396 : 67-72.

7 Scheperjans F, Aho V, Pereira PA, et al. Gut microbiota are related to Parkinson’s disease and clinical phenotype. Mov Disord 2015 ; 30 : 350-8.

8 Keshavarzian A, Green SJ, Engen PA, et al. Colonic bacterial composition in Parkinson’s disease. Mov Disord 2015 ; 30 : 1351-60.

9 Sampson TR, Debelius JW, Thron T, et al. Gut Microbiota Regulate Motor Deficits and Neuroinflammation in a Model of Parkinson’s Disease. Cell 2016 ; 167 : 1469-80 e12.

10 Lionnet A, Leclair-Visonneau L, Neunlist M, et al. Does Parkinson’s disease start in the gut? Acta Neuropathol 2018 ; 135 : 1-12.

11 Itzhaki RF, Lathe R, Balin BJ, et al. Microbes and Alzheimer’s Disease. J Alzheimers Dis 2016 ; 51 : 979-84.

12 Friedland RP. Mechanisms of molecular mimicry involving the microbiota in neurodegeneration. J Alzheimers Dis 2015 ; 45 : 349-62.

13 Cattaneo A, Cattane N, Galluzzi S, et al. Association of brain amyloidosis with pro-inflammatory gut bacterial taxa and peripheral inflammation markers in cognitively impaired elderly. Neurobiol Aging 2017 ; 49 : 60-8.

14 Harach T, Marungruang N, Duthilleul N, et al. Reduction of Abeta amyloid pathology in APPPS1 transgenic mice in the absence of gut microbiota. Sci Rep 2017 ; 7 : 41802.

15 Minter MR, Zhang C, Leone V, et al. Antibiotic-induced perturbations in gut microbial diversity influences neuro-inflammation and amyloidosis in a murine model of Alzheimer’s disease. Sci Rep 2016 ; 6 : 30028.

Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
Article

Reconstitution du microbiote intestinal par transplantation de microbiote fécal autologue chez des patients traités par antibiotiques

Article commenté - Rubrique adulte

Par le Pr. Harry Sokol
Gastro-entérologie et nutrition, Hôpital Saint-Antoine, Paris, France

Faecal transplant preparation. A technician storing a prepared sample of human faecal matter in cold storage.

Commentaire de l’article original de Taur et al. (Science Translational Medicine 2018 [1])

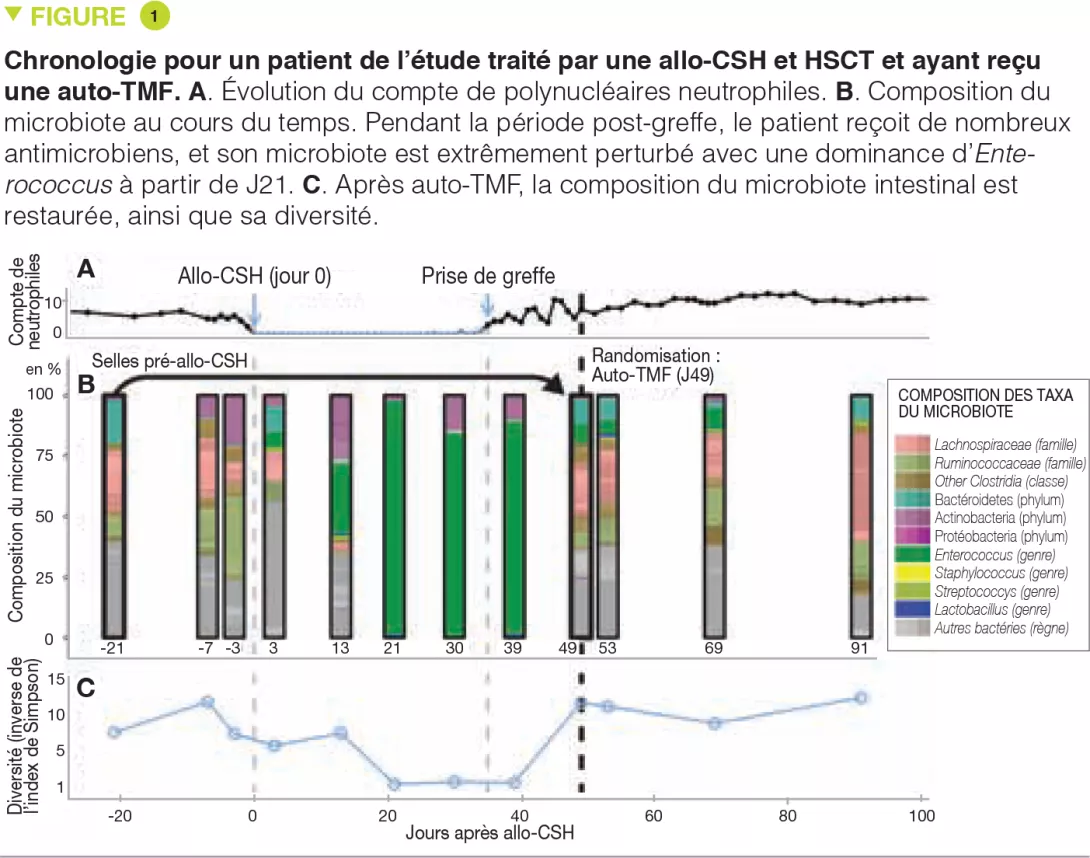
Un traitement antibiotique peut appauvrir en bactéries commensales le microbiote intestinal (MI) du patient et, paradoxalement, augmenter le risque d’infections ultérieures. Dans l’allogreffe de cellules souches hématopoïétiques (allo-CSH), l’administration d’antibiotiques est essentielle pour des résultats cliniques optimaux mais perturbe considérablement la diversité du MI, entraînant la perte de nombreux micro-organismes bénéfiques. Bien que la perte de diversité du microbiote au cours de l’allo-CSH soit associée à une mortalité accrue, les approches visant à rétablir les bactéries commensales décimées n’ont pas encore été développées. Un essai clinique contrôlé et randomisé a été initié, pour comparer la transplantation de microbiote fécal autologue (auto-TMF) à l’absence d’intervention ; les profils de microbiote de 25 patients ayant été traités par allo-CSH (14 qui ont reçu une auto-TMF et 11 patients contrôles qui n’ont pas reçu ce traitement) ont été analysés. Les changements dans la diversité et la composition du MI ont révélé que l’auto- TMF avait stimulé la diversité microbienne et rétabli la composition de microbiote que le patient avait avant le traitement antibiotique et l’allo-CSH. Dans le contexte d’une allo-CSH, ces résultats montrent l’utilité potentielle du stockage d’échantillons de selles en vue d’une auto-TMF visant à rétablir le MI chez des patients ayant subi un traitement antibiotique lourd.

Que sait-on déjà à ce sujet ?

Les traitements antibiotiques endommagent le microbiote intestinal et augmentent le risque d’infections gastro-intestinales. Bien que cet effet soit reconnu depuis plus de 60 ans, la correction des altérations du microbiote intestinal induites par les antibiotiques n’est toujours pas une pratique clinique standard. Chez les patients subissant une greffe allogénique de cellules souches hématopoïétiques (allo- CSH), des antibiotiques sont systématiquement administrés pour traiter ou réduire le risque d’infection grave. Des études prospectives sur des patients recevant une allo-CSH ont démontré que le microbiote intestinal est nettement altéré pendant le traitement, avec de profondes pertes de bactéries anaérobies obligatoires, y compris des espèces immunomodulatrices telles que celles appartenant à la classe des Clostridia et au phylum des Bacteroidetes [2]. Les conséquences cliniques de ces altérations sont également apparentes dans une allo-CSH : les perturbations des anaérobies obligatoires bénéfiques sont corrélées aux complications incluant les infections systémiques à Entérocoque Résistant à la Vancomycine (ERV), les infections à Clostridium difficile, et la maladie du greffon contre l’hôte (GVHD) [2, 3]. Dans l’ensemble, les patients qui perdent la diversité de leur microbiote intestinal au moment de la prise de greffe des cellules souches hématopoïétiques ont des taux plus élevés de décès liés à la greffe [4].

Quels sont les principaux résultats apportés par cette étude? 

Les patients recevant une allo-CSH restent immunodéprimés pendant de nombreux mois après la greffe, et bien que des patients immunodéprimés, y compris ceux traités par allo-CSH, aient été traités sans effets secondaires par TMF hétérologue [5], les auteurs ont considéré qu’une TMF autologue serait plus sûre, car de nature à minimiser, notamment, le risque d’exposition du patient à des micro-organismes potentiellement pathogènes non encore détectés. Les auteurs ont initié un essai clinique contrôlé randomisé pour déterminer la faisabilité de l’auto-TMF pour restaurer le microbiote intestinal et pour diminuer les complications liées à l’allo-CSH. Ici, ils présentent une analyse des modifications de la composition du microbiote intestinal chez 25 patients randomisés dans cette étude et pour lesquels des échantillons de selles ont été collectés longitudinalement.

Les auteurs ont tout d’abord confirmé sur leur cohorte de 753 patients (3 237 échantillons fécaux collectés longitudinalement) que l’allo-CSH et les différents traitements antibiotiques associés induisaient une diminution nette de la diversité du microbiote intestinal avec un nadir 5 jours après l’allo- CSH, une persistance des altérations pendant au moins 6 semaines et une absence de récupération pour la plupart des patients à 100 jours post-allo-CSH.

POINTS CLÉS

  • Le microbiote intestinal est fortement perturbé au cours du traitement par allo-CSH et ces perturbations pourraient jouer un rôle dans les complications associées

  • L’auto-TMF est une stratégie faisable et efficace sur la reconstitution du microbiote après les perturbations induites par l’allo-CSH

  • Les conséquences de la reconstitution du microbiote en termes de pronostic hématologique restent à évaluer

Image

Dans le cadre de l’étude randomisée, les selles des patients, prélevées avant l’allo- CSH étaient congelées à -80°C et conservées. Une à cinq semaines (13 jours en moyenne) après l’allo-CSH, au moment de la prise de greffe (définie par la remontée des polynucléaires neutrophiles au-delà de 500/mm3), les patients étaient réévalués, et un autre échantillon de selles était prélevé. Si une diminution des bactéries appartenant au phylum des Bacteroidetes était mise en évidence, les patients étaient randomisés. Le résultat des analyses de microbiote des 25 premiers patients évaluables (14 du groupe auto-TMF et 11 du groupe contrôle) est présenté. L’auto-TMF était réalisée par un lavement unique, après une préparation colique par polyéthylène glycol, similaire à la préparation réalisée avant une coloscopie. Les auteurs montrent que l’auto-TMF permet de restaurer non seulement la diversité du microbiote intestinal mais aussi sa composition pré-allo-CSH.

Quelles sont les conséquences en pratique ?

Plusieurs études montrent que le microbiote intestinal et ses perturbations pourraient jouer un rôle dans la survenue des complications infectieuses et non infectieuses habituelles au cours de l’allo-CSH. Cette première étude montre que la collection de selles du patient avant une allo-CSH et leur conservation afin de les réadministrer une fois la prise de greffe effectuée est une stratégie faisable et efficace sur la reconstitution du microbiote. Il reste maintenant à savoir si les patients ayant bénéficié d’une telle auto-TMF ont un meilleur pronostic vis-à-vis de ces complications et une meilleure survie globale. Si l’efficacité de cette stratégie se confirme, elle pourrait être également envisagée dans d’autres situations où des perturbations importantes du microbiote sont attendues, comme un traitement antibiotique large et prolongé ou d’autres chimiothérapies anticancéreuses

Conclusion

Bien qu’il faille encore en estimer les bénéfices en termes de pronostic hématologique et de survie globale, l’auto-TMF est une option stratégique prometteuse pour reconstituer le microbiote intestinal après les perturbations induites par le traitement antibiotique associé à l’allo-CSH.

Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
Article commenté

Le microbiote intestinal impliqué dans la pathogenèse de la stéatose hépatique non alcoolique

Revue de presse

Par le Pr. Markku Voutilainen
Faculté de médecine de l’Université de Turku ; gastro-entérologie, Hôpital universitaire de Turku, Finlande

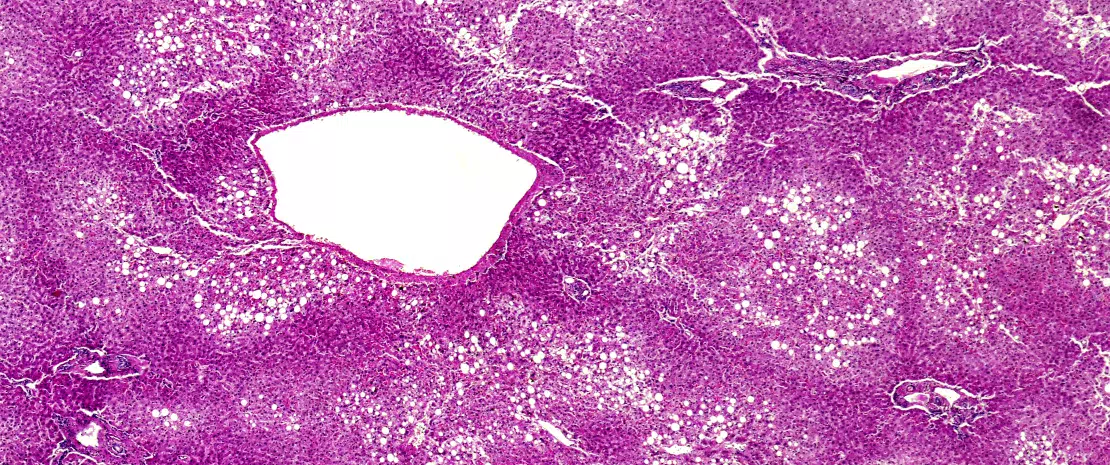
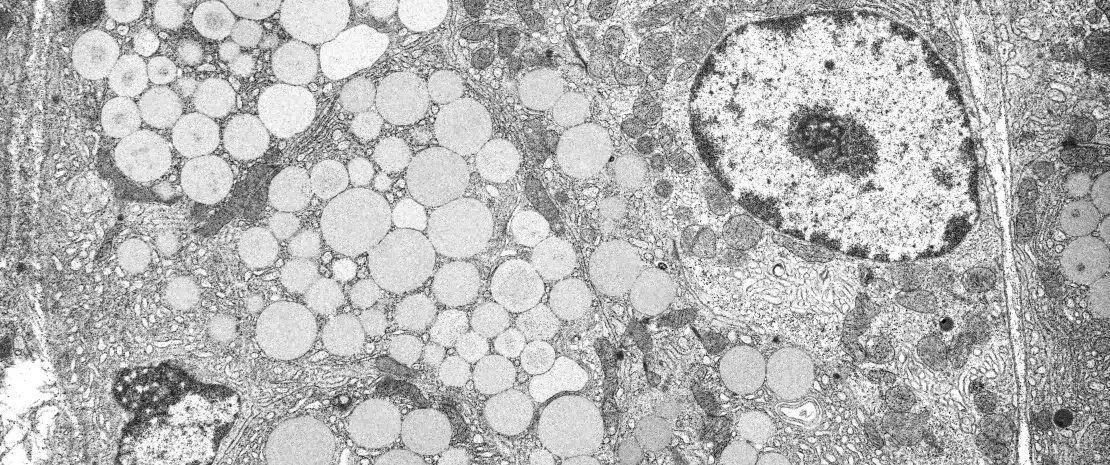
La stéatose hépatique non alcoolique (non-alcoholic fatty liver disease, NAFLD) est la maladie hépatique la plus fréquente dans les pays occidentaux et touche 25 à 30 % de la population générale. La NAFLD est une simple stéatose hépatique sans inflammation ou avec une inflammation minime. Elle peut s’aggraver en stéato-hépa- tite (NASH), laquelle est caractérisée par une stéatose, une inflammation et une fibrose. La NASH peut conduire à une cirrhose, qui est un facteur de risque de carcinome hépatocellulaire (CHC). La NAFLD associe obésité et insulinorésistance, deux symptômes qui caractérisent le syndrome métabolique.

Puri et Sanyal ont examiné le rôle du microbiome intestinal dans la NAFLD [5]. Une masse accrue de tissu adipeux associée à une activation du système immunitaire inné provoque une insulinorésistance. L’altération du microbiote et l’augmentation de la perméabilité intestinale sont à l’origine de l’activation de la réponse immunitaire. Le microbiome peut également affecter les organes extra-intestinaux par translocation, signalisation neuro-humorale au niveau de l’intestin et altération des métabolites et des substances nutritionnelles absorbées dans l’intestin.

Chen et ses collaborateurs ont examiné le rôle du microbiote intestinal dans le métabolisme des acides biliaires [6]. Le microbiote produit des enzymes qui, dans les intestins, transforment les acides biliaires primaires (synthétisés et conjugués dans le foie) en acides biliaires secondaires. Une dysbiose peut entraîner une diminution de la synthèse des acides biliaires secondaires qui réduit à son tour l’activation de récepteurs nucléaires tels que le FXR (farnesoid X receptor), le PXR (pregnane X receptor), le TGR5 (Takeda G-protein-coupled bile acid protein 5) et le récepteur de la vitamine D. Ces récepteurs jouent des rôles importants dans la régulation de l’énergie et leur dys- fonctionnement pourrait jouer un rôle dans la pathogenèse de la NAFLD.

La dysbiose conduit à l’augmentation de l’activité des hydrolases biliaires, entraîne une augmentation de la déconjugaison des acides biliaires primaires et est associée à une perturbation du métabolisme des lipides et du cholestérol, à une prise de poids et à une perturbation de la signalisation [6].

Le microbiote intestinal est modifié dans la NAFLD, mais il n’existe pas de profil uniforme [6]. Des bactéries (C. leptum par exemple) transformant les acides biliaires primaires sont diminuées dans les selles des patients atteints de NAFLD. Une diminution du FXR augmente la synthèse des acides biliaires primaires, la néoglucogenèse, et la synthèse des triglycérides et des lipoprotéines de très basse densité. Par conséquent, la diminution du FXR et celle de la TGR5 pourraient être impliquées dans la pathogenèse de la NAFLD.

La modulation du microbiote intestinal pourrait constituer une option thérapeutique pour la NAFLD. Les probiotiques pourraient ajuster l’ensemble du pool d’acides biliaires plutôt que des récepteurs nucléaires individuels [6].

Une variété de définitions, d’évaluations histologiques, de méthodes et différentes approches bioinformatiques ont été utilisées dans les études sur le microbiome intestinal dans la NAFLD. Il est donc difficile de tirer des conclusions généralisables des modifications du microbiote dans la pathogenèse de la NAFLD [5]. Les mécanismes qui relient les modifications du microbiote à la pathogenèse de la NAFLD sont l’extraction accrue d’énergie dans l’intestin et l’augmentation de l’absorption hépatique des acides gras libres, l’altération de la fonction de la barrière intestinale et l’endotoxémie accompagnée d’une inflammation, l’altération du métabolisme des acides biliaires et de la choline.

Loman et al. ont analysé l’impact du traitement par pré- et probiotiques sur la NAFLD [7]. Ils ont identifié 25 études répondant aux critères PICOS*: 9 ont évalué des traitements prébiotiques, 11 des traitements probiotiques et 7 des traitements symbiotiques. Ces traitements ont significativement réduit l’indice de masse corporelle (IMC), les transaminases hépatiques et la ν-glutamyl-transférase, et les taux de cholestérol et de triglycérides. L’effet des pro- et prébiotiques était similaire sur l’IMC, les enzymes hépatiques et le cholestérol de haute densité. Les principales faiblesses de ces études étaient le manque d’analyse sur le microbiote intestinal, l’hétérogénéité des traitements et leur courte durée. La présente méta-analyse était cependant la première à rapporter des modifications simultanées induites par un traitement modulateur du microbiote sur le poids, le métabolisme des lipides et l’inflammation dans la NAFLD.

Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
Revue de presse

Les inhibiteurs de la pompe à protons modifient le microbiome intestinal

Revue de presse

Par le Pr. Markku Voutilainen
Faculté de médecine de l’Université de Turku ; gastro-entérologie, Hôpital universitaire de Turku, Finlande

Les inhibiteurs de la pompe à protons (IPP), médicaments parmi les plus utilisés malgré une absence d’indication fondée sur les preuves pour près de la moitié des prescriptions, jouent un rôle central dans le traitement de l’ulcère gastroduodénal et du reflux gastro-œsophagien. Ils inhibent la sécrétion acide des cellules pariétales gastriques. Une hypochlorhydrie induite par IPP peut augmenter le risque d’infections.

Mishiro et al. ont étudié l’impact de l’administration quotidienne de 20 mg d’ésoméprazole pendant 1 mois sur le microbiote salivaire, parodontal et fécal chez 10 volontaires sains [1]. Le microbiote du côlon contenait le plus grand nombre d’espèces. Firmicutes, Bacteroidetes, Actinobacteria et Proteobacteria étaient les phyla les plus abondants dans les selles, alors que Firmicutes, Proteobacteria, Bacteroidetes et Fusobacteria étaient les plus abondants dans la salive et le liquide de poche parodontale. L’IPP a entraîné une réduction significative de la diversité du microbiote salivaire. Il y avait davantage de Streptococci, que l’on retrouvait principalement dans la partie supérieure du tractus gastrointestinal, dans les selles ainsi que dans la salive et le liquide de poche parodontale après traitement [1].

Stark et al. ont réalisé une étude rétrospective chez 333 353 enfants américains [2]. Les prescriptions d’IPP étaient associées à l’obésité. Chaque classe d’antibiotiques supplémentaire majorait le risque d’obésité, et chaque prescription supplémentaire de 30 jours d’antiacides renforçait le lien avec l’obésité.

Mailhe et al. ont examiné la composition du microbiote intestinal de 6 patients ayant subi une gastroscopie et une coloscopie [3]. Les échantillons ont été prélevés au niveau de l’estomac, du duodénum, de l’iléon et du côlon. Des analyses par culturomics utilisant la spectrométrie de masse MALDI-TOF (matrix assisted laser desorption ionisation-time of flight) et le séquençage de la région V3-V4 de l’ARNr 16S ont été réalisées. En tout, 368 espèces bactériennes (dont 37 nouvelles) ont été observées : 110 dans l’estomac, 106 dans le duodénum et 235 dans le côlon descendant. La partie supérieure de l’intestin contenait moins d’espèces anaérobies et un microbiote moins riche que la partie inférieure. Trois patients étaient sous traitement de fond par IPP ; leur pH gastrique et leur diversité bactérienne étaient plus élevés que chez les patients n’utilisant pas d’IPP. Des investigateurs de Cleveland ont étudié l’impact des IPP sur le microbiote intestinal [4]. La principale conséquence du traitement par IPP est l’augmentation du pH gastrique. Ce traitement peut conduire à une colonisation gastrique excessive par Streptococcus, pouvant entraîner des symptômes dyspeptiques. Le risque de prolifération bactérienne de l’intestin grêle (PBIG) n’est que modérément majoré pendant ce traitement [4]. Les IPP et les antibiotiques augmentent le risque d’infection à Clostridium difficile. Le traitement par IPP peut également majorer le risque de péritonite bactérienne spontanée dans la cirrhose hépatique. Une association statistique a été rapportée entre l’utilisation d’IPP et l’incidence d’infections à Salmonella et Campylobacter.

Les IPP provoquent une dysbiose. Les études observationnelles montrant des associations entre IPP et effets indésirables ne prouvent pas forcément de lien de causalité. Les utilisateurs d’IPP sont souvent plus malades que les non-utilisateurs, ce qui pourrait en partie expliquer la majoration d’effets indésirables. Quoi qu’il en soit, les IPP ne doivent être utilisés que pour des indications fondées sur des preuves avec les doses minimales efficaces et doivent être arrêtés une fois la réponse thérapeutique obtenue.

Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
Revue de presse

La transplantation fécale est-elle au point ?

Retour de congrès

Par le Pr Danny De Looze
Gastro-entérologie, Hôpital universitaire de Gand, Belgique

Photo : Fecal transplantation - ready for prime time?

Même si nous n’avons pas encore percé tous les secrets et mystères du microbiote intestinal, le traitement des maladies gastro-intestinales par la modulation du microbiote suscite beaucoup d’espoir. La transplantation de microbiote fécal apparaît comme le Saint Graal. Mais l’est-elle vraiment ? Lors du congrès UEGW 2018 de Vienne, de nombreuses conférences étaient dédiées à ce sujet.

Le donneur idéal

Même si, jusqu’à présent, personne ne sait vraiment comment définir avec précision un microbiote intestinal « normal » (« eubiose »), nous savons qu’une grande diversité microbienne et une richesse génétique sont d’une importance capitale dans l’équilibre hôte-microbiote. Le donneur idéal doit donc être sélectionné d’après sa richesse bactérienne. Un marqueur pour cette propriété a été proposé par Marie Joossen (Louvain, Belgique), qui a souligné que la présence de Blastocystis hominis était corrélée avec une plus grande richesse microbienne [1]. Cette observation – si elle est confirmée par d’autres – pourrait changer notre pratique, qui consiste actuellement à écarter les porteurs de cette espèce commensale des donneurs potentiels. L’enrichisse- ment du microbiote du donneur avec des prébiotiques ou l’utilisation de multiples donneurs pourraient aussi (en théorie) garantir une plus grande diversité initiale des selles à transplanter. Ce phénomène a également été observé par Karakan et al. (Ankara, Turquie), qui ont réalisé un essai ouvert dans la rectocolite hémorragique avec un taux global de réponse complète de 32 %, particulièrement influencé par une importante diversité bactérienne dans la matière fécale donnée.

Le nouvel or brun

Le respect strict des recommandations actuelles en matière de sélection des donneurs de matière fécale impose de rejeter la plupart des donneurs. Terveer et al. (Leyde, Pays-Bas) rapportent que seuls 3,5 % des donneurs potentiels conviennent in fine [2]. Les principales raisons de refus sont les suivantes : âge supérieur à 50 ans, IMC élevé et statut du porteur vis- à-vis des germes non pathogènes (Blastocystis hominis, Dientamoeba fragilis) et des organismes multirésistants (OMR) [2].

Clostridium Difficile 

La principale indication de la transplantation de microbiote fécal reste l’infection récidivante à Clostridium difficile. Dans une série rétrospective de 282 patients atteints d’une infection à C. difficile, Ianiro et al. (Rome, Italie) ont comparé traitement antibiotique et transplantation fécale ; ils ont montré que la greffe entraînait un raccourcissement significatif de la durée d’hospitalisation, une diminution significative de la mortalité, en particulier par sepsis.

Antonio Gasbarrini (Rome, Italie) estime que l’heure est venue de promouvoir la transplantation de microbiote fécal en traitement de première ligne dans l’infection à C. difficile.

Élargir la portée de la TMF

A. Gasbarrini a proposé une revue intéressante des indications prometteuses de la transplantation de microbiote fécal. Il a été démontré que les greffes fécales res- taurent davantage le microbiote humain que les probiotiques après une dysbiose induite par antibiotiques chez l’homme. La même observation a été faite après une dysbiose induite par chimiothérapie et antibiotiques dans le cadre d’une greffe de cellules souches hématopoïétiques et chez des patients atteints de cirrhose hépatique. Des modèles murins démontrent même une restauration de la fonction immunitaire et de l’intégrité intestinale après une atteinte intestinale induite par chimiothérapie. A. Gasbarrini plaide donc en faveur d’une conservation préventive des selles en vue d’une transplantation autologue ultérieure de microbiote fécal, par exemple après une antibiothérapie ou une greffe de moelle osseuse. Il faut attendre d’obtenir des preuves in vivo dans le cadre d’essais cliniques avant de pouvoir mettre en œuvre cette stratégie, qui pourrait bien voir le jour à l’avenir. Quoi qu’il en soit, il semble assez logique que la collecte des propres selles du patient en vue d’une transplantation autologue ultérieure soit la voie à suivre.

Rectocolite hémographique

Dans 3 essais randomisés et contrôlés publiés sur 4, la transplantation de microbiote fécal était supérieure au placebo chez des patients atteints de rectocolite hémorragique (RCH) réfractaire [3]. Le taux moyen de rémission observé dans ces études n’était néanmoins que de 25 à 30 %, et Rainer et al. (Graz, Autriche) ont présenté une étude avec des taux similaires de rémission complète, montrant l’absence de valeur ajoutée de l’ad- ministration de selles fraîches chez ces patients. Cependant, il n’existait jusqu’à présent aucun protocole standardisé de transplantation fécale dans la RCH. Des taux de rémission de 30 % semblent faibles, mais il faut mettre les choses en perspective : c’est également le taux de rémission obtenu avec les biomédicaments, très coûteux et largement utilisés [...]. L’importance du microbiote colique dans la RCH a été mise en évidence par Herrera-de Guise et al. (Barcelone, Es- pagne), qui ont montré que les patients en rémission stable prolongée (depuis plus de 5 ans) présentent une abondance de Akkermansia muciniphila et Faecalibacterium prausnitzii similaire à celle observée chez les témoins sains. Ces auteurs suggèrent même que nous devrions réfléchir à un changement de paradigme dans le traitement de la RCH : notre objectif thérapeutique ne devrait peut-être plus être l’immunosuppression, mais plutôt la recherche d’un équilibre du microbiote.

Syndrome de l'intestin irritable

Le syndrome de l’intestin irritable (SII) est assurément la maladie pour laquelle les attentes de guérison par transplantation fécale sont très élevées, à la fois chez les patients et les professionnels de santé. Pourtant, les résultats contradictoires des essais randomisés et contrôlés [4, 5] ne vont actuellement pas dans le sens d’un usage généralisé de ce traitement dans le SII. La dysbiose intestinale est présente dans le SII mais il semble ne pas y avoir de lien de causalité clair entre ces modifications microbiennes et les symptômes. Halkjaer et al. (Copenhague, Danemark) ont réalisé un essai randomisé et contrôlé chez 52 patients adultes ; une augmentation de la biodiversité (comparable à celle des donneurs) a été observée chez les patients du groupe traitement actif [5]. Malheureusement, le groupe placebo a obtenu un résultat clinique significativement meilleur à 3 et 6 mois que celui recevant des capsules fécales [5]. Dans une petite cohorte de 16 patients at- teints du SII, Holster et al. (Orebro, Suède) n’ont pas pu démontrer l’efficacité de la transplantation fécale vs placebo. Ils ont également étudié la sensibilité rectale par barostat et n’ont montré aucune différence entre les groupes actif et témoin, concluant que la modification du microbiote ne contribue pas à l’hypersensibilité viscérale dans le SII.

Gélules de bactéries

Ianiro et al. ont réalisé avec succès un essai en ouvert dans l’infection à C. difficile avec une suspension de microbiote synthétique (10 patients seulement). Khanna et al. (Rochester, États-Unis) ont également démontré l’efficacité d’un produit restaurant le microbiote administré par voie orale, lyophilisé et non congelé (RBX7455) dans la prévention de l’infection récidivante à C. difficile dans un essai ouvert de phase I. Ces résultats sont prometteurs et doivent être confirmés dans des essais randomisés à grande échelle.

Conclusion

Le congrès UEGW 2018 a permis d’en savoir plus sur les critères de sélection des donneurs ainsi que sur les nouvelles indications prometteuses de la transplantation fécale qui pourraient apparaître dans les années à venir. À ce jour, l’infection récidivante à Clostridium difficile reste la seule indication validée de ce traitement, qui n’est pas encore au point dans d’autres affections.

Expliquez ce qu'est la greffe fécale à vos patients grâce à ce contenu dédié: 

Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
Retour congrès

Pratiques alimentaires de la naissance à 12 mois : quel impact sur le microbiote intestinal et le risque de surpoids ?

Article commenté - Rubrique enfant

Par le Pr. Emmanuel Mas
Gastro-entérologie et nutrition, Hôpital des Enfants, Toulouse, France

Photo : Feeding practices from birth to 12 months: impact on the gut micro- biota and the risk of being overweight

Commentaire de l’article original de Forbes et al. (JAMA Pediatr 2018) [1]

L’objectif était de définir le lien entre modalités d’alimentation, microbiote et surpoids chez le nourrisson et le jeune enfant. L’étude a inclus 1 087 nourrissons ; le microbiote fécal a été caractérisé à M3-M4 et M12 par séquençage de l’ARNr 16S. À M3, les nourrissons exclusivement nourris au lait maternisé avaient un risque accru de surpoids. À M12, les profils étaient significativement différents selon les pratiques alimentaires à M6 : la supplémentation en lait maternisé chez les nourrissons partiellement allaités était associée à un profil similaire à celui des nourrissons non-allaités, contrairement à la diversification alimentaire sans supplémentation préalable. L’allaitement maternel pourrait protéger du surpoids en modulant le microbiote ; à noter que ce dernier différait faiblement après une brève exposition au lait maternisé à la maternité. L’alimentation et la supplémentation avec lait maternisé semblent être associées à un surpoids contrairement aux autres aliments complémentaires.

Que sait-on déjà à ce sujet ?

Dès la naissance, certains facteurs influencent la survenue ultérieure d’une obésité. L’allaitement maternel a un effet protecteur, en partie en raison d’une teneur plus faible en protéines. Le microbiote intestinal (MI) doit également être pris en considération car il influence l’absorption et le métabolisme énergétique. Le MI se met en place au cours des 2-3 premières années de vie, et le mode d’alimentation du nouveau-né (allaitement maternel vs laits pour nourrissons) est l’un des facteurs principaux de modulation du MI. Chez les adultes obèses, la diversité du MI est diminuée et le rapport Firmicutes/Bacteroidetes augmenté.

Quels sont les principaux résultats apportés par cette étude ?

Cette étude est basée sur les données de la cohorte de naissance CHILD (Canadian Healthy Infant Longitudinal Development) ; 1 087 enfants de cette cohorte ont été inclus avec analyse du microbiote fécal à 3-4 mois (n = 996), à 12 mois (n = 821) et aux 2 temps (n = 730). Les mères ont rempli des questionnaires concernant les modalités d’alimentation à 3 et 6 mois, ce qui a permis de distinguer différents groupes en fonction de l’allaitement maternel (Tableau 1). Le taux d’accouchement par voie basse était de 74,2 % ; 39,8 % des mères étaient en surpoids ou obèses. Le taux d’allaitement exclusif était de 53,8 % à 3 mois et de 17,6 % à 6 mois.

À 3 mois, l’allaitement exclusif protégeait du risque de surpoids (défini par un rapport poids mesuré/poids attendu pour la taille > 85e p) à 12 mois par rapport à la prise exclusive de lait infantile : 19,2 % vs 33,3 %, sans effet significatif de l’ajuste- ment (Tableau 1). À 6 mois, la prise de lait infantile en complément de l’allaitement augmentait ce risque de surpoids à 12 mois, ce qui n’était pas le cas pour les aliments solides. Enfin, un allaitement prolongé avait un effet protecteur.

Comme attendu, on retrouve à 3-4 mois une richesse et une diversité du MI différentes en fonction de l’alimentation des nourrissons ; il existe une structure significativement différente du MI entre les nourrissons exclusivement allaités et les groupes de nourrissons non allaités (figure1). En augmentant l’allaitement exclusif, les auteurs retrouvaient une abondance relative augmentée des Bifidobacteriaceae et des Enterobacteriaceae et une diminution des Lachnospiraceae, Veillonellaceae et Ruminococcaceae.

Le MI à 12 mois était plus homogène mais des différences persistaient en fonction du mode d’alimentation à 6 mois : richesse augmentée chez les nourrissons recevant, au moins en partie, des laits pour nourrissons ; abondance relative d’Actinobacteria et de Proteobacteria plus élevée dans le groupe allaitement exclusif et plus basse chez ceux non-allaités.

Le surpoids ou le risque de surpoids à 12 mois était augmenté quand le MI était plus riche à 3-4 mois, notamment en Lachnospiraceae avec une abondance relative médiane de 5,9 % (surpoids), 4,7 % (risque de surpoids) et 1,9 % (poids normal) (p = 0,01) (Figure 2).

Image

Points clés

  • L’allaitement maternel protège du surpoids à un an

  • Cet effet est médié par la constitution du microbiote intestinal

  • Des études sont nécessaires pour rechercher si cet effet persiste à plus long terme

Quelles conséquences en pratique ?

Cette étude montre d’une part le bénéfice de l’allaitement maternel sur le surpoids à un an et d’autre part que ce bénéfice est lié à une modulation du MI. En outre, il est important de promouvoir un allaitement maternel exclusif dès la naissance, en limitant la prise de complément de lait pour nourrissons à la maternité. Enfin, ce bénéfice est majoré par un allaitement maternel prolongé. L’introduction d’aliments solides n’a pas d’impact négatif alors que la prise de complément de lait pour nourrissons en a un.

Image
Image

Conclusion

L’allaitement maternel, a fortiori prolongé, a un effet protecteur sur le surpoids à un an. Même utilisés en complément, les laits pour nourrissons entraînent une augmentation de la richesse et de la diversité du MI à 3-4 mois, notamment en Lachnospiraceae, et un risque de surpoids à 12 mois augmenté.

Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
Article commenté

Résilience du microbiote intestinal d'adultes en bonne santé suite à l'exposition à un antibiotique

Article commenté - Rubrique adulte

Par le Pr. Harry Sokol
Gastro-entérologie et nutrition, Hôpital Saint-Antoine, Paris, France

Commentaire de l’article original de Palleja et al. (Nature Microbiology 2018)

Pour minimiser l’impact des antibiotiques, les micro-organismes intestinaux ont et échangent des gènes de résistance aux antibiotiques appelés leur résistome. En utilisant une méthode de séquençage métagénomique par shotgun, les auteurs ont analysé l’éradication partielle du microbiote intestinal et sa résilience chez 12 hommes en bonne santé sur une période de 6 mois à la suite d’une intervention de 4 jours avec un cocktail de 3 antibiotiques de dernier recours : méropénème, gentamicine et vancomycine. Les changements initiaux comprenaient la prolifération d’entérobactéries et d’autres pathobiontes, comme Enterococcus faecalis et Fusobacterium nucleatum, et la disparition des bactéries du genre Bifidobacterium et des producteurs de butyrate. Le microbiote intestinal des sujets étudié est revenu à un état proche de l’état initial en 1,5 mois, bien que 9 espèces, qui étaient présentes chez tous les sujets avant le traitement, soient restées indétectables chez la plupart des sujets après 180 jours. Les espèces porteuses de gènes de résistance aux β-lactamines ont été sélectionnées positivement pendant et après l’intervention. Le portage de gènes de résistance aux glycopeptides ou aux aminoglycosides augmentaient les chances de colonisation de novo.
Les changements de composition du microbiote induits par une intervention antibiotique in vivo étaient concordants avec les résultats obtenus par des tests in vitro. Malgré une empreinte légère mais durable à la suite de l’exposition aux antibiotiques, le microbiote intestinal de jeunes adultes en bonne santé est résilient à une intervention antibiotique à large spectre à court terme, et leur portage de gène de résistance aux antibiotiques module leur processus de récupération. [1]

Que sait-on déjà à ce sujet ?

Le microbiote intestinal humain forme un écosystème complexe et équilibré. Les perturbations de cet écosystème peuvent jouer un rôle dans la survenue d’infections, d’obésité, de diabète et pathologies inflammatoires et neurologiques. Il est estimé qu’une augmentation de l’espérance de vie de 2 à 10 ans est attribuable aux antibiotiques. Cependant, l’exposition précoce aux antibiotiques a également été associée à des effets métaboliques, inflammatoires et neurologiques délétères, à la fois dans les modèles animaux et chez l’homme. Lorsqu’elles sont exposées à des antibiotiques, les communautés microbiennes réagissent non seulement en modifiant leur composition, mais aussi en évoluant, optimisant et diffusant les gènes de résistance aux antibiotiques (GRA), formant collectivement le résistome [2]. Le microbiote intestinal humain est considéré comme un réservoir pour les GRA, ses membres échangent ces gènes, propageant ainsi la résistance [3]. Le développement et la diffusion de la résistance microbienne aux antibiotiques est un grave problème de santé publique. Seules quelques études ont caractérisé les effets d’antibiotiques particuliers sur les écosystèmes intestinaux vis-à- vis des résistomes associés. Plusieurs études précédentes ont montré que l’administration d’antibiotiques induisait une diminution de la diversité et une augmentation du portage de GRA [4, 5]. Cependant, les effets d’une combinaison d’antibiotiques sur le microbiote et le rôle des GRA dans la persistance microbienne intestinale n’ont pas encore été étudiés. Dans la présente étude, 12 hommes en bonne santé (âgés de 18 à 40 ans) ont reçu un cocktail d’antibiotiques de dernier recours (vancomycine, gentamicine et méropénème), et les auteurs ont étudié les effets sur le microbiote intestinal en utilisant une approche par séquençage en shotgun sur des échantillons fécaux prélevés avant et à quatre moments différents sur une période de six mois après le traitement.

Image

Fer de lance de l'arsenal thérapeutique moderne, les antibiotiques ont sauvé des millions de vie. En revanche, leur utilisation excessive et parfois injustifiée peut conduire à l'apparition de différentes formes de résistance chez les micro-organismes. Chaque année, l'Organisation Mondiale de la Santé (OMS) organise la Semaine mondiale de sensibilisation à la résistance aux antimicrobiens (WAAW) afin de sensibiliser la population sur ce problème de santé publique. Lisez la page qui y est consacrée.

Résistance aux antibiotiques : le microbiote au premier plan

L'utilisation massive et parfois inappropriée des antibiotiques les rend de plu…

Qu'est-ce que la Semaine mondiale de sensibilisation à la résistance aux antimicrobiens ?

Depuis 2015, l'OMS organise chaque année la Semaine mondiale de sensibilisation à la résistance aux antimicrobiens (WAAW) dont l'objectif est de sensibiliser sur le phénomène mondial de la résistance aux antimicrobiens. Cette campagne, qui se tiendra du 18 au 24 novembre, encourage le grand public, les professionnels de santé et les décideurs à faire un bon usage des antimicrobiens afin d'éviter l'apparition de résistance.

Quels sont les principaux résultats apportés par cette étude ?

À J4, immédiatement après l’intervention, la richesse et la diversité du microbiote étaient considérablement réduites par rapport à J0. Cependant, malgré le très large spectre du traitement antibiotique utilisé, de nombreuses espèces étaient toujours détectables à J4 (Figure 1a). Dès J8, la diversité (mesurée par l’index de Shannon) avait considérablement augmenté, suggérant que les micro-organismes survivants avaient commencé à se régénérer (Figure 1b). La diversité était quasiment complètement revenue à l’état initial à 6 mois, mais ce n’était pas le cas pour la richesse, suggérant que certaines souches avaient été éliminées de manière définitive (ou au moins prolongée).

Parmi les changements précoces observés, il y avait un enrichissement en commensaux habituellement sous-dominants comme Escherichia coli, Veillonella spp., Klebsiella spp., Enterococcus faecalis et Fusobacterium nucleatum et une diminution majeure en bactéries productrices de butyrate comme Faecalibacterium prausnitzii, Roseburia hominis, Anaerostipes hadrus, Coprococcus spp. et Eubacterium spp. Ces altérations en composition n’étaient plus significatives dès J42.

Les auteurs ont ensuite investigué le rôle de GRA dans l’évolution du microbiote des sujets étudiés. Ils ont notamment observé que les espèces métagénomiques porteuses de β-lactamases avaient des chances de survie significativement plus élevées (OR = 1,64 [1,24-2,17]) à J8. D’autre part, les espèces métagénomiques non détectées à J0 avaient plus de chances de colonisation de novo à un point ultérieur si elles portaient des GRA contre l’une des trois classes utilisées.

Points clés

  • Le microbiote intestinal de jeunes adultes en bonne santé est résilient à quatre jours de traitement antibiotique à large spectre avec une récupération sur approximativement 6 mois de la plupart des communautés bactériennes

  • La récupération individuelle des espèces est modulée par le portage de GRA

  • L’effet de traitements antibiotiques prolongés ou itératifs reste à étudier, particulièrement en population pédiatrique

Quelles conséquences en pratique ?

Ces résultats démontrent que le microbiote intestinal de jeunes adultes en bonne santé est résilient à quatre jours de traitement antibiotique à large spectre avec une récupération de la plupart des communautés bactériennes en approximativement 6 mois. La récupération individuelle des espèces est modulée par le portage de GRA. D’autres études sont nécessaires pour évaluer l’effet de perturbations itératives et/ou sur des périodes plus prolongées et si ces résultats sont aussi valides chez l’enfant ayant un microbiote et un système immunitaire immatures. Il est possible que l’utilisation itérative d’antibiotiques sur des périodes prolongées sélectionne des bactéries porteuses de GRA au détriment d’autre bactéries commensales, avec des effets prolongés ou permanents sur le microbiote. Dans ce cas, des interventions correctrices avec apport exogène de micro-organismes pourraient être envisagées. Les effets des antibiotiques sur le microbiote intestinal sont donc importants et leur utilisation doit être raisonnée.

Conclusion

Les antibiotiques à large spectre impactent négativement le microbiote intestinal de manière immédiate, significative et durable pour certaines espèces. Chez les adultes jeunes en bonne santé, le microbiote intestinal est résilient mais la récupération quasi-complète prend environ 6 mois. Modulée par le portage de GRA, la capacité de régénération des espèces est plus favorable à la diversité qu’à la richesse.

Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
Article commenté Gastroentérologie Off

Microbiote et maladie Cœliaque

Synthèse

Par le Pr. Elena F. Verdu
Farncombe Family Digestive Health Research Institute, Université McMaster, Hamilton, Canada

Des facteurs environnementaux seraient impliqués dans la pathogenèse de la maladie cœliaque (MC), une maladie auto-immune déclenchée par l’ingestion de gluten. Des études cliniques montrent des altérations de la composition du microbiote chez les patients atteints de MC. Même si certaines caractéristiques constantes ont été mises en évidence dans les différentes études réalisées, aucune signature microbienne de cette maladie n’a été identifiée. À l’aide de modèles animaux gnotobiotiques* et réductionnistes, une récente étude a suggéré que les souches bactériennes provenant de patients ayant une MC pouvaient avoir un potentiel pathogène ou inflammatoire plus important. La modulation du microbiote avec des probiotiques spécifiques, permettant de modifier certains mécanismes pathogènes essentiels à la maladie cœliaque, pourrait constituer une approche thérapeutique intéressante en complément du régime sans gluten.

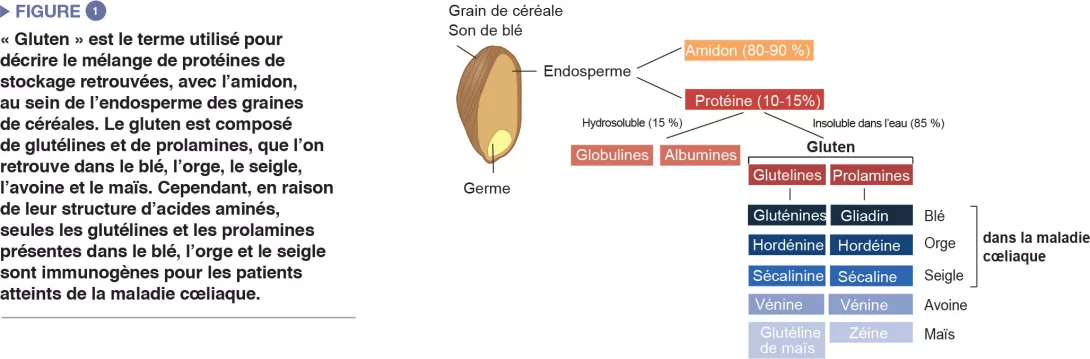
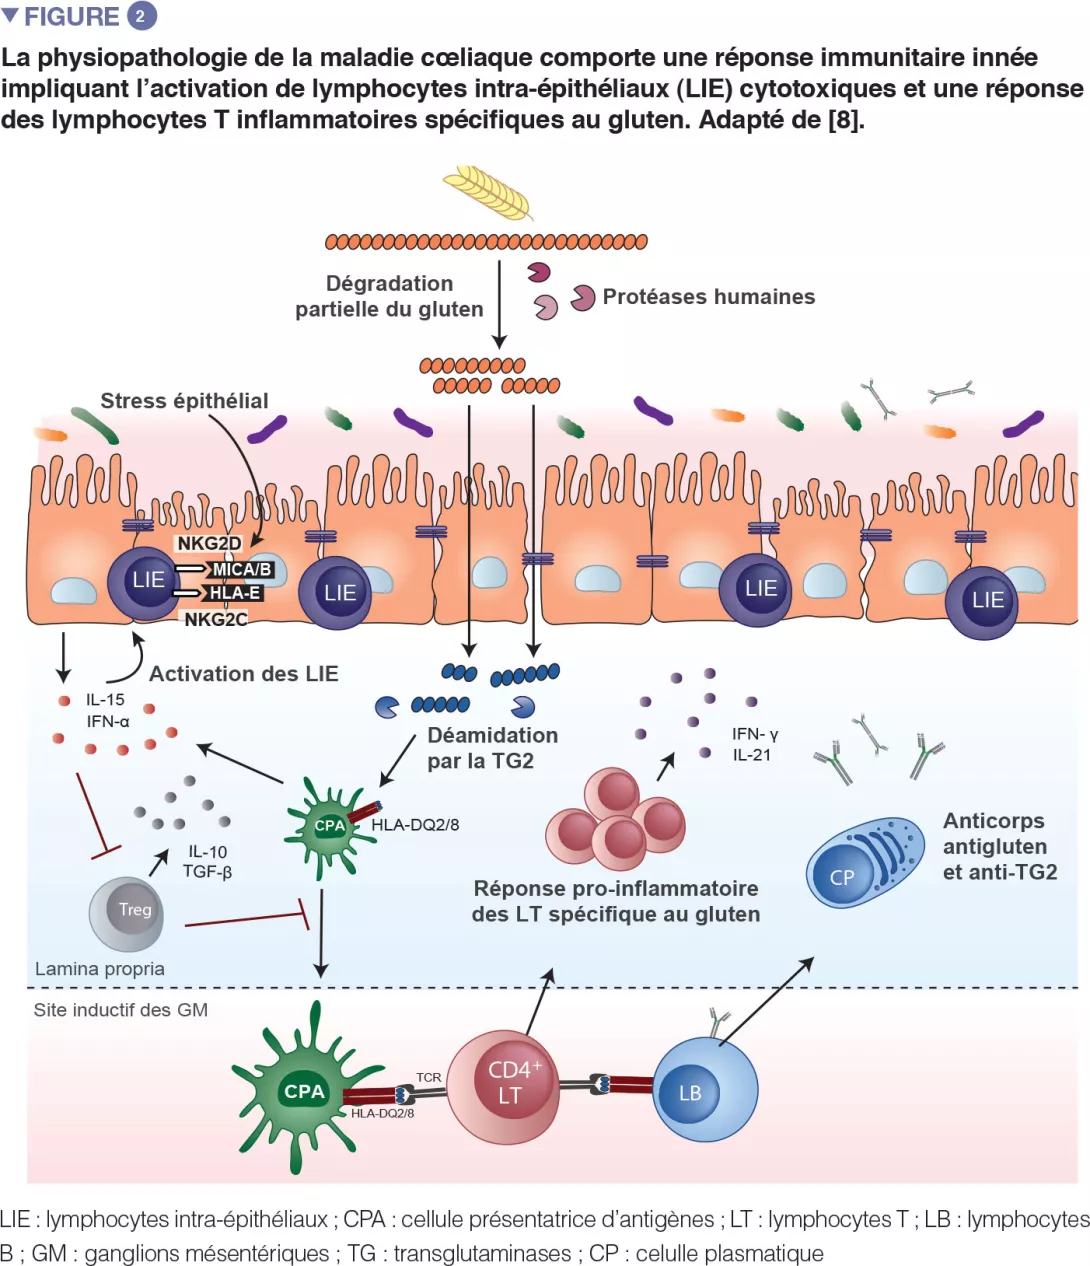
La maladie cœliaque est une réaction inflammatoire auto-immune fréquente, survenant chez les personnes génétiquement prédisposées, suite à la consommation de gluten (Figure 1). La lésion caractéristique est la destruction des villosités de la muqueuse de l’intestin grêle (entéropathie). Les manifestations cliniques de la maladie sont variées et incluent des symptômes intestinaux et extra-intestinaux. La MC est la seule maladie auto-immune dans laquelle l’antigène déclenchant (le gluten) est identifié. On connaît bien les mécanismes qui expliquent le risque génétique HLA et les étapes provoquées par le facteur alimentaire conduisant au développement de lymphocytes T pro-inflammatoires spécifiques au gluten et d’auto-anticorps (Figure 2). En revanche, on ignore pourquoi la prévalence de la maladie a rapidement augmenté ces dernières années et pourquoi la MC ne se développe que chez une fraction de personnes génétiquement prédisposées, suggérant l’implication d’autres facteurs génétiques ou environnementaux dans l’activation de la cascade inflammatoire. Le rôle des facteurs microbiens dans le développement de la maladie cœliaque fait notamment l’objet d’un intérêt croissant [1]. Dans cette revue, nous nous concentrons sur les altérations bactériennes et cherchons à déterminer leur rôle dans les mécanismes pathologiques ainsi que la manière dont elles pourraient constituer des cibles thérapeutiques potentielles.

Image

Corrélation entre dysbiose et maladie cœliage : leçon des études cliniques

L’une des premières études à suggérer une contribution microbienne dans la MC décrivait la présence de bactéries en forme de bâtonnet dans les biopsies duodénales d’enfants nés pendant une « épidémie » de MC en Suède. Ces bactéries n’ont pas été observées chez les enfants non atteints ni chez ceux nés après l’épidémie. On a alors pensé que leur présence pouvait avoir contribué à l’augmentation de l’incidence de la maladie observée en Suède [2]. Cependant, on ignore toujours les mécanismes sous-tendant cette association.

Image

Un certain nombre d’études publiées de- puis ont analysé la composition du microbiote présent dans le côlon et au niveau de l’intestin grêle chez des patients atteints  de MC par rapport à des témoins sains. Certaines caractéristiques relativement constantes ont été mises en évidence dans les différentes études réalisées : des augmentations des proportions de Bacteroides et de membres du phylum des Proteobaceria, et des diminutions de Lactobacillus et de Bifidobacteria chez les patients cœliaques par rapport aux témoins [1]. Une abondance accrue de Proteobacteria a également été retrouvée chez des patients souffrant de symptômes persistants malgré un régime sans gluten [3]. Plus récemment, il a été montré que la composition du microbiote d’enfants présentant un risque génétique élevé de développer la maladie était différente de celle d’enfants présentant un risque génétique faible [4-6]. Enfin, il a été suggéré que les enfants à risque ayant développé la MC avaient une diversité microbienne initiale plus importante mais qui n’a pas augmenté avec l’âge, ce qui indiquerait une « maturation prématurée » du microbiote intestinal [7]. Les résultats laissent supposer que les modifications précoces du microbiote pourraient prédisposer à la maladie, mais des essais plus vastes portant sur des échantillons plus im-portants sont nécessaires pour confirmer ces observations. Néanmoins, aucune « signature microbienne » cœliaque n’a été établie. Les différences au niveau de la localisation des populations d’étude, du statut des sujets témoins, de l’origine des échantillons (selles vs intestin grêle) et de la méthodologie pourraient avoir contribué aux divergences constatées entre les études. Des observations contradictoires ont également été rapportées concernant les associations entre les événements pouvant altérer le développement du microbiote et le développement de la MC. Alors que les premières études suggéraient que l’utilisation d’antibiotiques et l’accouchement par césarienne pouvaient augmenter le risque de MC, des études cliniques plus récentes menées à plus grande échelle n’ont pas confirmé ces associations [8].

Le suivi à long terme des enfants à risque pourrait permettre de mieux comprendre les facteurs susceptibles de contribuer au déclenchement de la maladie. Malgré l’absence d’élément permettant d’établir un lien de causalité, ces associations cliniques ont stimulé l’étude des mécanismes fondamentaux en cause dans des systèmes réductionnistes et des modèles animaux.
Mécanismes microbiote-maladie cœliaque : que dit la recherche ?

Pour mieux comprendre comment les bactéries peuvent être impliquées dans la pathogenèse ou le développement de la MC, il faut étudier la fonction de la communauté microbienne chez des patients atteints de MC vs des sujets sains. L’isolement de bactéries provenant de l’intestin grêle humain permet une traduction en modèles réductionnistes. Par exemple, les souches d’Enterobacteriaceae isolées chez des patients cœliaques étaient plus virulentes que celles isolées chez les témoins sains [9]. De plus, les souches d’Escherichia coli isolées chez des enfants cœliaques avaient une plus grande capacité pro-inflammatoire in vitro que les souches de Bifidobacterium isolées chez les enfants sains [10]. L’introduction d’un microbiote d’origine humaine chez des souris axéniques* permet une comparaison in vivo des phénotypes induits. En outre, ces souris peuvent ex- primer les caractéristiques du système immunitaire humain (expression de la classe II du CMH par exemple) qui sont essentielles au développement de la maladie cœliaque. Des souris transgéniques exprimant HLA-DQ8, le gène du risque cœliaque chez l’homme, étaient protégées de la pathologie induite par le gluten quand elles étaient colonisées de façon minimale avec un microbiote dépourvu d’agents pathogènes ou de bactéries opportunistes. Cependant, si une souche adhérente d’E. coli, isolée dans l’intestin cœliaque, était ajoutée aux bactéries protectrices, les souris développaient la pathologie induite par le gluten. De manière similaire, le traitement antibiotique par vancomycine de souris possédant un microbiote murin diversifié a entraîné une augmentation de Proteobacteria, notamment d’E. coli, et une aggravation de la pathologie induite par le gluten [11].

Image

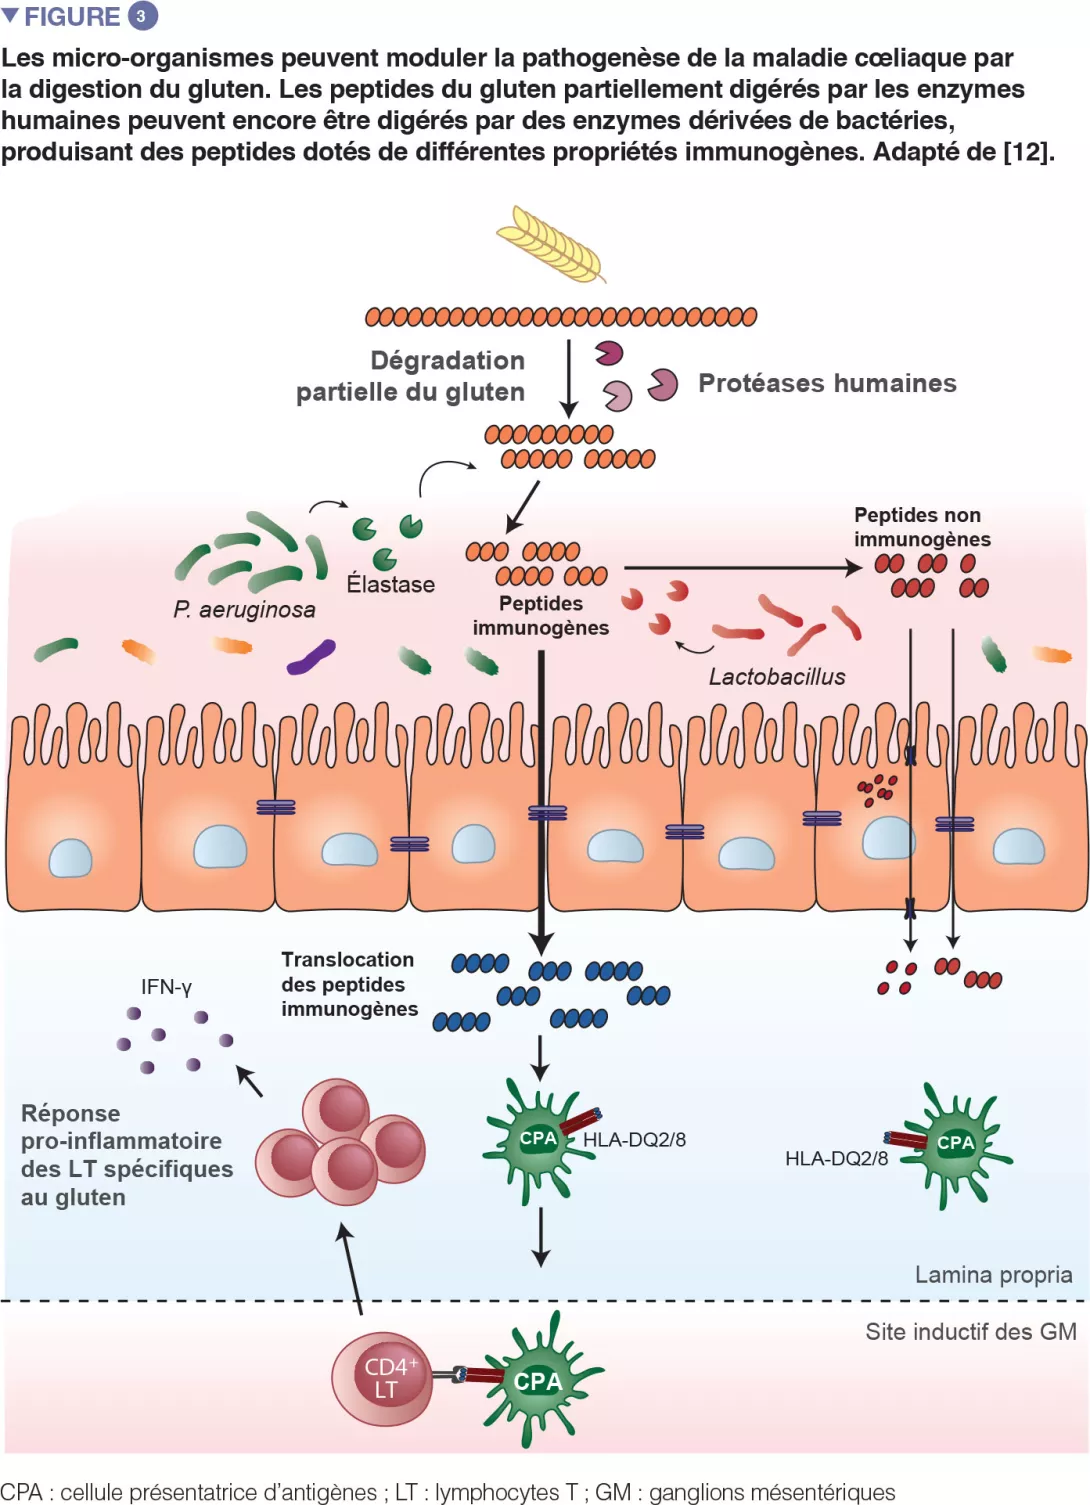
De récents travaux translationnels conduits chez la souris ont réitéré l’observation selon laquelle des bactéries sont capables de dégrader le gluten (Figure 3). Cette étude a été réalisée avec des souris gnotobiotiques colonisées avec des agents pathogènes opportunistes, comme Pseudomonas aeruginosa, ou avec des commensaux, comme Lactobacillus. Les auteurs ont montré que différentes bactéries peuvent dégrader le gluten in vivo, mais que les fragments protéiques qu’elles produisent sont distincts. Cette étude a également démontré que les enzymes issues de P. aeruginosa, isolée chez un patient cœliaque, pouvaient dégrader le gluten. Ce processus de digestion a produit des fragments de gluten qui ont stimulé une réponse immunitaire inflammatoire dans les cellules isolées chez les patients atteints de la MC et qui étaient davantage capables de franchir la barrière de l’intestin grêle, siège de l’interaction avec les cellules immunitaires. Plusieurs peptides générés par la digestion de P. aeruginosa et ultérieurement digérés avec des lactobacilles, isolés chez un sujet sain et constituant un élément central du microbiome sain, n’induisaient plus de réponses immunitaires inflammatoires in vitro. Cette étude a mis en évidence le fait que les agents pathogènes opportunistes, mais aussi les commensaux, peuvent modifier le répertoire et les propriétés immunitaires des peptides du gluten dans l’intestin, impactant ainsi la prédisposition à la maladie [12].

Les micro-organismes peuvent-ils être utilisés pour traiter ou prévenir la maladie cœliaque

Un diagnostic de MC implique l’éviction stricte à vie de tout aliment contenant du gluten parce qu’une exposition à des quantités, même faibles, peut déclencher toute une variété de symptômes et une entéropathie chez les personnes touchées. Le gluten est omniprésent dans les aliments transformés, d’où la difficulté d’une observance stricte et le développement de recherches visant à trouver des traitements alternatifs ou adjuvants. Compte tenu du rôle clé des micro-organismes dans la régulation de l’immunité et de l’association entre MC et altération de la composition et de la fonction du microbiote, le potentiel thérapeutique de différents probiotiques a été testé. Une souche de Bifidobacterium longum, qui a précédemment démontré des effets anti-inflammatoires in vitro [10- 13], a été testée chez des enfants suivant un régime sans gluten dans le cadre d’un essai contrôlé vs placebo en double aveugle.

Métabolisme du gluten par les bactéries

  • Le gluten est très résistant à la dégradation par les enzymes digestives de l’hôte dans l’intestin grêle en raison de sa structure d’acides aminés

  • Il reste alors de gros fragments de gluten capables d’induire des réponses immunitaires une fois qu’ils ont franchi la barrière épithéliale chez les personnes génétiquement prédisposées

  • Le tractus gastro-intestinal contient des bactéries capables de dégrader le gluten, et ces bactéries peuvent différer entre les patients atteints de la maladie cœliaque et le sujet sain [17]

L’administration du probiotique a produit des modifications immunitaires, ainsi que des taux plus faibles de bactéries potentiellement nocives (B. fragilis). Cependant, aucune modification des symptômes n’a été observée chez les enfants qui ont reçu le probiotique par rapport à ceux ayant reçu le placebo [14]. Comme le probiotique a été administré avec le régime sans gluten, il est difficile de faire la distinction entre les effets induits par la restriction alimentaire et ceux provoqués par le probiotique. Deux autres études ont testé les effets d’une souche de Bifidobacterium infantis. Le premier essai randomisé contrôlé vs placebo en double aveugle a démontré que les patients recevant le probiotique présentaient une amélioration significative des symptômes après 3 semaines, mais aucune différence n’a été constatée au niveau de la perméabilité intestinale [15]. Un essai de suivi visait à déterminer si le même probiotique pouvait moduler les réponses immunitaires innées, qui pourraient être responsables de l’amélioration des symptômes précédemment observée. L’administration d’une souche de B. infantis a produit une diminution du nombre de cellules de Paneth dans l’intestin grêle, en parallèle à une diminution des peptides antimicrobiens. Ces effets du probiotique étaient indépendants du régime sans gluten [16]. Compte tenu du faible nombre de patients inclus à ces études, aucun élément à ce jour ne permet de recommander un probiotique en particulier dans la MC. De plus, les probiotiques consommés par les patients cœliaques doivent être rigoureusement certifiés sans gluten, ce qui n’est pas le cas de toutes les préparations en vente libre. Avant toute consommation par le patient, nous devons mieux comprendre les mécanismes d’action, et ceux choisis en vue de tests complémentaires doivent être sélectionnés sur la base de leur implication dans les voies de la MC. Par exemple, les bactéries qui aident à la détoxification du gluten pourraient être sélectionnées et utilisées pour compléter le régime sans gluten. Cependant, à ce jour, aucune des bactéries testées n’a montré une digestion optimale du gluten in vitro. Les études réalisées se sont concentrées sur les souches bactériennes produisant des enzymes capables de dégrader le gluten, mais des espèces fongiques comme Aspergillus niger produisent également des enzymes dégradant le gluten, et des combinaisons rationnelles d’organismes fongiques et bactériens pourraient offrir un axe intéressant de recherche thérapeutique dans la MC.

Conclusion

Le rôle du microbiote intestinal dans la MC est désormais évident. Au-delà des associations cliniques, des systèmes réductionnistes et des modèles animaux gnotobiotiques ont montré que des micro-organismes spécifiques pouvaient moduler des étapes clés dans la pathogenèse de la maladie cœliaque. L’utilisation de ces systèmes pour étudier les interactions spécifiques micro-organismes-hôte et micro-organismes-gluten et des études cliniques plus vastes impliquant le suivi des personnes à risque sont essentielles pour comprendre comment les micro-organismes peuvent déclencher la maladie. Cela pourrait permettre de mettre au point des stratégies préventives ciblées sur les micro-organismes ou des traitements adjuvants au régime sans gluten.

Références

1 Verdu EF, Galipeau HJ, Jabri B. Novel players in coeliac disease pathogenesis: role of the gut microbiota. Nat Rev Gastroenterol Hepatol 2015 ; 12 : 497-506.

2 Ou G, Hedberg M, Hörstedt P, et al. Proximal small intestinal microbiota and identification of rod-shaped bacteria associated with childhood celiac disease. Am J Gastroenterol 2009 ; 104 : 3058-67.

3 Wacklin P, Laurikka P, Lindfors K, et al. Altered duodenal microbiota composition in celiac disease patients suffering from persistent symptoms on a long-term gluten-free diet. Am J Gastroenterol 2014 ; 109 : 1933-41.

4 Olivares M, Neef A, Castillejo G, et al. The HLA-DQ2 genotype selects for early intestinal microbiota composition in infants at high risk of developing coeliac disease. Gut 2015 ; 64 : 406-17.

5 Sellitto M, Bai G, Serena G, et al. Proof of concept of microbiome-metabolome analysis and delayed gluten exposure on celiac disease autoimmunity in genetically at-risk infants. PLoS One 2012 ; 7 : e33387.

6 Olivares M, Benítez-Páez A, de Palma G, et al. Increased prevalence of pathogenic bacteria in the gut microbiota of infants at risk of developing celiac disease: The PROFICEL study. Gut Microbes 2018 ; 9 : 551-8.

7 Olivares M, Walker AW, Capilla A, et al. Gut microbiota trajectory in early life may predict development of celiac disease. Microbiome 2018 ; 6 : 36.

8 Tye-Din JA, Galipeau HJ, Agardh D. Celiac disease: a review of current concepts in pathogenesis, prevention, and novel therapies. Frontiers in Pediatrics 2018 ; 6 : 350.

9 Sánchez E, Nadal I, Donat E, et al. Reduced diversity and increased virulence-gene carriage in intestinal enterobacteria of coeliac children. BMC Gastroenterol 2008 ; 8 : 50.

10 De Palma G, Kamanova J, Cinova J, et al. Modulation of phenotypic and functional maturation of dendritic cells by intestinal bacteria and gliadin: relevance for celiac disease. J Leukoc Biol 2012 ; 92 : 1043-54.

11 Galipeau HJ, McCarville JL, Huebener S, et al. Intestinal microbiota modulates gluten-induced immunopathology in humanized mice. Am J Pathol 2015 ; 185 : 2969-82.

12 Caminero A, Galipeau HJ, McCarville JL, et al. Duodenal bacteria from patients with celiac disease and healthy subjects distinctly affect gluten breakdown and immunogenicity. Gastroenterology 2016 ; 151 : 670-83.

13 Laparra JM, Olivares M, Gallina O, et al. Bifidobacterium longum CECT 7347 modulates immune responses in a gliadin-induced enteropathy animal model. PLoS One 2012 ; 7 : e30744.

14 Olivares M, Castillejo G, Varea V, et al. Double-blind, randomised, placebo-controlled intervention trial to evaluate the effects of Bifidobacterium longum CECT 7347 in children with newly diagnosed coeliac disease. Br J Nutr 2014 ; 112 : 30-40.

15 Smecuol E, Hwang HJ, Sugai E, et al. Exploratory, randomized, double-blind, placebo-controlled study on the effects of Bifidobacterium infantis natren life start strain super strain in active celiac disease. J Clin Gastroenterol 2013 ; 47 : 139-47.

16 Pinto-Sánchez MI, Smecuol EC, Temprano MP, et al. Bifidobacterium infantis NLS super strain reduces the expression of α-defensin-5, a marker of innate immunity, in the mucosa of active celiac disease patients. J Clin Gastroenterol 2017 ; 51 : 814-7.

17 Caminero A, Nistal E, Herrán AR, et al. Differences in gluten metabolism among healthy volunteers, coeliac disease patients and first-degree relatives. Br J Nutr 2015 ; 114 : 1157-67.

Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
Article

Cancers digestifs et microbiote intestinal : de l’oncogenèse à la réponse aux traitements

Synthèse
Par le Pr. Iradj Sobhani
Gastro-entérologie Université Paris est Créteil (UPEC), CHU Henri-Mondor, Créteil, France

Devenus première cause de mortalité dans de nombreux pays occidentaux en raison de leur prévalence croissante, les cancers sont à présent davantage considérés comme des maladies émergentes dues à l’environnement que comme des pathologies induites par des anomalies génétiques constitutionnelles – finalement peu fréquentes. Un changement de paradigme favorisé par le développement des techniques de biologie moléculaire, par une meilleure compréhension des mécanismes et par l’identification de biomarqueurs associés. Depuis plusieurs décennies, les épidémiologistes établissent une relation entre oncogenèse et alimentation, ce qui tend à conférer au microbiote intestinal – donc à la dysbiose – une place centrale dans l’étude des cancers. Cette association trouve désormais une explication mécanistique, tant sur le plan énergétique qu’inflammatoire et immunitaire : favorisées par l’alimentation, certaines bactéries peuvent en particulier influencer la progression tumorale, impacter la réponse des tumeurs aux traitements ou les effets secondaires qui en résultent.

Les associations entre certains cancers et des dysbioses (mécanismes par lesquels le microbiote intestinal peut promouvoir un cancer chez l’homme) sont résumées dans le tableau 1. Il en va de même pour l’inventaire des biomarqueurs à des fins diagnostiques et/ou thérapeutiques, en particulier dans le domaine des immunothérapies anti cancéreuses.

Comme pour l’obésité et le diabète, il s’agit d’identifier les marqueurs bactériens à visée diagnostique, mais également d’étudier les fonctions des bactéries pour mieux comprendre l’impact de l’environnement sur les pathologies.

Chez les patients obèses par exemple, une alimentation déséquilibrée sur le plan quantitatif et qualitatif peut rapidement affecter le microbiote intestinal ainsi que les fonctions bactériennes [1]. La caractérisation de leur microbiote intestinal peut faire émerger une dysbiose spécifique et permettre l’évaluation des probabilités de succès ou d’échec d’un régime alimentaire correctif. De nombreuses maladies émergentes, comme les cancers, ont connu des développements similaires et bénéficient de nouvelles pistes de recherche physiopathologiques (Figure 1).

Image
Image

Oesophage-estomac 

Dans des conditions physiologiques, le microbiote de l’oesophage se rapproche de celui de la cavité orale. Les Firmicutes, Bacteroidetes, Actinobacteria, Proteobacteria, Fusobacteria sont les plus représentés et le genre Streptococcus est dominant au niveau oesophagien. En cas de reflux gastro-oesophagiens (RGO) ou d’un endobrachyoesophage (EBO), conditions favorisant les situations prénéoplasiques, on note un microbiote plus proche de celui de l’estomac, caractérisé par l’abondance de Bacteroidetes, Proteobacteria et Fusobacterium. Helicobacter pylori, bactérie identifiée comme un co-facteur des néoplasies gastriques (cancer et lymphome-MALT), semble paradoxalement protectrice contre les adénocarcinomes oesophagiens, en émergence dans les pays occidentaux. En réalité, différentes espèces bactériennes, autres que H. pylori, telles que Pasteurella stomatis, Dialister pneumosintes, Slakia exigua, Parvimonas micra et Streptococcus anginosus, jouent un rôle de promotion tumorale gastrique. Des travaux récents ont suggéré que les Enterobacteriaceae, en particulier le Ruminococcus pourraient jouer un rôle important dans l’échappement au contrôle immunitaire antitumoral des adénocarcinomes gastriques et oesophagiens [2].

Cancer colorectal (ccr) et modèle d’étude d’échappement tumoral à la réponse immune

Depuis les premières descriptions d’une dysbiose colique liée au CCR [3, 4], l’hypothèse que la flore orale participerait à la dysbiose impliquée dans la genèse du CCR est réactualisée à la lumière des travaux originaux sur la capacité de certaines bactéries orales à franchir le filtre gastrique et à participer à la dysbiose colique [5]. Les déséquilibres bactériens se font souvent au détriment des bactéries bénéfiques telles Bifidobacteria et Lactobacilli, qui contribuent au maintien de la réponse immune [2]. Ces bactéries ne pouvant plus assurer le contrepoids des bactéries pro-inflammatoires, s’installe alors une inflammation chronique asymptomatique de la muqueuse colique, connue depuis fort longtemps pour favoriser le processus carcinogène. Désormais, l’actuel régime alimentaire de type occidental (trop riche en protéines animales et en sucres) est réputé favoriser les bactéries pro-inflammatoires au détriment de bactéries anti- inflammatoires. Au contraire, un régime de type méditerranéen (riche en fibres végétales) en limite les méfaits [6]. En l’absence d’un apport suffisant en fibres, les bactéries recrutées par la surconsommation de protéines ou de graisses animales érodent le mucus, pris comme source de fibres, et exposent l’épithélium intestinal à des bactéries potentiellement virulentes (Figure 1). À l’échelle cellulaire, les grandes voies biologiques telles la voie Wnt et la voie commune NF-kB (nuclear factorkappa B), à l’origine respectivement du renouvellement cellulaire et d’une plus grande production de cytokines pro-inflammatoires, sont stimulées par cette alimentation [6]. On peut associer à ce phénomène celui d’une orientation de la réponse immune vers la tolérance due à la surabondance d’autres bactéries comme Parvimonas micra et Streptococcus fragilis [7]. Chez l’animal, Bacteroides fragilis ou Escherichia coli, qui font partie du panel des bactéries surabondantes en cas de CCR à un stade avancé (III ou IV de TNM), entretiennent la stimulation inflammatoire dans la muqueuse colique et favorisent la survenue de tumeurs [8].

Carcinome hépatocellulaire (chc)

Les tumeurs primitives du foie surviennent après un processus chronique incluant la cirrhose, elle-même résultat d’une infection virale induite par le VHB ou le VHC. Des mécanismes épigénétiques secondaires à l’action des micro-organismes entraînent une extinction de certains gènes-clés tels que p16 (INK4A), glutathione S-transférase P 1 (GSTP1), CDH1 (E-cadherine), Ras association domain containing protein 1 (RASSF1A), p21 (WAF1/CIP1) tous hyperméthylés par le VHB ainsi que certains gènes suppresseurs de cytokines 1 (SOCS- 1), et celui de STAT1, hyperméthylés par le VHC. Ces gènes retardent la survenue du cancer mais l’hyperméthylation inhibe leur expression. Des bactéries peuvent intervenir comme facteurs de promotion dans ces processus : Helicobacter hepaticus augmente le risque carcinogène, soit directement par l’activation de la voie Wnt et celle de NF-kB, soit comme facilitateur du processus VHC-induit. De même que certains éléments de l’environnement (virus, polluants chimiques, etc.), certaines entérobactéries, comme E. coli, sont identifiées comme co-facteurs d’activation du processus carcinogène. Dans le domaine du métabolisme, le déséquilibre Firmicutes/ Bacteroidetes, connu comme facteur de risque d’obésité, favorise le risque de CHC par la baisse des bactéries protectrices telles que Lactobacillus, Bifidobacterium, Parabacteroides et Oscillibacter [9, 10].

Cancer du pancréas

Chez les patients atteints de cancer du pancréas, des densités élevées d’Enterobacteriaceae, Pseudomonadaceae, Moraxellaceae et Enterococcaceae sont détectées au niveau du tissu tumoral ; celles d’Acinetobacter, Aquabacterium, Oceanobacillus, Rahnella, Massilia, Delftia, Deinococcus, et Sphingobium sont élevées au niveau luminal duodénal. Comme dans le CCR, la dysbiose liée à ce cancer inclut par ailleurs la modification de la flore orale, caractérisée par une surabondance de Porphyromonas gingivalis ou la sous-abondance de Neisseria elongate et Streptococcus mitis. De quoi souligner, une fois encore, l’association entre dysbiose bactérienne intestinale et cancer digestif. Sur le plan thérapeutique, il est important de noter que les Gammaproteobacteria peuvent augmenter la résistance à la gemcitabine, traitement de référence des cancers du pancréas.

Réponse immune antitumorale et dysbiose

Les animaux axéniques (dépourvus de germes) développent moins de tumeurs, sans doute en raison d’une immunotolérance et d’une moindre activité inflammatoire réactionelle, ces derniers pouvant s’expliquer par l’absence d’un microbiote physiologique. Le microbiote peut contribuer à la carcinogénèse par différents mécanismes : tout d’abord, l’activation inflammatoire par dysbiose et réorientation du système immunitaire ; la production de génotoxines (colibactine, fragilysine) et de facteurs de virulence par les bactéries capables d’altérer directement l’ADN de l’hôte ; ou encore l’induction d’un stress oxydatif par la production de réactifs de l’oxygène (ROS) ; enfin la production de métabolites secondaires par les bactéries (acides biliaires secondaires…). Dans le modèle du côlon, par exemple, on note 4 sous-types distincts correspondant à des voies métaboliques, immunitaires ou inflammatoires différentes [11]. Dans le sous-type de CCR infiltré par les lymphocytes T (LT), on note la diminution de la capacité des LT à exprimer des cytokines ou à attaquer les cellules cibles en raison d’une stimulation persistante par des antigènes tumoraux. Ce phénomène est décrit comme un épuisement de LT. C’est le mécanisme le plus courant d’évasion immunitaire. Quel que soit le recrutement lymphocytaire initial, cytotoxique ou facilitateur, la tumeur continuera à se développer [9]. Des cellules lymphocytaires T régulatrices (LT-reg) faciliteront l’effet immunosuppresseur par le biais de la production de facteurs tel que TGF-β. Les LT-reg seront préférentiellement recrutés dans la phase d’épuisement. D’ailleurs, la densité intra tumorale des LT-reg est un marqueur de pronostic défavorable. En produisant des cytokines immunosuppressives (IL-10 et TGF-β), les cellules T-reg réduisent l’action spécifique des LT cytotoxiques dirigée normalement contre la cellule tumorale. En particulier, ils augmentent la molécule inhibitrice associée à l’expression de la protéine 4 (CTLA-4 ou CD 152) de ces lymphocytes. Cette protéine est devenue une cible des immunothérapies modernes. Les LT-regs agissent à l’aide des LTh17 ainsi qu’avec STAT3 (Signal Transducer and Activator of Transcription 3), impliqués dans la cancérogenèse de divers organes. Le LTh17 produit des cytokines pro-inflammatoires (IL-17 et l’IL-23) qui favorisent la croissance tumorale en augmentant la production de cytokines Th1 et celle d’un ligand de chimiokine (motif C-X-C) 9 et 10 (CXCL9 et CXCL10). Les cellules Th17 ont des caractéristiques similaires aux cellules souches et sont capables de se renouveler. L’environnement cytokinique présent au site tumoral influence les différents modèles d’expression des cellules Th17 : dans les cancers colorectaux, hépatocellulaires et pancréatiques, l’infiltration de LTh17 est associée à un mauvais pronostic car il favorise la tolérance immunitaire à la tumeur. La dysbiose adhérente aux muqueuses, module l’expression des IL17, IL-23, STAT3.

Microbiote et traitement des cancers

La capacité du microbiote intestinal à moduler la réponse à la chimiothérapie anticancéreuse et à l’immunothérapie a été notée chez la souris et chez l’homme. Les carcinomes du poumon, du rein, et le mélanome ont fait l’objet d’études cliniques. Cette influence n’est jamais attribuable à une espèce seule : dans tous les cas, il s’agit de l’impact d’une communauté microbienne intestinale dans son ensemble sur l’immunité ou une fonction partagée par différentes bactéries. Ces dernières influencent les effets secondaires ou la résistance thérapeutique (Figure 2). À titre d’exemple, l’activité cytidine-désaminase des protéobactéries, en particulier de Mycoplasma hyorhinis, métabolise la gemcitabine et en réduit l’efficacité. De même, le cyclophosphamide présente des effets antitumoraux variables selon la dose administrée ; des bactéries à gram-positif (dont Enterococcus hirae) et à gram-négatif (dont Barnesiella intestinihominis) en modulent l’efficacité [12]. Les immunothérapies antinéoplasiques ont été utilisées avec succès dans le mélanome malin. Il s’agit des thérapeutiques les plus prometteuses qui agissent sur les molécules du point de contrôle immunitaire comme la cible PD-1 et CTLA-4. D’abord, il a été constaté que chez des patients atteints d’un cancer métastatique rénal ou pulmonaire, l’utilisation d’un traitement antibiotique pourrait moduler l’activité des immunothérapies anti-PD-1 ou anti-PD-L1 [13]. Ensuite, une large étude américaine menée dans le mélanome malin métastatique traité par immunothérapie a révélé que la bonne réponse au traitement (survie sans progression et survie globale plus grande) dépendait de la composition microbienne colique : le transfert de microbiote intestinal des patients dans un modèle murin montrait que la dysbiose intestinale était bien à l’origine de la variabilité de la réponse à l’immunothérapie de type anti-PD-1 [14, 15]. Ces données sont à rapprocher de celles sur les polymorphismes de TLR4, liés à la variabilité de la réponse à l’immunothérapie. Les TLR (toll-like receptors) sont transmembranaires ou cytosoliques ; ils font partie de la grande famille des récepteurs de l’immunité innée PRR (pattern recognition receptors), exprimés par les cellules épithéliales et les cellules immunitaires au niveau de l’intestin. La liaison d’un TLR avec le ligand microbien entraîne une cascade de signalisation intracellulaire aboutissant généralement à une réponse de type inflammatoire par activation de NF-kB. Le statut immunitaire de l’hôte s’avère être le facteur principal dans la réponse à tous les traitements antinéoplasiques, directement et par des altérations du microbiote intestinal. De plus, les autres volets thérapeutiques comme la radiothérapie et la chirurgie sont également impactés par le microbiote : les souris axéniques présentent moins de toxicité aux radiations ionisantes que les souris conventionnelles ; la cicatrisation postopératoire chez les patients opérés d’un cancer du côlon dépend du type de dysbiose.

Image

Conclusion

La composition microbienne colique est influencée par les facteurs de l’environnement et peut influencer la genèse et la progression des tumeurs malignes par la voie du métabolisme, de l’inflammation ou de l’immunité. La résistance aux traitements anti tumoraux ainsi que l’apparition de certains effets secondaires de ces traitements font l’objet d’études. Il est probable que la modulation du microbiote intestinal devienne à l’avenir un moyen d’optimiser les traitements antitumoraux.

Sources

1 David LA, Maurice CF, Carmody RN, et al. Diet rapidly and reproducibly alters the human gut microbiome. Nature 2014 ; 505 : 559–63.

2 Cianci R, Franza L, Schinzari G, et al. The interplay between immunity and microbiota at intestinal immunological niche: The case of cancer. Int J Mol Sci 2019 ; 20 : 501.

3 Sobhani I, Tap J, Roudot-Thoraval F, et al. Microbial dysbiosis in colorectal cancer patients. Plos One 2011 ; 6 : e16393.

4 Zeller G, Tap J, Voigt AY, et al. Potential of fecal microbiota for early-stage detection of colorectal cancer. Mol Syst Biol 2014 ; 10 : 766.

5 Prodan A, Levin E, Nieuwdorp M. Does disease start in the mouth, the gut or both? eLife 2019 ; 8: e45931.

6 O’Keefe SJ, Li JV, Lahti L., et al. Fat, fibre and cancer risk in African Americans and rural Africans. Nat Commun 2015 ; 6 : 6342.

7 Purcell RV, Visnovska M, Biggs PJ, et al. Distinct gut microbiome patterns associate with consensus molecular subtypes of colorectal cancer. Sci Rep 2017 ; 7: 11590.

8 Tjalsma H, Boleij A, Marchesi JR, Dutilh BE. A bacterial driver-passenger model for colorectal cancer: beyond the usual suspects. Nat Rev Microbiol 2012 ;10 : 575–582.

9 Tilg G, Schmiderer A, Djanani A. Gut microbiome-immune crosstalk affects progression of cancer. Transl Gastroenterol Hepatol 2018 ; 3 : 34.

10 Guinney J, Dienstmann R, Wang X, et al. The consensus molecular subtypes of colorectal cancer. Nat Med 2015 ; 21 : 1350-6.

11 Sivan A, Corrales L, Hubert N, et al. Commensal Bifidobacterium promotes antitumor immunity and facilitates anti–PD-L1 efficacy. Science 2015 ; 350 : 1084–9.

12 Alexander J, Wilson ID, Teare J, et al. Gut microbiota modulation of chemotherapy efficacy and toxicity. Nat Rev Gastroenterol Hepatol 2017 ; 14 : 356–65.

13 Routy B, Le Chatelier E, Derosa L, et al. Gut microbiome influences efficacy of PD-1-based immunotherapy against epithelial tumors. Science 2018 ; 359 : 91-7.

14 Matson V, Fessler J, Bao R, et al. The commensal microbiome is associated with anti-PD-1 efficacy in metastatic melanoma patients. Science 2018 ; 359 : 104-8.

15 Gopalakrishnan V, Spencer C, Nezi L, et al. Gut microbiome modulates response to anti-PD-1 immunotherapy in melanoma patients. Science 2018 ; 359 : 97-103.

Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
Article

Microbiome intestinal et maladies inflammatoires chroniques

Revue de presse 

Par le Pr Markku Voutilainen
Faculté de médecine de l’Université de Turku ; gastro-entérologie, Hôpital universitaire de Turku, Finlande

3D illustration of Pasteurella multocida bacteria. This is a Gram-negative, non-motile, penicillin-sensitive coccobacillus belonging to the Pasteurellaceae family.

Les auteurs ont analysé les altérations du microbiote intestinal dans les maladies inflammatoires chroniques [1]. Les maladies inflammatoires chroniques de l’intestin (MICI), la polyarthrite rhumatoïde (PR), la spondylarthrite ankylosante (SA), le psoriasis/rhumatisme psoriasique (Ps/ RP) et le lupus érythémateux disséminé (LED) sont les principales maladies inflammatoires chroniques à médiation immunitaire (IMID), et touchent 5 à 8 % de la population mondiale. Chez les personnes génétiquement prédisposées, ce sont des stimuli environnementaux qui induisent une réponse immunitaire pathologique, potentiellement déclenchée par le microbiote intestinal.

Incurable et associée à une faible mortalité, une MICI (dans les pays occidentaux, essentiellement la rectocolite hémorragique et la maladie de Crohn) est diagnostiquée chez des sujets souvent jeunes, d’où l’augmentation exponentielle de sa prévalence partout dans le monde. Les patients concernés présentent un risque accru de souffrir d’autres IMID, telles que le Ps, la PR, la SA et la cholangite sclérosante primitive. Ils ont par ailleurs davantage de Proteobacteria (ex. bactéries Escherichia coliadhérentes et invasives), de Pasteurellaceae, de Veillonellaceae, de Fusobacterium et de Ruminococcus gnavus, et moins de Clostridium des groupes IV et XIVa, de Bacteroides, de Sutterella, de Roseburia, de Bifidobacterium et de Faecalibacterium prausnitzii. Sur les plans fongique et viral respectivement, les Saccharomyces cerevisiae sont moins nombreux et les Caudovirales plus abondants.

Comme les patients atteints de MICI, ceux souffrant de sclérose en plaques ont une plus faible abondance de Faecalibacterium, ce qui suggère qu’il pourrait s’agir d’un signe d’inflammation systémique. La PR débute probablement au niveau de la muqueuse buccale ou intestinale, et l’auto-immunité dirigée contre les protéines citrullinées est un phénomène typique. Chez les patients atteints de PR, on a également rapporté une réduction de Faecalibacterium et une augmentation d’Actinobacteriamais on ignore si la dysbiose intestinale est une cause ou un effet de la PR. Les infections virales par le parvovirus B 19 et l’hépatite C sont associées à un risque accru de PR. Le profil du microbiote intestinal des patients atteints de SA, de Ps/RP et de LED serait également altéré.

Dans l’intestin, les bactéries protectrices produisent des métabolites bénéfiques comme le butyrate et le polysaccharide A, stimulant la production de lymphocytes T régulateurs. Une abondance plus faible de ces bactéries est typique des IMID et conduit à une diminution de la tolérance immunitaire. Une dysbiose et une plus grande perméabilité intestinale pourraient stimuler les cellules dendritiques au niveau de la muqueuse intestinale, ce qui entraîne la production de cytokines inflammatoires. L’augmentation des métabolites xénobiotiques (le méthane par exemple) stimule les lymphocytes TH 17 qui jouent un rôle important dans la pathogenèse des IMID. La stimulation des protéases pourrait générer la production d’auto-antigènes typiques des IMID. La diminution des bactéries productrices de butyrate est typique des MICI et autres IMID.

L’alimentation influence le profil du microbiote intestinal à long terme, mais on relève également des modifications à très court terme. Le passage d’une alimentation animale à une alimentation végétale modifie le microbiote intestinal en l’espace d’une seule journée. Les composantes alimentaires étudiées sont notamment les protéines animales, de lactosérum et de pois, une forte/faible teneur en graisses, une forte teneur en graisses saturées/insaturées, le lactose, les édulcorants artificiels, les fibres, l’amidon résistant, les probiotiques et les polyphénols. Les régimes méditerranéen et végétarien augmentent la diversité bactérienne de l’intestin, alors que les régimes occidental et sans gluten pourraient la réduire. La diminution de la diversité bactérienne et la perte de bactéries productrices d’acides gras à chaîne courte sont associées aux MICI.

Les profils dysbiotiques sont communs aux IMID en général, mais certains soustypes de dysbiose sont spécifiques à une maladie. Un groupe de métabolites microbiens produits par diverses compositions microbiennes pourrait être impliqué dans la pathogenèse des IMID. Le profil fonctionnel du microbiome pourrait être le facteur décisif dans la pathogenèse de ces maladies.

Les MICI, les autres IMID et les maladies métaboliques sont associées à un mode de vie occidentalisé (régime alimentaire, meilleures conditions sanitaires). Les pratiques en matière d’hygiène et l’utilisation des antibiotiques pourraient induire des changements défavorables du microbiote, qui pourraient être à l’origine de troubles de la maturation et de la fonction du système immunitaire. Les probiotiques et les antibiotiques ne sont pas des traitements efficaces pour les MICI. De plus, la transplantation de microbiote fécal ne permet d’obtenir de rémission que chez un tiers des patients atteints de rectocolite hémorragique. Les auteurs concluent que la dysbiose pourrait ne pas être spécifique des MICI mais qu’elle modulerait globalement le système immunitaire. Les individus pourraient être génétiquement programmés pour répondre aux modifications immunitaires dans différents systèmes d’organes conduisant à différentes IMID.

Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
Revue de presse