¿Está suficientemente perfeccionado el trasplante fecal?

De vuelta del congreso

Por El Pr Danny De Looze
Gastroenterología, Hospital Universitario de Gante, Bélgica
Photo : Fecal transplantation - ready for prime time?

Aunque aún no hayamos desvelado todos los secretos y misterios de la microbiota intestinal, el tratamiento de las enfermedades gastrointestinales mediante la modulación de la microbiota suscita muchas esperanzas. El trasplante de microbiota fecal se perfila como el Santo Grial. ¿Pero lo es realmente? Durante el congreso UE GW 2018 de Viena, se dedicaron numerosas ponencias a este tema.

El donante ideal

Incluso aunque a día de hoy nadie sabe verdaderamente cómo definir con pre- cisión una microbiota intestinal “normal” (“eubiosis”), sabemos que una gran diversidad microbiana y una riqueza genética tienen una importancia capital en el equilibrio huésped-microbiota. El donante ideal debe seleccionarse por consiguiente según su riqueza bacteriana. Marie Joossen (Lovaina, Bélgica) propuso un marcador para esta característica, y señaló que la presencia de Blastocystis hominis estaba correlacionada con una mayor riqueza microbiana [1]. Esta observación –si otros la confirman– podría cambiar nuestra práctica, que consiste actualmente en separar los portadores de esta especie comensal de los donantes potenciales. El enriquecimiento de la microbiota del donante con prebióticos o la utilización de múltiples donantes también podrían (en teoría) garantizar una mayor diversidad inicial de las heces que hay que trasplantar. Este fenómeno también ha sido observado por Karakan et al. (Ankara, Turquía), quienes realizaron un estudio abierto en la rectocolitis hemorrágica con una tasa global de respuesta completa del 32%, particularmente influida por una importante diversidad bacteriana en la materia fecal analizada.

El nuevo oro negro

El respeto estricto de las recomendaciones actuales en materia de selección de donantes de materia fecal obliga a rechazar a la mayoría de los donantes. Terveer et al. (Leiden, Países Bajos) informan que solo conviene in fine el 3,5% de los donantes potenciales [2]. Las principales razones de rechazo son las siguientes: edad superior a 50 años, IMC elevado y portador de gérmenes no patógenos (Blastocystis hominis, Dientamoeba fragilis) y de organismos multirresistentes (OMR) [2].

Clostridium Difficile 

La principal indicación del trasplante de microbiota fecal sigue siendo la infección recurrente por Clostridium difficile. En una serie retrospectiva de 282 pacientes afectados por una infección por C. difficile, Ianiro et al. (Roma, Italia) compararon un tratamiento antibiótico con el trasplante fecal; observaron que el trasplante conllevaba un acortamiento significativo de la duración de hospitalización y una disminución significativa de la mortalidad, en particular causada por septicemia.

Antonio Gasbarrini (Roma, Italia) considera que ha llegado el momento de promover el trasplante de microbiota fecal como tratamiento de primera elección en la infección por C. difficile.

Ampliar el alcance del tmf

A. Gasbarrini propuso una revisión interesante de las indicaciones prometedoras del trasplante de microbiota fecal. Se ha demostrado que los trasplantes fecales restauran más la microbiota humana que los probióticos tras una disbiosis inducida por antibióticos en humanos. Se ha hecho la misma observación después de una disbiosis inducida por quimioterapia y antibióticos en el marco de un injerto de células madre hematopoyéticas y en pacientes afectados por cirrosis hepática. Los modelos con ratones muestran incluso una restauración de la función inmunitaria y de la integridad intestinal tras un daño intestinal inducido por quimioterapia. Por ello, A. Gasbarrini aboga por una conservación preventiva de las heces en previsión de un trasplante autólogo de microbiota fecal posterior, por ejemplo después de una antibioterapia o de un injerto de médula ósea. Hay que esperar a obtener pruebas in vivo en el marco de estudios clínicos antes de poder aplicar esta estrategia, que perfectamente podría ver la luz en el futuro. Sea como fuere, pa- rece bastante lógico que la recogida de las propias heces del paciente con vistas a un trasplante autólogo posterior sea el camino a seguir.

Rectocolitis hemorrágica

En tres de cuatro estudios aleatorizados y controlados publicados, el trasplante de microbiota fecal fue superior al placebo en pacientes afectados por rectocolitis hemorrágica (RCH) refractaria [3]. Sin embargo, el porcentaje medio de remisión observado en estos estudios fue solamente del 25 al 30%, y Rainer et al. (Graz, Austria) presentaron un estudio con porcentajes similares de remisión completa, demostrando la ausencia de valor añadido de la administración de heces frescas en estos pacientes. Sin embargo, hasta el momento no existía ningún protocolo estandarizado de trasplante fecal en la RCH. Unos porcentajes de remisión del 30% parecen bajos, pero hay que ver las cosas con perspectiva: es el mismo porcentaje de remisión que se obtiene con biomedicamentos, más costosos y ampliamente utilizados [...]. La importancia de la microbiota cólica en la RCH ha sido demostrada por Herrera-de Guise et al. (Barcelona, España), quienes han mostrado que los pacientes en remisión estable prolongada (desde hace más de 5 años) presentan una abundancia de Akkermansia muciniphila y Faecalibacterium prausnitzii similar a la observada en los pacientes control sanos. Estos au- tores también sugieren que deberíamos reflexionar sobre un cambio de paradigma en el tratamiento de la RCH: nuestro objetivo terapéutico quizás ya no debería ser la inmunosupresión, sino la búsqueda de un equilibrio de la microbiota.

Síndrome del intestino irritable

El síndrome del intestino irritable (SII) seguramente es la enfermedad para la cual las expectativas de curación por tras- plante fecal son más elevadas, tanto por parte de los pacientes como de los profesionales de la salud. Sin embargo, los resultados contradictorios de varios estudios aleatorizados y controlados [4, 5] no apuntan actualmente en la dirección de un uso generalizado de este tratamiento para el SII. La disbiosis intestinal está presente en el SII pero no parece haber una relación de causalidad clara entre estas modificaciones microbianas y los síntomas. Halkjaer et al. (Copenhague, Dina- marca) realizaron un estudio aleatorizado y controlado en 52 pacientes adultos; se observó un aumento de la biodiversidad (comparable a la de los donantes) en los pacientes del grupo de tratamiento activo [5]. Desgraciadamente, el grupo placebo obtuvo un resultado significativamente mejor a los 3 y 6 meses que el que recibió cápsulas fecales [5]. En una pequeña población de 16 pacientes afectados por el SII, Holster et al. (Orebro, Suecia) no pudieron demostrar la eficacia del trasplante fecal frente al placebo. Además, estudiaron la sensibilidad rectal por barostato y no demostraron ninguna diferencia entre los grupos activo y control, por lo que concluyeron que la modificación de la microbiota no contribuye a una hipersensibilidad visceral en el SII.

Cápsulas de bacterias

IIaniro et al. realizaron con éxito un estudio abierto en la infección por C. difficile con una suspensión de microbiota sintética (solamente 10 pacientes). Khanna et al. (Rochester, Estados Unidos) también demostraron la eficacia de un producto restaurador de la microbiota administrado por vía oral, liofilizado y no congelado (RBX7455) en la prevención de la infección recurrente por C. difficile en un estudio abierto de fase I. Estos resultados son prometedores y deben ser confirmados en ensayos aleatorizados a gran escala.

Conclusión

El congreso UE GW 2018 ha permitido aprender más sobre los criterios de selección de los donantes así como sobre las nuevas y prometedoras indicaciones del trasplante fecal que podrían aparecen en los años venideros. A día de hoy, la infección recurrente por Clostridium difficile sigue siendo la única indicación validada para este tratamiento, que aún no está lo suficientemente perfeccionado para otras afecciones.

Explique el trasplante fecal a sus pacientes con este contenido específico: 
Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
De vuelta del congreso

Hábitos alimenticios desde el nacimiento hasta los 12 meses: ¿qué impacto tienen sobre la microbiota intestinal y el riesgo de sobrepeso?

Artículo comentado - Niños

Por el Pr. Emmanuel Mas
Gastroenterología y nutricíon, Hospital de Niños, Toulouse, Francia

Photo : Feeding practices from birth to 12 months: impact on the gut micro- biota and the risk of being overweight

Comentario al artículo original de Forbes et al. (JAMA Pediatr 2018)

El objetivo era definir la relación entre las modalidades de alimentación, la microbiota y el sobrepeso en lactantes y niños pequeños. En el estudio participaron 1087 lactantes; la microbiota fecal se analizó en M3-M4 y M12 mediante la secuenciación de 16S rRNA. En M3, los lactantes alimentados exclusivamente con leche maternizada artificial tenían un mayor riesgo de sobrepeso. En M12, los perfiles fueron significativamente diferentes según las prácticas de alimentación en M6: la suplementación con leche maternizada en lactantes parcialmente amamantados se asoció con un perfil similar al de los lactantes no amamantados, a diferencia de la diversificación dietética sin suplementación previa. La lactancia materna podría proteger contra el sobrepeso mediante la modulación de la microbiota; tenga en cuenta que la microbiota difería ligeramente después de una breve exposición a leche maternizada en la sala de maternidad. La alimentación y la suplementación con leche maternizada parecen estar asociadas con el sobrepeso, a diferencia de la utilización de otros alimentos complementarios

¿Qué sabemos sobre este tema?

Desde el nacimiento, hay ciertos factores que influyen en la aparición posterior de una obesidad. La lactancia materna tiene un efecto protector, en parte gracias a un contenido más bajo en proteínas. También se debe tener en cuenta la microbiota intestinal (MI), porque influye en la absorción y en el metabolismo energético. La MI se constituye durante los 2-3 primeros años de vida, y el modo de alimentación del recién nacido (lactancia materna frente a leche maternizada artificial) es uno de los factores principales de modulación de la MI. En adultos obesos, la diversidad de la MI disminuye y la proporción Firmicutes/ Bacteroidetes aumenta.

¿Cuáles son los principales resultados que aporta este estudio?

Este estudio se basa en los datos de la cohorte de recién nacidos denominada CHILD (Canadian Healthy Infant Longitudinal Development); se incluyeron 1087 niños de esta cohorte con análisis de la microbiota fecal a los 3-4 meses (n = 996),oalos12meses(n=821)yaestas 2 edades (n = 730). Las madres rellenaron cuestionarios sobre las formas de alimentación a los 3 y 6 meses, lo que permitió distinguir diferentes grupos en función de la lactancia materna (Tabla 1). El índice de parto vaginal era del 74,2%; el 39,8% de las madres tenía sobrepeso u obesidad. El índice de lactancia exclusiva era del 53,8% a los 3meses y del 17,6% a los 6 meses.

A los 3 meses, la lactancia exclusiva protegía del riesgo de sobrepeso (definido por una relación peso medido/peso esperado para la altura > 85a percentil) a los 12 meses respecto de la toma exclusiva de leche maternizada: un 19,2% frente a un 33,3%, sin efecto significativo del ajuste (Tabla 1). A los 6 meses, la toma de leche de maternizada como complemento de la lactancia aumentaba este riesgo de sobrepeso a los 12 meses, lo cual no ocurría en el caso de los alimentos sólidos. Por último, una lactancia prolongada tenía un efecto protector.

Como se esperaba, a los 3-4 meses se encuentra una riqueza y una diversidad de la MI diferentes en función de la alimenta- ción de los lactantes; existe una estructura significativamente diferente de la MI entre los lactantes alimentados con lactancia exclusiva y los grupos de lactantes no amamantados (F i g u r a 1 ). Al aumentar la lactancia exclusiva, los autores encontraron una abundancia relativa aumentada de Bifidobacteriaceae y de Enterobacteriaceae y una disminución de Lachnospiraceae, Veillonellaceae y Ruminococcaceae.

La MI a los 12 meses era más homogénea, pero seguía habiendo diferencias en función de la forma de alimentación a los 6 meses: la riqueza era mayor en los lactantes que recibían, al menos en parte, leche maternizada; la abundancia relativa de Actinobacteria y de Proteobacteria era más elevada en el grupo de lactancia exclu- siva y más baja en el grupo de no lactancia.

El sobrepeso o el riesgo de sobrepeso a los 12 meses aumentaba si la MI había sido más rica a los 3-4 meses, en concreto en Lachnospiraceae con una abundancia relativa media del 5,9% (sobrepeso), del 4,7% (riesgo de sobrepeso) y del 1,9% (peso normal) (p = 0,01) (Figura 2).

Imagen

Puntos clave

  • La lactancia materna protege frente al sobrepeso al año de edad.

  • Este efecto está mediado por la constitución de la microbiota intestinal.

  • Es necesario realizar estudios para investigar si este efecto persiste a más largo plazo.

¿Cuáles son las consecuencias en la práctica?

Este estudio demuestra por un lado el beneficio de la lactancia materna sobre el sobrepeso al año de edad y, por otro lado, que este beneficio está vinculado a una modulación de la MI.

Además, es importante promover una lactancia materna exclusiva desde el nacimiento, limitando la suplementación con leche maternizada artificial durante la maternidad. Por último, este beneficio aumenta con una lactancia materna prolongada. La introducción de alimentos sólidos no tiene impacto negativo mientras que la toma complementaria de leche maternizada para lactantes sí lo tiene.

Imagen
Imagen

Conclusión

La lactancia materna, sobre todo prolongada, tiene un efecto protector frente al sobrepeso al año de edad. Incluso aunque se utilicen como suplemento, las leches maternizadas artificiales conllevan un aumento de la riqueza y de la diversidad de la MI a los 3-4 meses, en concreto de Lachnospiraceae, y un mayor riesgo de sobrepeso a los 12 meses.

Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
Artículo comentado

Restablecimiento de la microbiota intestinal en adultos con buena salud tras la exposición a un antibiótico

Artículo comentado - Adulto

Por el Pr. Harry Sokol
Gastroenterología y nutrición, Hospital Saint-Antoine, París, Francia

Comentario al artículo original de Palleja et al. (Nature Microbiol 2018)

Para minimizar el impacto de los antibióticos, los microorganismos intestinales tienen e intercambian genes de resistencia a los antibióticos, y este conjunto recibe el nombre de resistoma. Utilizando un método de secuenciación metagenómica shotgun, los autores analizaron la erradicación parcial de la microbiota intestinal y su recuperación en 12 hombres sanos durante un período de 6 meses tras una intervención de 4 días con un cóctel de 3 antibióticos de último recurso: meropenem, gentamicina y vancomicina. Los cambios iniciales consistieron en la proliferación de enterobacterias y otros patobiontes, como Enterococcus faecalis y Fusobacterium nucleatum, y la desaparición de bacterias del genéro Bifidobacterium así como las productoras de butiratos. La microbiota intestinal de los sujetos estudiados retornó a un estado cercano al inicial en 1,5 meses, aunque 9 especies, que estaban presentes en todos los sujetos antes del tratamiento, permanecieron indetectables en la mayoría de los sujetos después de 180 días. Las especies portadoras de genes de resistencia a β-lactaminas fueron seleccionadas positivamente durante y después de la intervención. La presencia de genes de resistencia a los glicopéptidos o aminoglucósidos aumentó las posibilidades de colonización de novo. Los cambios en la composición de la microbiota inducida por una intervención antibiótica in vivo fueron coincidentes con los resultados obtenidos en los ensayos in vitro. A pesar de un pequeño pero duradero efecto después de la exposición a los antibióticos, la microbiota intestinal de los adultos jóvenes sanos se recupera tras una intervención antibiótica de amplio espectro a corto plazo, y la presencia de genes de resistencia a los antibióticos modula el proceso de recuperación.

¿Qué sabemos sobre este tema?

La microbiota intestinal humana forma un ecosistema complejo y equilibrado. Las perturbaciones de este ecosistema pueden desempeñar un papel en la aparición de infecciones, de obesidad, de diabetes y de patologías inflamatorias y neurológicas. Se estima que se puede atribuir a los antibióticos un aumento de la esperanza de vida de 2 a 10 años. Sin embargo, la exposición precoz a los antibióticos también ha sido asociada a efectos metabólicos, inflamatorios y neurológicos nocivos, tanto en modelos con animales como en humanos. Cuando las comunidades microbianas se exponen a antibióticos, reaccionan no solo modificando su composición, sino también evolucionando, optimizando y difundiendo los genes de resistencia a los antibióticos (GRA), formando colectivamente el resistoma [2]. La microbiota intestinal humana se considera un reservorio para los GRA, donde sus miembros intercambian estos genes, y propagan así la resistencia [3]. El desarrollo y la difusión de la resistencia microbiana a los antibióticos es un grave problema de salud pública. Solo algunos estudios han estudiado los efectos de antibióticos particulares en los ecosistemas intestinales frente a los resistomas asociados. Varios estudios previos han demostrado que la administración de antibióticos inducía a una disminución de la diversidad y a un aumento de la transferencia de GRA [4, 5]. Sin embargo, aún no se han estudiado los efectos de una combinación de antibióticos sobre la microbiota y la función de los GRA en la persistencia microbiana intestinal. En el presente estudio, 12 hombres con buena salud (de entre 18 y 40 años de edad) recibieron un cóctel de antibióticos de último recurso (vancomicina, gentamicina y meropenem), y los autores estudiaron los efectos sobre la microbiota intestinal utilizando un enfoque por secuenciación shotgun sobre muestras fecales extraídas previamente y en cuatro momentos diferentes durante un periodo de seis meses después del tratamiento.

Imagen

Los antibióticos, elemento clave del arsenal terapéutico moderno, han salvado millones de vidas. Sin embargo, su uso excesivo y a veces inadecuado puede conducir a la aparición de distintas formas de resistencia en los microorganismos. Cada año, la Organización Mundial de la Salud (OMS) organiza la Semana mundial de concienciación sobre la RAM (WAAW) para sensibilizar a la población sobre este problema de salud pública. Lea la página dedicada a este asunto.

Resistencia a antibioticos: la microbiota en primer plano

El uso masivo y a veces inadecuado de antibióticos los hace cada vez menos efic…

¿Qué es la Semana mundial de concienciación sobre la RAM?

Desde 2015, la OMS organiza cada año la Semana mundial de concienciación sobre la RAM (WAAW), cuyo objetivo es sensibilizar al público sobre la resistencia mundial a los antimicrobianos. Esta campaña, que tendrá lugar del 18 al 24 de noviembre, alienta al público general, a los profesionales sanitarios y a los responsables a hacer un uso razonable de los antimicrobianos para evitar el desarrollo de resistencia a los antimicrobianos.

¿Cuáles son los principales resultados que aporta este estudio?

En D4, poco después de la intervención, la riqueza y la diversidad de la microbiota se habían reducido considerablemente respecto a D0. Sin embargo, a pesar del muy amplio espectro del tratamiento antibiótico utilizado, seguía habiendo numerosas especies detectables en D4 (Figura 1a). Desde D8, la diversidad (medida por el índice de Shannon) había aumentado considerablemente, sugiriendo que los microrganismos supervivientes habían comenzado a regenerarse (Figura 1b). La diversidad había regresado casi completamente al estado inicial a los 6 meses, pero no así la riqueza, lo que sugería que ciertas cepas habían sido eliminadas de manera definitiva (o por lo menos de forma prolongada).

Entre los cambios precoces observados, había un enriquecimiento de comensales habitualmente subdominantes como Escherichia coli, Veillonella spp., Klebsiella spp., Enterococcus faecalis y Fusobacterium nucleatum y una mayor disminución de bacterias productoras de butirato como Faecalibacterium prausnitzii, Roseburia hominis, Anaerostipes hadrus, Coprococcus spp. y Eubacterium spp. Estas alteraciones de composición ya no eran significativas a partir de D42.

Los autores investigaron a continuación la función de los GRA en la evolución de la microbiota de los sujetos analizados. En concreto, observaron que las especies metagenómicas portadoras de β-lac- tamasas tenían posibilidades de supervivencia significativamente más elevadas (OR = 1,64 [1,24-2,17]) en D8. Por otro lado, las especies metagenómicas no detectadas en D0 tenían más posibilidades de colonización de novo en un punto posterior si eran portadoras de GRA frente a una de las tres clases utilizadas.

Puntos clave

  • La microbiota intestinal de jóvenes adultos con buena salud es recuperable a los cuatro días tras un tratamiento antibiótico de amplio espectro con un restablecimiento en aproximadamente 6 meses de la mayor parte de las comunidades bacterianas.

  • La recuperación individual de las especies está modulada por la presencia de GRA.

  • Aún está por estudiar el efecto de los tratamientos antibióticos prolongados o repetitivos, particularmente en la población pediátrica.

¿Cuáles son las consecuencias en la práctica?

Estos resultados demuestran que la microbiota intestinal de jóvenes adultos con buena salud es resistente tras cuatro días de tratamiento antibiótico de amplio espectro, con una recuperación de la mayor parte de las comunidades bacterianas en aproximadamente 6 meses. La recuperación individual de las especies está modulada por la presencia de GRA. Son necesarios otros estudios para evaluar, por un lado, el efecto de perturbaciones repetitivas y/o en periodos más prolongados y, por otro, si estos resultados también son válidos en niños, que tiene una microbiota y un sistema inmunitario inmaduros. Es posible que la utilización repetitiva de antibióticos durante periodos prolongados seleccione bacterias portadoras de GRA en detrimento de otras bacterias comensales, con efectos prolongados o permanentes sobre la microbiota. En ese sentido, se podrían plantear intervenciones correctivas consistentes en una aportación exógena de microrganismos. Por tanto, los efectos de los antibióticos sobre la microbiota son importantes y su uso debe estar justificado.

Conclusión

Los antibióticos de amplio espectro impactan negativamente en la microbiota intestinal de manera inmediata, significativa y duradera para ciertas especies. En los jóvenes adultos con buena salud, la microbiota intestinal es recuperable pero un restablecimiento casi completo necesita alrededor de 6 meses. La capacidad de regeneración de las especies, modulada por la transferencia de GRA, es más favorable a la diversidad que a la riqueza.

Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
Artículo comentado Gastroenterología Off

Microbiota y enfermedad celíaca

Síntesis

Por la Pr. Elena F. Verdu
Instituto de Investigación de la Salud Digestiva de la Familia Farncombe, Universidad McMaster, Hamilton, Canadá

Se cree que puede haber factores medioambientales implicados en la patogenia de la enfermedad celíaca (EC), una enfermedad autoinmune desencadenada por la ingesta de gluten. Hay estudios clínicos que demuestran alteraciones de la composición de la microbiota en los pacientes afectados por la EC. A pesar de que se hayan evidenciado algunas características constantes en los diferentes estudios realizados, no se ha identificado una firma microbiana de esta enfermedad. Con ayuda de modelos animales gnotobióticos* y reduccionistas, un reciente estudio sugiere que las cepas bacterianas provenientes de pacientes con una EC podrían tener un potencial patógeno o inflamatorio más importante. La modulación de la microbiota con probióticos específicos, que permite modificar ciertos mecanismos patógenos esenciales de la enfermedad celíaca, podría constituir un enfoque terapéutico interesante como complemento de una dieta sin gluten.

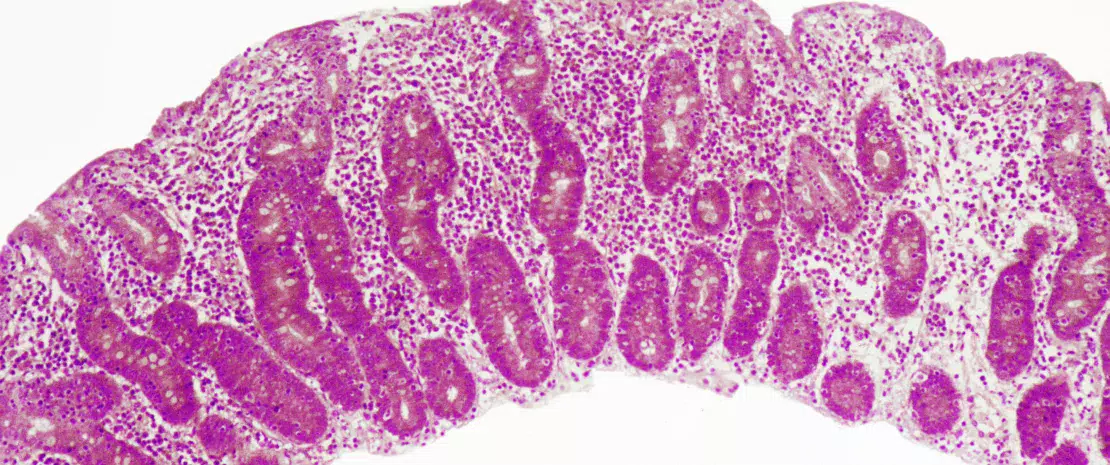
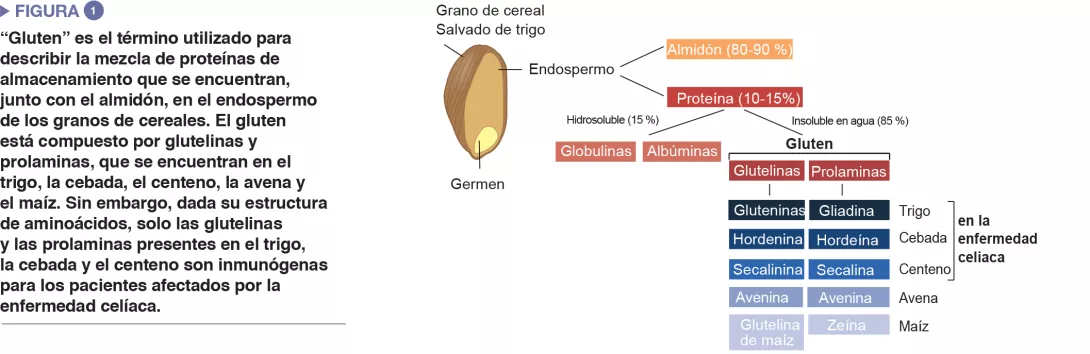
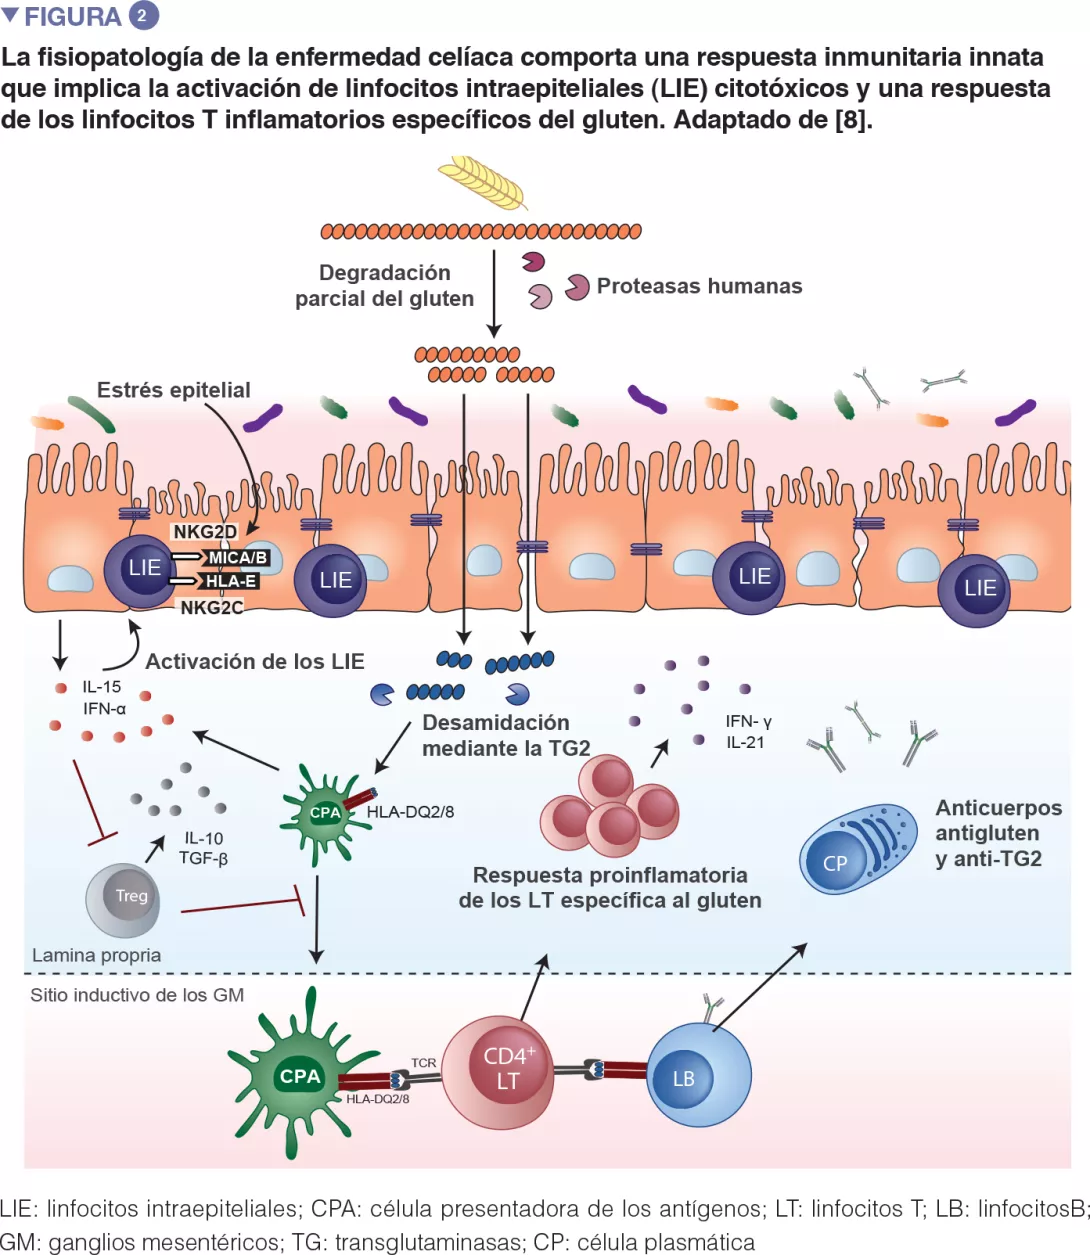
La enfermedad celíaca es una reacción inflamatoria autoinmune frecuente, que se manifiesta en personas genéticamente predispuestas, tras un consumo de gluten (Figure 1). La lesión característica es la destrucción de las vellosidades de la mucosa del intestino delgado (enteropatía). Las manifestaciones clínicas de la enfermedad son variadas, e incluyen síntomas intestinales y extraintestinales. La EC es la única enfermedad autoinmune en la que se ha identificado el antígeno desencadenante (el gluten). Se conocen bien los mecanismos que explican el riesgo genético HLA y las etapas provocadas por el factor alimenticio que conducen al desarrollo de linfocitos T proinflamatorios específicos del gluten y de autoanticuerpos (Figure 2). En cambio, se desconoce por qué la prevalencia de la enfermedad ha aumentado rápidamente en los últimos años y por qué la EC solo se desarrolla en una fracción de personas genéticamente predispuestas, lo que hace pensar en una implicación de otros factores genéticos o medioambientales en la activación de la cascada inflamatoria. El papel de los factores microbianos en el desarrollo de la enfermedad celíaca ha sido objeto de un interés creciente [1]. En esta revisión, nos concentramos en las alteraciones bacterianas y queremos determinar su función en los mecanismos patológicos, así como la manera en que podrían llegar a ser objetivos terapéuticos potenciales.

Imagen

Correlación entre disbiosis y enfermedad celíaca: lecciones de los estudios clínicos

Uno de los primeros estudios que sugirió una contribución microbiana en la EC describía la presencia de bacterias en forma de bastoncillo en las biopsias duodenales de niños nacidos durante una “epidemia” de EC en Suecia. Estas bacterias no se observaron en los niños no afectados ni en los nacidos después de la epidemia. Por ello, se pensó que su presencia podría haber contribuido al aumento de la incidencia de la enfermedad observada en Suecia [2]. Sin embargo, a día de hoy todavía se ignoran los mecanismos que sustentan esta asociación.

Imagen

Un cierto número de estudios publicados desde entonces ha analizado la composición de la microbiota presente en el colon y en el intestino delgado en pacientes afectados por EC, en comparación con pacientes control sanos. Se han evidenciado algunas características relativamente constantes en los diferentes estudios realizados: aumento de las proporciones de Bacteroides y de miembros del filo de Proteobacteria, y disminución de Lactobacillus y de Bifidobacteria en los pacientes celíacos respecto de los sanos [1]. En pacientes que sufrían síntomas persistentes a pesar de una dieta sin gluten- también se ha hallado una mayor abundancia de Proteobacteria [3]. Más recientemente, se ha demostrado que la composición de la microbiota de niños que presentan un riesgo genético elevado de desarrollar la enfermedad es diferente de la de niños que presentan un riesgo genético bajo [4-6]. Por último, se ha sugerido que los niños con riesgo que desarrollaron la EC tenían una diversidad microbiana inicial más importante pero que no aumentó con la edad, lo que indicaría una “maduración prematura” de la microbiota intestinal [7]. 

Los resultados permiten su la microbiota podrían predisponer a la enfermedad, pero se necesitan estudios más amplios, con muestras más importantes, para confirmar estas observaciones. Sin embargo, no se ha establecido ninguna “firma microbiana” celíaca. Las diferencias en cuanto a la localización de las poblaciones de estudio, al estado de los sujetos sanos control, al origen de las muestras (heces, o bien, intestino delgado) y a la metodología, podrían haber contribuido a las divergencias constatadas entre los estudios. Asimismo, se han constatado observaciones contradictorias en cuanto a las asociaciones entre los eventos que podrían alterar el desarrollo de la microbiota y el desarrollo de la EC. Mientras que los primeros estudios sugerían que la utilización de antibióticos y el parto por cesárea podían aumentar el riesgo de EC, estudios clínicos más recientes realizados a mayor escala no han confirmado estas asociaciones [8]. El seguimiento a largo plazo de niños con riesgo podría permitir comprender mejor los factores susceptibles de contribuir al desencadenamiento de la enfermedad. A pesar de la ausencia de un elemento que permita establecer un vínculo de causalidad, estas asociaciones clínicas han estimulado el estudio de los mecanismos fundamentales implicados en sistemas reduccionistas y modelos animales.

Mecanismos microbiota - enfermedad celíaca: ¿qué dicen las investigaciones?

Para comprender mejor cómo pueden estar implicadas las bacterias en la patogenia o el desarrollo de la EC, hay que  estudiar la función de la comunidad microbiana en pacientes afectados por EC y compararla con la de personas sanas. El aislamiento de bacterias provenientes del intestino delgado humano permite una traducción en modelos reduccionistas. Por ejemplo, las cepas de Enterobacteriaceae aisladas en pacientes celíacos eran más virulentas que las aisladas en los sujetos sanos [9]. Además, las cepas de Escherichia coli aisladas en niños celíacos tenían una mayor capacidad proinflamatoria in vitro que las cepas de Bifidobacterium aisladas en niños sanos [10]. La introducción de una microbiota de origen humano en ratones axénicos* permite una comparación in vivo de los fenotipos inducidos. Además, estos ratones pueden expresar las características del sistema inmunitario humano (expresión de la clase II del CMH, por ejemplo) que son esenciales para el desarrollo de la enfermedad celíaca. Ratones transgénicos que expresaban HLA-DQ8, el gen del riesgo celíaco en el hombre, estaban protegidos de la patología inducida por el gluten cuando eran colonizados mínimamente con una microbiota desprovista de agentes patógenos o de bacterias oportunistas. Sin embargo, si se añadía una cepa adherente de E. coli aislada en el intestino celíaco, a las bacterias protectoras, los ratones desarrollaban la patología inducida por el gluten. De manera similar, el tratamiento antibiótico por vancomicina en ratones que tenían una microbiota propia diversificada provocaba un aumento de Proteobacteria, en concreto de E. coli, y una exacerbación de la patología inducida por el gluten [11].

Imagen

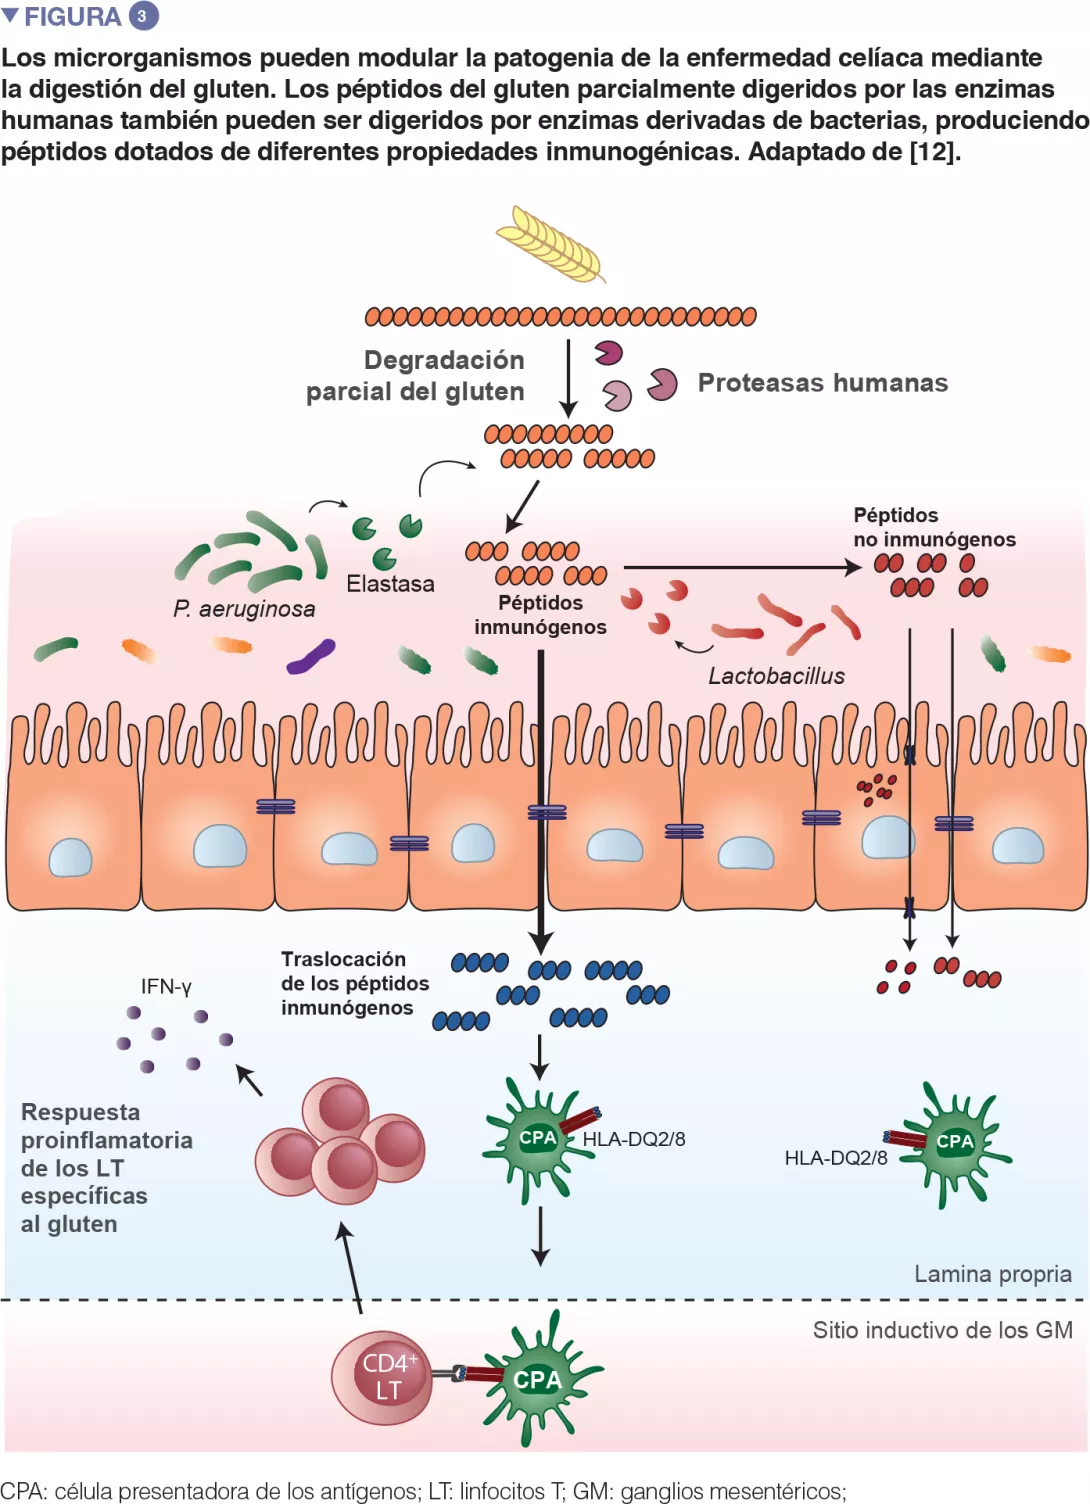
Recientes trabajos traslacionales reali- zados en ratones han reiterado la obser- vación según la cual las bacterias son ca- paces de degradar el gluten (Figure 3). Este estudio se ha realizado con ratones gnotobióticos colonizados con agentes patógenos oportunistas, como Pseudomo- nas aeruginosa, o con comensales, como Lactobacillus. Los autores han mostra- do que hay diferentes bacterias que pue- den degradar el gluten in vivo, pero que los fragmentos proteicos que producen son distintos. Este estudio también ha de- mostrado que las enzimas derivadas de P. aeruginosa, aislada en un paciente celíaco, podían degradar el gluten. Este proceso de digestión ha producido frag- mentos de gluten que han estimulado una respuesta inmunitaria inflamatoria en las células aisladas en pacientes afectados por la EC, y que tenían más capacidad de superar la barrera del intestino delgado, lugar donde se da la interacción con las células inmunitarias. Varios péptidos gene- rados por la digestión de P. aeruginosa y posteriormente digeridos con lactobacilos, aislados en un individuo sano, y que consti- tuían un elemento principal del microbioma sano, ya no inducían respuestas inmunita- rias inflamatorias in vitro. Este estudio ha puesto de relieve que los agentes patóge- nos oportunistas, pero también los comen- sales, pueden modificar el repertorio y las propiedades inmunitarias de los péptidos del gluten en el intestino, impactando así en la predisposición a la enfermedad [12].

¿Se pueden utilizar microorganismos para tratar o prevenir la enfermedad celíaca?

Un diagnóstico de EC implica evitar de forma estricta y de por vida cualquier alimento que contenga gluten porque una exposición a cantidades, incluso bajas, puede desencadenar toda una variedad de síntomas y una enteropatía en las personas afectadas. El gluten es omnipresente en los alimentos transformados, de ahí la dificultad de un cumplimiento estricto y el desarrollo de investigaciones con el objetivo de encontrar tratamientos alterna- tivos o adyuvantes. Dada la función clave de los microorganismos en la regulación de la inmunidad y de la asociación entre EC y alteración de la composición y de la función de la microbiota, se ha puesto a prueba el potencial terapéutico de los dife- rentes probióticos. Se probó una cepa de Bifidobacterium longum, que previamente había demostrado efectos antinflamatorios in vitro [10-13], en niños que seguían un régimen sin gluten en el marco de un es- tudio controlado frente a placebo a doble ciego.

Metabolismo del gluten por parte de las bacterias

  • El gluten es muy resistente a la degradación por las enzimas digestivas del huésped en el intestino delgado, debido a su estructura de aminoácidos

  • Por ello quedan fragmentos grandes de gluten capaces de inducir respuestas inmunitarias una vez que han atravesado la barrera epitelial en las personas genéticamente predispuestas

  • El tracto gastrointestinal contiene bacterias capaces de degradar el gluten, y estas bacterias pueden diferir entre los pacientes afectados por la enfermedad celíaca y los individuos sanos [17]

La administración del probiótico produjo modificaciones inmunitarias, así como concentraciones más bajas de bac- terias potencialmente nocivas (B. fragilis). Sin embargo, no se observó ninguna modificación de los síntomas en niños que recibieron el probiótico respecto a los que recibieron el placebo [14]. Como el probiótico se administró con la dieta sin gluten, es difícil hacer la distinción entre los efectos inducidos por la restricción alimentaria y los provocados por el probiótico. Otros dos estudios analizaron los efectos de una cepa de Bifidobacterium infantis. El primer estudio aleatorizado frente a placebo a doble ciego demostró que los pacientes que recibían el probiótico presentaban una mejora significativa de los síntomas des- pués de 3 semanas, pero no se constató ninguna diferencia en cuanto a la permeabilidad intestinal [15]. Un estudio de seguimiento buscaba determinar si el mismo probiótico podía modular las respuestas inmunitarias innatas, que podrían ser las responsables de la mejora de los síntomas anteriormente observada. La administración de una cepa de B. infantis produjo una disminución del número de células de Paneth en el intestino delgado, paralelamente a una disminución de los péptidos antimicrobianos. Estos efectos del probiótico eran independientes de la dieta sin gluten [16]. Teniendo en cuenta el bajo número de pacientes incluidos en estos estudios, a día de hoy no hay ningún elemento que permita recomendar un probiótico en particular para la EC. Además, los probióticos consumidos por los pacientes celíacos deben estar rigurosamente certificados sin gluten, lo que no ocurre con todos los pre- parados de venta sin receta. Antes de que el paciente los consuma, debemos comprender mejor los mecanismos de acción, y los elegidos según los análisis complementarios se deben seleccionar según su implicación en las vías de la EC. Por ejemplo, las bacterias que ayudan a la destoxificación del gluten podrían seleccionarse y utilizarse para completar la dieta sin gluten.

Sin embargo, a día de hoy, ninguna de las bacterias examinadas ha mostrado una digestión óptima del gluten in vitro. Los estudios realizados se han concentrado en las cepas bacterianas que pro- ducen enzimas capaces de degradar el gluten, pero hay especies fúngicas como Aspergillus niger que también producen enzimas que degradan el gluten, y es posible que combinaciones racionales de organismos fúngicos y bacterianos pudieran ofrecer un eje interesante de investigación terapéutica sobre la EC.

Conclusión

La función de la microbiota intestinal en la EC es evidente en la actualidad. Más allá de las asociaciones clínicas, los sistemas reduccionistas y los modelos animales gnotobióticos han mostrado que microrganismos específicos podían modular etapas clave en la patogenia de la enfermedad celíaca. Para estudiar las interacciones específicas microrganismoshuésped y microrganismosgluten es necesario utilizar estos sistemas, y para comprender cómo los microorganismos pueden desencadenar la enfermedad se deben realizar estudios clínicos más amplios que impliquen un seguimiento de las personas de riesgo. Esto podría permitir diseñar estrategias preventivas dirigidas a los microrganismos o a tratamientos adyuvantes a una dieta sin gluten.

Referencias

1 Verdu EF, Galipeau HJ, Jabri B. Novel players in coeliac disease pathogenesis: role of the gut microbiota. Nat Rev Gastroenterol Hepatol 2015 ; 12 : 497-506.

2 Ou G, Hedberg M, Hörstedt P, et al. Proximal small intestinal microbiota and identification of rod-shaped bacteria associated with childhood celiac disease. Am J Gastroenterol 2009 ; 104 : 3058-67.

3 Wacklin P, Laurikka P, Lindfors K, et al. Altered duodenal microbiota composition in celiac disease patients suffering from persistent symptoms on a long-term gluten-free diet. Am J Gastroenterol 2014 ; 109 : 1933-41.

4 Olivares M, Neef A, Castillejo G, et al. The HLA-DQ2 genotype selects for early intestinal microbiota composition in infants at high risk of developing coeliac disease. Gut 2015 ; 64 : 406-17.

5 Sellitto M, Bai G, Serena G, et al. Proof of concept of microbiome-metabolome analysis and delayed gluten exposure on celiac disease autoimmunity in genetically at-risk infants. PLoS One 2012 ; 7 : e33387.

6 Olivares M, Benítez-Páez A, de Palma G, et al. Increased prevalence of pathogenic bacteria in the gut microbiota of infants at risk of developing celiac disease: The PROFICEL study. Gut Microbes 2018 ; 9 : 551-8.

7 Olivares M, Walker AW, Capilla A, et al. Gut microbiota trajectory in early life may predict development of celiac disease. Microbiome 2018 ; 6 : 36.

8 Tye-Din JA, Galipeau HJ, Agardh D. Celiac disease: a review of current concepts in pathogenesis, prevention, and novel therapies. Frontiers in Pediatrics 2018 ; 6 : 350.

9 Sánchez E, Nadal I, Donat E, et al. Reduced diversity and increased virulence-gene carriage in intestinal enterobacteria of coeliac children. BMC Gastroenterol 2008 ; 8 : 50.

10 De Palma G, Kamanova J, Cinova J, et al. Modulation of phenotypic and functional maturation of dendritic cells by intestinal bacteria and gliadin: relevance for celiac disease. J Leukoc Biol 2012 ; 92 : 1043-54.

11 Galipeau HJ, McCarville JL, Huebener S, et al. Intestinal microbiota modulates gluten-induced immunopathology in humanized mice. Am J Pathol 2015 ; 185 : 2969-82.

12 Caminero A, Galipeau HJ, McCarville JL, et al. Duodenal bacteria from patients with celiac disease and healthy subjects distinctly affect gluten breakdown and immunogenicity. Gastroenterology 2016 ; 151 : 670-83.

13 Laparra JM, Olivares M, Gallina O, et al. Bifidobacterium longum CECT 7347 modulates immune responses in a gliadin-induced enteropathy animal model. PLoS One 2012 ; 7 : e30744.

14 Olivares M, Castillejo G, Varea V, et al. Double-blind, randomised, placebo-controlled intervention trial to evaluate the effects of Bifidobacterium longum CECT 7347 in children with newly diagnosed coeliac disease. Br J Nutr 2014 ; 112 : 30-40.

15 Smecuol E, Hwang HJ, Sugai E, et al. Exploratory, randomized, double-blind, placebo-controlled study on the effects of Bifidobacterium infantis natren life start strain super strain in active celiac disease. J Clin Gastroenterol 2013 ; 47 : 139-47.

16 Pinto-Sánchez MI, Smecuol EC, Temprano MP, et al. Bifidobacterium infantis NLS super strain reduces the expression of α-defensin-5, a marker of innate immunity, in the mucosa of active celiac disease patients. J Clin Gastroenterol 2017 ; 51 : 814-7.

17 Caminero A, Nistal E, Herrán AR, et al. Differences in gluten metabolism among healthy volunteers, coeliac disease patients and first-degree relatives. Br J Nutr 2015 ; 114 : 1157-67.

Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
Artículos

Cánceres digestivos y microbiota intestinal: de la oncogénesis a la respuesta a los tratamientos

Síntesis

Por el Pr. Iradj Sobhani
Gastroenterología, Universidad París Este Créteil (UPEC) y Hospital Universitario, Créteil, Francia

El cáncer se ha convertido en la primera causa de mortalidad en numerosos países occidentales a causa de su creciente prevalencia. Actualmente, se considera más bien una enfermedad emergente debida al entorno que una patología inducida por anomalías genéticas constitucionales, que de hecho son poco frecuentes. Se trata de un cambio de paradigma favorecido por el desarrollo de las técnicas de biología molecular, por una mejor comprensión de los mecanismos y por la identificación de biomarcadores asociados. Desde hace varios decenios, los epidemiólogos han establecido una relación entre oncogénesis y alimentación, lo que tiende a otorgar a la microbiota intestinal –y por tanto a la disbiosis–, un lugar central en el estudio del cáncer. Esta asociación ha encontrado ahora una explicación mecanística, tanto en el plano energético como inflamatorio e inmunitario: algunas bacterias, favorecidas por la alimentación, pueden, justamento, influir la progresión tumoral, afectar la respuesta de los tumores a los tratamientos o los efectos secundarios resultantes.

Las asociaciones entre ciertos cánceres y disbiosis, los mecanismos por los cuales la microbiota intestinal puede promover un cáncer en el ser humano, así como el inventario de los biomarcadores con fines diagnósticos y/o terapéuticos, en particular en el ámbito de las inmunoterapias anticancerígenas están recogidos en la tabla 1.

Como en el caso de la obesidad y la diabetes, se trata de identificar los marcadores bacterianos con un objetivo diagnóstico, pero también de estudiar las funciones de las bacterias para comprender mejor el impacto del entorno en las patologías.

En pacientes obesos, por ejemplo, una alimentación desequilibrada en el plano cuantitativo y cualitativo puede afectar rápidamente a la microbiota intestinal, así como las funciones bacterianas [1]. La caracterización de su microbiota intestinal puede hacer emerger una disbiosis específica y permitir la evaluación de las probabilidades de éxito o de fracaso de un régimen alimenticio correctivo. Hay numerosas enfermedades emergentes, como los cánceres, que han experimentado desarrollos similares y que se benefician de estos avances en investigación fisiopatológica.( Figura 1).

Imagen
Imagen

Esófago-estómago

En condiciones fisiológicas, la microbiota del esófago se asemeja a la de la cavidad oral. Firmicutes, Bacteroidetes, Actinobacteria, Proteobacteria y Fusobacteria son los que tienen mayor representación y el género Streptococcus es dominante a nivel esofágico. En caso de reflujo gastroesofágico (ERGE) o de endobraquioesófago (EBO), condiciones que favorecen las situaciones preneoplásicas, se observa una microbiota más similar a la del estómago, caracterizada por la abundancia de Bacteroidetes, Proteobacteria y Fusobacterium. Helicobacter pylori, bacteria identificada como un cofactor de las neoplasias gástricas (cáncer y linfoma-MALT), parece paradójicamente protectora frente a los adenocarcinomas esofágicos, en emergencia en los países occidentales. En realidad, hay diferentes especies bacterianas, distintas de H. pylori, como Pasteurella stomatis, Dialister pneumosintes, Slakia exigua, Parvimonas micra y Streptococcus anginosus, que desempeñan una función de promoción tumoral gástrica. Hay trabajos recientes que sugieren que las Enterobacteriaceae, en particular el Ruminococcus podrían desempeñar una función importante en el escape al control inmunitario antitumoral de los adenocarcinomas gástricos y esofágicos [2].

Cáncer colorrectal (ccr) y modelo de estudio de escape tumoral a la respuesta inmune

Disbiosis cólica ligada al CCR [3, 4], la hipótesis de que la flora oral participaba en la disbiosis implicada en la génesis del CCR se ha reactualizado a la luz de los trabajos originales sobre la capacidad de ciertas bacterias orales para superar el filtro gástrico y de participar en la disbiosis cólica [5]. Los desequilibrios bacterianos se producen a menudo en detrimento de bacterias beneficiosas como Bifidobacteria y Lactobacilli, que contribuyen a mantener la respuesta inmune [2]. Cuando estas bacterias ya no pueden hacer de contrapeso frente a las bacterias proinflamatorias, se instala una inflamación crónica asintomática de la mucosa cólica, conocida desde hace tiempo por favorecer el proceso carcinógeno. Últimamente, se considera que la alimentación actual de tipo occidental (demasiado rica en proteínas animales y en azúcares) favorece las bacterias proinflamatorias en detrimento de bacterias antinflamatorias. Y, al contrario, una alimentación de tipo mediterráneo (rica en fibras vegetales) limita los efectos nocivos [6]. A falta de un aporte suficiente de fibras, las bacterias reclutadas por el consumo excesivo de proteínas o de grasas animales erosionan la mucosidad, la utilizan como fuente de fibras, y exponen el epitelio intestinal a bacterias potencialmente virulentas (Figura 1). A escala celular, las grandes vías biológicas como la vía Wnt y la vía común NF-kB (nuclear factor-kappa B), que originan respectivamente la renovación celular y una mayor producción de citoquinas proinflamatorias, se estimulan gracias a esta alimentación [6]. Se puede asociar a este fenómeno una orientación de la respuesta inmune hacia la tolerancia debida a la sobreabundancia de otras bacterias como Parvimonas micra y Streptococcus fragilis [7]. En animales, Bacteroides fragilis o Escherichia coli, que forman parte del panel de bacterias sobreabundantes en caso de CCR en un estadio avanzado (III o IV de TNM), mantienen la estimulación inflamatoria en la mucosa cólica y favorecen la aparición de tumores [8].

Carcinoma hepatocelular (chc)

Los tumores primitivos del hígado ocurren tras un proceso crónico que incluye la cirrosis, que a su vez es el resultado de una infección viral inducida por el VHB o el VHC. Hay mecanismos epigenéticos secundarios a la acción de los microorganismos que suponen una extinción de ciertos genes clave como p16 (INK4A), glutatión S-transferasa P 1 (GSTP1), CDH1 (E-cadherina), Ras association domain containing protein 1 (RASSF1A), p21 (WAF1/CIP1) todos hipermetilados por el VHB, así como ciertos genes supresores de citocinas 1 (SOCS-1), y el de STAT1, hipermetilados por el VHC. Estos genes retrasan la aparición del cáncer, pero la hipermetilación inhibe su expresión. Existen bacterias que pueden intervenir como factores de promoción en estos procesos: Helicobacter hepaticus aumenta el riesgo carcinógeno, bien directamente por la activación de la vía Wnt y la de NF-kB, bien como facilitador del proceso inducido por VHC. Al igual que ciertos elementos del entorno (virus, contaminantes químicos, etc.), algunas enterobacterias, como E. coli, se identifican como cofactores de activación del proceso carcinógeno. En el ámbito del metabolismo, el desequilibrio Firmicutes/ Bacteroidetes, conocido como factor de riesgo de obesidad, favorece el riesgo de CHC por la bajada de bacterias protectoras como Lactobacillus, Bifidobacterium, Parabacteroides y Oscillibacter [9, 10].

Cáncer de páncreas

En los pacientes afectados por cáncer de páncreas, se han detectado densidades elevadas de Enterobacteriaceae, Pseudomonadaceae, Moraxellaceae y Enterococcaceae en el tejido tumoral; también las de Acinetobacter, Aquabacterium, Oceanobacillus, Rahnella, Massilia, Delftia, Deinococcus, y Sphingobium son elevadas en la zona luminal duodenal. Al igual que en el CCR, la disbiosis relacionada con este cáncer incluye además la modificación de la flora oral, caracterizada por una sobreabundancia de Porphyromonas gingivalis o la escasez de Neisseria elongate y Streptococcus mitis. Esto lleva a destacar una vez más la asociación entre disbiosis bacteriana intestinal y cáncer digestivo. En el plano terapéutico, es importante señalar que las Gammaproteobacteria pueden aumentar la resistencia a la gemcitabina, tratamiento de referencia de los cánceres de páncreas.

Respuesta inmune antitumoral y disbiosis

Los animales axénicos (libres de gérmenes) padecen menos tumores, sin duda a causa de una inmunotolerancia y de una menor actividad inflamatoria reaccional, que pueden explicarse por la ausencia de una microbiota fisiológica. La microbiota puede contribuir a la carcinogénesis a través de mecanismos diferentes: en primer lugar, por la activación inflamatoria por disbiosis y reorientación del sistema inmunitario; la producción de genotoxinas (colibactina, fragilisina) y de factores de virulencia por las bacterias capaces de alterar directamente el ADN del hospedador; o por la inducción de un estrés oxidativo por la producción de especies reactivas del oxígeno (ROS); por último, por la producción de metabolitos secundarios por las bacterias (ácidos biliares secundarios...). En el modelo del colon, por ejemplo, se observan 4 subtipos diferentes que corresponden a vías metabólicas, inmunitarias o inflamatorias diferentes [11]. En el subtipo de CCR infiltrado por los linfocitos T (LT), se observa la disminución de la capacidad de los LT para expresar citocinas o para atacar a las células objetivo a causa de una estimulación persistente por antígenos tumorales. Este fenómeno se describe como un agotamiento de LT. Es el mecanismo más corriente de evasión inmunitaria. Sea cual sea el reclutamiento linfocitario inicial, citotóxico o facilitador, el tumor continuará desarrollándose [9]. Las células linfocitarias T reguladoras (LTreg) facilitarán el efecto inmunosupresor mediante la producción de factores como TGF-β. Las LT-reg se reclutarán preferiblemente en la fase de agotamiento. Además, la densidad intratumoral de las LT-reg es un marcador de pronóstico desfavorable. Al producir citocinas inmunosupresoras (IL-10 y TGF-β), las células T-reg reducen la acción específica de las LT citotóxicas dirigida normalmente contra la célula tumoral. En particular, aumentan la molécula inhibidora asociada a la expresión de la proteína 4 (CTLA-4 o CD 152) de estos linfocitos. Esta proteína se ha convertido en un objetivo de las inmunoterapias modernas. Los LT-regs actúan con ayuda de los LTh17 así como con STAT3 (Signal Transducer and Activator of Transcription 3), implicados en la cancerogénesis de diversos órganos. El LTh17 produce citocinas proinflamatorias (IL-17 e IL-23) que favorecen el crecimiento tumoral aumentando la producción de citocinas Th1 y la de un ligando de quimiocina (motivo C-X-C)9 y 10 (CXCL9 y CXCL10). Las células Th17 tienen características similares a las células madre y son capaces de renovarse. El entorno citocínico presente en el foco tumoral influye en los diferentes modelos de expresión de las células Th17: en los cánceres colorrectales, hepatocelulares y pancreáticos, la infiltración de LTh17 está asociada a un mal pronóstico, porque favorece la tolerancia inmunitaria al tumor. La disbiosis adherente a las mucosas modula la expresión de IL17, IL-23 y STAT3.

Microbiota y tratamiento de los cánceres

La capacidad de la microbiota intestinal para modular la respuesta a la quimioterapia anticancerígena y a la inmunoterapia se ha observado en ratones y en seres humanos. Los carcinomas de pulmón, de riñón, y el melanoma han sido objeto de estudios clínicos. Esta influencia nunca se puede atribuir a una sola especie: en todos los casos, se trata del impacto de una comunidad microbiana intestinal en su conjunto sobre la inmunidad o una función compartida por diferentes bacterias. Estas últimas influyen en los efectos secundarios o en la resistencia terapéutica (Figura 2). A modo de ejemplo, la actividad citidina- deaminasa de las proteobacterias, en particular de Mycoplasma hyorhinis, metaboliza la gemcitabina y reduce su eficacia. Del mismo modo, la ciclofosfamida presenta efectos antitumorales variables según la dosis administrada; las bacterias grampositivas (como Enterococcus hirae) y gramnegativas (como Barnesiella intestinihominis) modulan su eficacia [12].

ias antineoplásicas en el melanoma maligno. Se trata de los tratamientos más prometedores que actúan sobre las moléculas del punto de control inmunitario como por ejemplo PD-1 y CTLA-4. En primer lugar, se ha constatado que en pacientes afectados por un cáncer metastásico renal o pulmonar, la utilización de un tratamiento antibiótico podría modular la actividad de las inmunoterapias anti-PD-1 o anti-PD-L1 [13]. Después, un vasto estudio americano realizado en el melanoma maligno metastático tratado por inmunoterapia ha revelado que la buena respuesta (supervivencia sin progresión y supervivencia global mayor) al tratamiento dependía de la composición microbiana cólica: la transferencia de microbiota intestinal de los pacientes en un modelo con ratones mostraba que la disbiosis intestinal era efectivamente el origen de la variabilidad de la respuesta a la inmunoterapia de tipo anti-PD-1 [14, 15].

Hay que vincular estos datos con los de los polimorfismos de TLR4, que están relacionados con la variabilidad de la respuesta a la inmunoterapia. Los TLR (toll-like receptors) son transmembranarios o citosólicos; forman parte de la gran familia de receptores de la inmunidad innata PRR (pattern recognition receptors), expresados por las células epiteliales y las células inmunitarias en el intestino. La unión de un TLR con el ligando microbiano provoca una cascada de señalización intracelular que generalmente desemboca en una respuesta de tipo inflamatorio por activación de NF-kB. El estado inmunitario del hospedador ha demostrado ser el factor principal en la respuesta a todos los tratamientos antineoplásicos, directamente y por alteraciones de la microbiota intestinal. Además, los otros elementos terapéuticos como la radioterapia y la cirugía también se ven impactados por la microbiota: los ratones axénicos presentan menos toxicidad ante las radiaciones ionizantes que los ratones convencionales; la cicatrización posoperatoria en los pacientes operados de cáncer de colon depende del tipo de disbiosis.

Imagen

Conclusión

La composición microbiana cólica se ve influida por los factores del entorno y puede influir en la génesis y la progresión de los tumores malignos por la vía del metabolismo, de la inflamación o de la inmunidad. La resistencia a los tratamientos antitumorales así como la aparición de ciertos efectos secundarios de estos tratamientos son objeto de estudios. Es probable que, en el futuro, la modulación de la microbiota intestinal se convierta en un medio para optimizar los tratamientos antitumorales.

Bibliografia

1 David LA, Maurice CF, Carmody RN, et al. Diet rapidly and reproducibly alters the human gut microbiome. Nature 2014 ; 505 : 559–63.

2 Cianci R, Franza L, Schinzari G, et al. The interplay between immunity and microbiota at intestinal immunological niche: The case of cancer. Int J Mol Sci 2019 ; 20 : 501.

3 Sobhani I, Tap J, Roudot-Thoraval F, et al. Microbial dysbiosis in colorectal cancer patients. Plos One 2011 ; 6 : e16393.

4 Zeller G, Tap J, Voigt AY, et al. Potential of fecal microbiota for early-stage detection of colorectal cancer. Mol Syst Biol 2014 ; 10 : 766.

5 Prodan A, Levin E, Nieuwdorp M. Does disease start in the mouth, the gut or both? eLife 2019 ; 8: e45931.

6 O’Keefe SJ, Li JV, Lahti L., et al. Fat, fibre and cancer risk in African Americans and rural Africans. Nat Commun 2015 ; 6 : 6342.

7 Purcell RV, Visnovska M, Biggs PJ, et al. Distinct gut microbiome patterns associate with consensus molecular subtypes of colorectal cancer. Sci Rep 2017 ; 7: 11590.

8 Tjalsma H, Boleij A, Marchesi JR, Dutilh BE. A bacterial driver-passenger model for colorectal cancer: beyond the usual suspects. Nat Rev Microbiol 2012 ;10 : 575–582.

9 Tilg G, Schmiderer A, Djanani A. Gut microbiome-immune crosstalk affects progression of cancer. Transl Gastroenterol Hepatol 2018 ; 3 : 34.

10 Guinney J, Dienstmann R, Wang X, et al. The consensus molecular subtypes of colorectal cancer. Nat Med 2015 ; 21 : 1350-6.

11 Sivan A, Corrales L, Hubert N, et al. Commensal Bifidobacterium promotes antitumor immunity and facilitates anti–PD-L1 efficacy. Science 2015 ; 350 : 1084–9.

12 Alexander J, Wilson ID, Teare J, et al. Gut microbiota modulation of chemotherapy efficacy and toxicity. Nat Rev Gastroenterol Hepatol 2017 ; 14 : 356–65.

13 Routy B, Le Chatelier E, Derosa L, et al. Gut microbiome influences efficacy of PD-1-based immunotherapy against epithelial tumors. Science 2018 ; 359 : 91-7.

14 Matson V, Fessler J, Bao R, et al. The commensal microbiome is associated with anti-PD-1 efficacy in metastatic melanoma patients. Science 2018 ; 359 : 104-8.

15 Gopalakrishnan V, Spencer C, Nezi L, et al. Gut microbiome modulates response to anti-PD-1 immunotherapy in melanoma patients. Science 2018 ; 359 : 97-103.

Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
Artículos

El microbioma intestinal y las enfermedades inflamatorias crónicas

Revisión de prensa 

Por el Pr Markku Voutilainen
Facultad de medicina de la Universidad de Turku; gastroenterología, Hospital Universitario de Turku, Finlandia

EII

3D illustration of Pasteurella multocida bacteria. This is a Gram-negative, non-motile, penicillin-sensitive coccobacillus belonging to the Pasteurellaceae family.

Los autores han analizado las alteraciones de la microbiota intestinal en las enfermedades inflamatorias crónicas [1]. Las enfermedades inflamatorias intestinales crónicas (EII), la artritis reumatoide (AR), la espondiloartritis anquilosante (EA), la psoriasis/artritis psoriásica (Pso/APso) y el lupus eritematoso sistémico (LSE) son las principales enfermedades crónicas inflamatorias inmunomediadas (IMID por sus siglas en inglés) que afectan al 5-8% de la población mundial. Ciertos estímulos ambientales inician una respuesta inmunitaria patológica en individuos genéticamente susceptibles. El microbioma intestinal podría desencadenar estas respuestas inmunitarias atípicas.

La colitis ulcerosa y la enfermedad de Crohn son los dos tipos más comunes de EII en el mundo occidental, pero su prevalencia ha aumentado mundialmente de forma exponencial. La EII es una enfermedad crónica e incurable con baja mortalidad, a menudo diagnosticada a una edad temprana. Los pacientes que padecen una EII se exponen a un mayor riesgo de padecer otras enfermedades inmunológicas como Pso, AR, EA y colangitis esclerosante primaria. Los pacientes con EII tienen una mayor cantidad de Proteobacteria (por ejemplo, de Escherichia coliadherente-invasiva), Pasteurellaceae, Veillonellaceae, Fusobacterium y Rumincoccus gnavus. Típicamente, los pacientes con EII tienen un número reducido de grupos de Clostridium IV y XIVa, Bacteroides, Suterella, Roseburia, Bifidobacterium y Faecalibacterium prausnitzii. En cuanto a los hongos, Saccharomyces cerevisiae se reduce. En lo concerniente a los virus, los Caudovirales son más elevados en pacientes con EII.

Como en el caso de las EII, los pacientes con esclerosis múltiple tienen una menor abundancia de Faecalibacterium lo que sugiere que podría ser un signo de inflamación sistémica. La AR probablemente empieza en la mucosa bucal o intestinal y la autoinmunidad contra las proteínas citrulinadas es un fenómeno típico. Además, en los pacientes con AR, se ha observado una reducción de Faecalibacterium y un aumento de Actinobacteria. No sabemos si la disbiosis intestinal es una causa o un efecto de la AR. En el caso de las infecciones víricas, se asocia el parvovirus B 19 y la hepatitis C a un mayor riesgo de AR. También se ha registrado un perfil de microbioma intestinal alterado en pacientes con EA, Pso/APso y LSE.

En el intestino, las bacterias protectoras aumentan los metabolitos beneficiosos como el butirato y el polisacárido A estimulando la producción de linfocitos T reguladores. Una disminución de la abundancia de estas bacterias es típica en las IMID, lo que supone una menor tolerancia inmunitaria. Una disbiosis y una mayor permeabilidad intestinal podrían estimular las células dendríticas de la mucosa intestinal causando la producción de citocinas inflamatorias. Un aumento en los metabolitos de xenobióticos (p.ej. metano) estimula las células TH 17, que desempeñan una función importante en la patogénesis de la IMID. La estimulación de las proteasas podría generar una producción de autoantígenos típica de las IMID. Un descenso de las bacterias productoras de butirato es típico de las EII y de otras IMID.

A largo plazo la alimentación influye en el perfil del microbioma intestinal, pero también se han detectado cambios inmediatos. Un cambio de una alimentación animal a una vegetal altera el microbioma intestinal en solo un día. Los componentes de la dieta estudiada incluyen proteínas animales, de lactosuero y de guisante, alto/bajo contenido en grasa, alta/baja proporción de grasas saturadas/ instauradas, lactosa, edulcorantes artificiales, fibra, almidón resistente, probióticos y polifenoles. La dieta mediterránea y vegetariana aumenta la diversidad de las bacterias intestinales, mientras que es posible que la dieta occidental y sin gluten disminuyan la diversidad microbiana. Se asocia una menor diversidad bacteriana y una pérdida de ácidos grasos de cadena corta productores de bacteria con la EII. Los perfiles de disbiosis son comunes en las IMID, pero existen algunos subtipos de disbiosis específicos de una sola patología. Es posible que un conjunto de metabolitos microbianos producido por una variedad de composiciones microbianas esté implicado en la patogénesis de las IMID. El perfil funcional del microbioma podría ser el factor decisivo en la patogénesis de las IMID.

La EII, otras IMID y enfermedades metabólicas están asociadas a un estilo de vida occidentalizado (tipo de dieta, mejores condiciones sanitarias). Las prácticas higiénicas y la toma de antibióticos pueden desembocar en alteraciones desfavorables del microbioma, lo que podría provocar alteraciones en la maduración y el funcionamiento del sistema inmunitario.

Los probióticos y los antibióticos no son tratamientos efectivos para la EII. Por otro lado, solo un tercio de los pacientes que padecen colitis ulcerosa llegan a la remisión tras un trasplante de la microbiota fecal. Los autores concluyen que es posible que la disbiosis no sea específica de la EII, sino que module el sistema inmunitario globalmente. Las personas podrían estar genéticamente programadas para responder a los cambios inmunitarios en sistemas de órganos que conducen a diferentes IMID.

Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
Revisión de prensa

La dieta mediterránea, la microbiota intestinal y enfermedades no transmisibles [2]

Revisión de prensa 

Por el Pr Markku Voutilainen
Facultad de medicina de la Universidad de Turku; gastroenterología, Hospital Universitario de Turku, Finlandia

Computer illustration of Bacteroides sp. bacteria. These are rod shaped, obligate anaerobic, Gram-negative, saccharolytic bacteria. 

La dieta mediterránea se caracteriza por una alta ingesta de vegetales, frutas, verduras, frutos secos, semillas, cereales integrales, un consumo moderado de pescado y una baja ingesta de grasas saturadas, carne y productos lácteos además de un consumo moderado de alcohol, especialmente de vino tinto. La alimentación de algunas personas que viven en los países nórdicos se asemeja a la dieta mediterránea. Las personas que siguen una dieta mediterránea tienen una menor morbimortalidad por enfermedades cardiovasculares, y la alimentación tiene un efecto preventivo y terapéutico del síndrome metabólico, la obesidad, la diabetes de tipo 2, las enfermedades inflamatorias y ciertos tipos de cáncer.

El intestino humano está colonizado por miles de especies microbianas (bacterias, virus, arqueas, especies eucariotas unicelulares) que contienen más de tres millones de genes diferentes (el genoma humano contiene 23 000 genes). La microbiota fermenta las fibras alimentarias no digeribles y la mucosidad intestinal endógena, lo cualestimula el crecimiento de microbios que producen ácidos grasos de cadena corta (butirato, propionato, acetato).

La disbiosis se relaciona con una inflamación localizada de la mucosa intestinal, un deterioro de la fisiología intestinal y de los trastornos metabólicos. La disbiosis se asocia a multitud de enfermedades gastrointestinales y extraintestinales. Sin embargo, existe una variación interpersonal significativa de la microbiota entre personas con la misma enfermedad y la población microbiana es altamente variable entre enfermedades diferentes.

Estudios con animales han mostrado que la alimentación tiene un fuerte impacto en el microbioma intestinal. La dieta mediterránea contiene carbohidratos complejos que son fermentados por una microbiota saludable que produce aminoácidos grasos de cadena corta. La dieta mediterránea tiene efectos beneficiosos en la microbiota y en su perfil metabolómico. También se ha observado una mayor diversidad de la microbiota intestinal incluso después de la ingesta moderada de vino tinto. La dieta mediterránea aumenta la abundancia de Bacteroides y reduce las Firmicutes. En personas con una mayor adherencia a la dieta mediterránea, la concentración fecal de butirato y de propionato es mayor. También tiene una proporción Bifidobacteria/Escherichia coli elevada, que se asocia con un buen equilibrio intestinal y una buena salud. Este tipo de alimentación también aumenta los niveles de Faecalibacterium prausnitzii y ciertas especies Clostridiales, así como la capacidad de la microbiota intestinal de metabolizar polifenoles de los alimentos

Se ha sugerido utilizar la dieta mediterránea para el tratamiento de pacientes con enfermedades metabólicas (diabetes de tipo 2, obesidad, esteatosis hepática no alcohólica), porque podría anular los trastornos de la disbiosis y el perfil metabolómico que a menudo se detecta en estos pacientes. Sin embargo, se necesitan más datos sobre los patrones de fluctuación temporales de la microbiota intestinal relacionados con la dieta mediterránea. Además, necesitamos entender mejor los mecanismos por los cuales la dieta modifica la microbiota y cómo participa la disbiosis en la patogénesis de enfermedades no transmisibles.

Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
Revisión de prensa

Microbiota intestinal y fragilidad relacionada con la edad

Revisión de prensa 

Por el Pr. Markku Voutilainen
Facultad de medicina de la Universidad de Turku; gastroenterología, Hospital Universitario de Turku, Finlandia

Los autores han analizado la función de la microbiota intestinal y de la disbiosis en la aparición de fragilidad relacionada con la edad [1]. Las manifestaciones físicas de la fragilidad son pérdida de peso, debilidad muscular, cansancio, estilo de vida sedentario y marcha lenta. La debilidad muscular se debe a la sarcopenia, que se caracteriza por la pérdida tanto de masa muscular como de funcionalidad, por ejemplo, fuerza y potencia. La prevalencia de la sarcopenia es del 5-13 % en personas de 60-70 años y del 11-50 % en mayores de 80 años.

El envejecimiento se caracteriza por un aumento de las respuestas inflamatorias, una disfunción endotelial, cambios en el sistema inmunitario y un mayor estrés nitrosativo. Con el aumento de la edad, el microbioma intestinal muestra una biodiversidad menor y una cantidad mayor de patógenos. Los cambios son típicos en personas de más de 65 años, y atribuibles a una composición alterada de la dieta causada por una disminución del apetito, pérdida de dentición y de una masticación satisfactoria, así como a trastornos de la deglución e hipoabsorción. Los cambios en la microbiota no son uniformes, pero se podrían asociar con la ubicación geográfica, el hábitat, el estilo de vida (fumar, consumo de alcohol), la actividad física, la toma de antibióticos y a factores genéticos. Los cambios del microbioma relacionados con la edad más típicos son la disminución de las bacterias productoras de butirato (Bifidobacteria, Firmicutes) y el aumento de Bacteroides. Aunque la heterogeneidad interindividual es amplia, hay una tendencia al incremento de la cantidad de patógenos oportunistas que pueden aumentar la permeabilidad intestinal.

La disbiosis se asocia con una reducción de la síntesis de proteinas musculares (resistencia anabólica) que conduce a la sarcopenia. La disbiosis también puede reducir la biodisponibilidad de los aminoácidos alimenticios y alterar el metabolismo de las vitaminas de las células musculo esqueléticas. Los principales mecanismos de la sarcopenia provocada por la disbiosis son la resistencia anabólica, la inflamación, la alteración del metabolismo mitocondrial, el estrés oxidativo, y la resistencia a la insulina. La reducción de los ácidos grasos de cadena corta puede desempeñar un papel crucial en el metabolismo proteico y energético muscular alterado.

Una nutrición deficiente y la inactividad física desempeñan una función fundamental en la patogénesis de la sarcopenia, además de tener un impacto significativo en la microbiota intestinal. Al contrario, la disbiosis intestinal podría modular la inflamación sistémica, la síntesis de proteinas musculares, la sensibilidad a la insulina y el metabolismo energético. Actualmente no existe ningún indicio de una composición específica de la microbiota en los pacientes que padecen sarcopenia. Sin embargo, el presente análisis respalda el concepto de que la microbiota intestinal participa en los efectos de la nutrición en las células musculares («eje intestino- músculo»).

Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
Revisión de prensa

Principales contribuciones sobre la microbiota intestinal del niño

De vuelta del congreso

Por el Pr Patrick Bontems
Université Libre de Bruxelles, Bruselas, Bélgica

El ESPGHAN, creado hace más de 50 años, organiza un congreso anual cuyo público supera los 4000 participantes provenientes de más de 100 países diferentes.

Desarrollo de la microbiota en el nacimiento

El desarrollo de la microbiota después del nacimiento viene determinado por los intercambios entre madre e hijo. La perturbación de estos intercambios aumenta el riesgo de aparición de ciertas enfermedades [1]. Las principales causas de disbiosis inducidas en el periodo neonatal son el nacimiento por cesárea, la utilización de antibióticos y la ausencia o el cese prematuro (antes de los 4-6 meses de edad) de la lactancia materna. Dado que no podemos prescindir de ciertas indicaciones de cesárea ni de una utilización razonable de antibióticos, la promoción de la lactancia materna es una prioridad para los pediatras.

Hay diversos estudios que respaldan esta idea. Por ejemplo, Sakwinski et al. hicieron un seguimiento de 267 niños hasta la edad de 2 años. El estudio longitudinal demostró que los niños que no habían sido amamantados presentaban un riesgo de infecciones respiratorias 3,84 veces superior. El efecto protector de la lactancia se debe a la modulación de la microbiota, ya que la leche materna favorece su composición permitiendo una predominancia de Bifidobacterias, como lo recordaban Berger et al. El estudio de Berger trataba sobre el análisis de heces de niños alimentados exclusivamente con leche materna en Estados Unidos, Bélgica, Italia, Filipinas y Bangladesh. Sin embargo, este estudio reveló que la predominancia de Bifidobacterias solo está presente entre el 17 % de los lactantes en Estados Unidos, frente a una media de más del 70 % en los otros países. Esta diferencia podría deberse a la composición de la leche materna, a la microbiota de la madre o a otros factores ambientales.

La composición de la microbiota de los niños prematuros se perturba a causa de la separación de la madre y del hijo. La administración de leche materna permite reducir dichas perturbaciones [2]. Así, la administración de calostro por vía orofaríngea favorece la presencia de Bifidobacterias, como lo demuestran Feferbaum et al. Sin embargo, la pasteurización del calostro conlleva un aumento de Proteobacterias en comparación con el calostro crudo. Según un estudio realizado por Yamashiro et al. en Japón, parece que la administración concomitante de calostro y de Bifidobacterium breve, permite aumentar la colonización del tubo digestivo por Bifidobacterias y producir una mejora del crecimiento en el bebé prematuro.

Human Milk Oligosaccharides (HMO, oligosacáridos de leche humana)

Los HMO representan el tercer componente de la leche materna, después de la lactosa y las grasas [3]. Principalmente se trata de galacto-oligosacáridos que tienen efectos en la microbiota. [4]. En los últimos años, las leches maternizadas se han suplementado con ciertos HMO [5]. En el congreso se presentaron numerosos estudios en torno a este tema. Por ejemplo, Binia et al. explicaron que la ausencia de HMO 2’-fucosilado en la leche materna, debido a una variación genética, supone una mayor frecuencia de infecciones respiratorias. Sprenger et al. trasladaron los resultados de un ensayo aleatorizado y controlado que demuestra que este efecto protector se debe a una microbiota más rica en Bifidobacterias. Tomasi et al. estudiaron las capacidades cognitivas de los ratones en función de la presencia o la ausencia de 6’-sialil-lactosa. La memoria y la orientación espacial de los ratones mejora cuando este HMO está presente en la alimentación de los ratones jóvenes.

Trasplante fecal

El trasplante fecal es una terapéutica para modular y restaurar/reequilibrar la microbiota de un receptor en caso de disbiosis. La indicación indiscutiblemente reconocida a día de hoy es la colitis por Clostridium refractaria o recurrente. Un estudio chino realizado por Zhang et al. en 11 niños, reveló una eficacia del 64 % después de una sola administración, mientras que el resto de los casos mejoraron tras 2-3 administraciones. En una segunda presentación, los mismos autores advertían sobre el riesgo de estos trasplantes, en particular en pacientes inmunodeprimidos. Se informó de efectos indeseables en un cuarto de los pacientes, pero sobre todo se observaron dos casos graves, uno de los cuales acabó en fallecimiento.

Simbióticos

El desarrollo de simbióticos probablemente representa una solución más reproducible en el futuro (sin variación en función de los donantes) y potencialmente menos peligrosa que el trasplante fecal. Durante el congreso, se puso de manifiesto el interés de los simbióticos, en concreto con un estudio realizado en Rusia por Larkova et al. (alergia alimentaria) y por Lin et al. (cirrosis hepática no alcohólica). Para esta última, los autores han demostrado el efecto protector en los ratones de un simbiótico para prevenir la fibrosis y la esteatosis en caso de una alimentación rica en grasas. Solos, los probióticos poseen efectos clínicos medibles. Durante el congreso, se demostró la eficacia de Lactobacillus rhamnosus GG para mejorar los síntomas en caso de alergia a las proteínas de la leche de vaca en un ensayo controlado y aleatorizado con brazo placebo realizado por Bastruk et al. La eficacia de ciertos probióticos para disminuir la duración de una gastroenteritis aguda fue recordada por Nardi et al, para reducir los efectos indeseables digestivos de los antibióticos por Moretti et al., y para las alteraciones digestivas funcionales de los lactantes por Nocerino et al.

Microbiota y enfermedades del tubo digestivo

Los síntomas de dispepsia son extremadamente frecuentes. A menudo se prescriben inhibidores de la bomba de protones. Acharyva et al. demostraron que el 60 % de los niños con síntomas digestivos que evocaban una patología esofágica o gástrica, presentaban una fermentación intestinal (SIBO o SII). Los autores sugieren que se realice una prueba de glucosa en caso de gastroscopia negativa en esos pacientes.

Varios autores han puesto de relieve la función de la microbiota en la enfermedad de Crohn, la mucoviscidosis y la intolerancia a la lactosa. En cambio, una revisión sistemática efectuada por Bezawada et al. no ha permitido demostrar la influencia de la microbiota en el autismo. Del mismo modo, Lukasik no ha podido demostrar la relación entre la administración de antibióticos en el período neonatal y el autismo.

Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
De vuelta del congreso