Adaptación de Escherichia coli comensales en el tracto intestinal de los niños de corta edad con mucoviscidosis

Artículo comentado - niño

By Pr. Emmanuel Mas
Gastroenterology and Nutrition Department, Children’s Hospital, Toulouse, France

Newsletter 4 - article 2

Comentario del artículo original de Matamouros et al. (PNAS 2018)

La microbiota del intestino humano maduro se establece durante los primeros años de vida, y la presencia de alteraciones en los microbiomas intestinales se ha asociado con diversos trastornos de salud. Habitualmente, Escherichia coli representa menos de un 1 % del microbioma intestinal humano. Sin embargo, en los casos de fibrosis quística (FQ) es habitual encontrar abundancias relativas superiores al 50 %, que van asociadas a la inflamación intestinal y la malabsorción de grasa fecal. A pesar de la proliferación de E. coli y de otras proteobacterias en condiciones ligadas a la inflamación crónica del tracto gastrointestinal, se sabe muy poco sobre la adaptación de las características específicas asociadas a la expansión clonal de la microbiota.

Este estudio ha demostrado que E. coli aisladas de muestras fecales procedentes de niños de corta edad con FQ se han adaptado a crecer en presencia de glicerol, un componente importante de la grasa fecal. Las cepas de E. coli aisladas de diferentes pacientes con FQ muestran una mayor tasa de crecimiento en presencia de glicerol que las E. coli procedentes de controles sanos, y cepas de E. coli de grupos con FQ no relacionadas han adquirido este rasgo de crecimiento de forma independiente. Además, las cepas de E. coli aisladas de los grupos con FQ y control presentan una expresión genética diferencial cuando se cultivan en medios mínimos, con glicerol como única fuente de carbono. Las cepas aisladas de los grupos con FQ muestran un perfil transcripcional que favorece el crecimiento, mientras que las cepas aisladas de los grupos control presentan estrés y programas de fase estacionaria, lo que se traducirá probablemente en una menor tasa de crecimiento. Estos resultados indican que hay una selección de características únicas en el microbioma de los individuos con FQ, lo cual podría contribuir al desarrollo individual de la enfermedad. [1]

¿Qué ya se sabe de este tema?

La principal alteración digestiva que provoca la mucoviscidosis es la insuficiencia pancreática exocrina, que está presente en un 85 % de los casos y requiere de la administración de suplementos de extractos pancreáticos. A pesar de esta suplementación, la malabsorción de grasas puede persistir. En general, el porcentaje de Escherichia coli en el microbioma intestinal humano es inferior al 1 %, pero su presencia puede llegar al 70-80 % en los casos de mucoviscidosis. Aunque hay una expansión clonal intrapaciente, las cepas son distintas entre individuos, lo que sugiere la existencia de una adaptación de E. coli a su entorno. Algunas cepas de E. coli están implicadas en la inflamación intestinal y el cáncer colorrectal. La mucoviscidosis va acompañada de inflamación digestiva, disbiosis y, en ocasiones, aumento del riesgo de cáncer colorrectal según los datos más recientes.

Los autores han propuesto la hipótesis de que en la mucoviscidosis se produce una selección de cepas de E. coli capaces de sobrevivir en medios intestinales con un elevado contenido en grasas y una mucosa anormal.

Imagen

¿Cuáles son los principales resultados brindados por este estudio?

Se aisló E. coli procedente de heces de 6 niños de corta edad que padecían mucoviscidosis y de 2 controles. Los autores evaluaron el crecimiento de estas bacterias en un medio mínimo cuya única fuente de carbono eran los suplementos de glucosa (GluMM) o glicerol (GlyMM). En las placas con GlyMM, el crecimiento de E. coli es más rápido en el caso de las cepas aisladas de niños con mucoviscidosis que en el de aquellas aisladas de los controles (Figura 1). Estas diferencias no se observaron en condiciones anaerobias. Dado que el medio intestinal es básicamente anaerobio, es posible que el oxígeno desempeñe un papel importante. Cerca del epitelio existe un gradiente mínimo de oxígeno.

El análisis genético demostró que las cepas de E. coli eran distintas. Por otra parte, las 8 cepas aisladas presentaban más de 11 000 SNP (single nucleotide polymorphisms, polimorfismos de un solo nucleótido) que aparecieron en uno o varios niños afectados por mucoviscidosis, pero que estaban ausentes en los controles. Se llevó a cabo el análisis transcriptómico (RNA-seq) en medio GluMM o GlyMM de cepas aisladas de 2 niños con mucoviscidosis y 2 controles, siendo seleccionadas estas cepas por su crecimiento en medio GlyMM y su posición en el árbol filogenético. Entre los genes con expresión diferencial, 213 presentaron sobreexpresión (absorción y metabolismo del glicerol) y 6 subexpresión (transporte celular de la glucosa) en medio GlyMM, tanto en niños con mucoviscidosis como en los controles. En medio GluMM hubo una expresión diferencial de solamente 20 genes entre los niños con mucoviscidosis y los controles, frente a los 405 genes en medio GlyMM (377 genes no inducidos en la mucoviscidosis) (Figura 2). Estos genes con subexpresión en casos de mucoviscidosis en medio GlyMM codificaban para proteínas implicadas en el estrés, la resistencia a los ácidos y la formación de biofilm. Los genes con sobreexpresión en los casos de mucoviscidosis o con subexpresión en los controles codificaban para proteínas implicadas en los mecanismos de crecimiento. En los casos de mucoviscidosis, el incremento del crecimiento en medio GlyMM no estaría relacionado con una reprogramación metabólica, sino con la pérdida de la inhibición del crecimiento y de la respuesta al estrés.

Imagen

Puntos clave

  • La mucoviscidosis va asociada a una disbiosis a nivel intestinal. Destaca sobre todo el incremento en la proporción de E. coli.

  • Debido a la malabsorción de grasas, se produce un aumento de glicerol a nivel intestinal. Estas cepas de E. coli seleccionadas en la mucoviscidosis se han adaptado a estas condiciones gracias a una expresión diferencial de algunos genes y una pérdida de la inhibición del crecimiento.

¿Cuáles son las consecuencias en la práctica?

Este estudio permite comprender los mecanismos implicados en la disbiosis asociada a la mucoviscidosis en lo que respecta a E. coli. Para corregir esta disbiosis y limitar la inflamación intestinal, al menos en parte, es importante optimizar la absorción intestinal de las grasas para reducir la cantidad de glicerol. Así, la mejora de la barrera intestinal, y especialmente de la mucosa, en esta enfermedad podría reducir la disponibilidad de oxígeno necesaria para el crecimiento de estas cepas de E. coli.
Conclusión

En casos de mucoviscidosis, la elevada cantidad de glicerol presente en el intestino como consecuencia de la malabsorción de grasas provoca la adaptación de E. coli y una proliferación clonal. La comprensión de los mecanismos subyacentes podría permitir el desarrollo de nuevos enfoques terapéuticos, además de mejorar el tratamiento de los enfermos.

Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
Artículo comentado

El papel de fusobacterium en el cáncer colorrectal

Artículo comentado - adulto

Por el Pr. Harry Sokol
Gastroenterología y nutrición, Hospital Saint-Antoine, París, Francia

Photo : The role of Fusobacterium in colorectal cancer

Comentario del artículo original Bullman et al. (Science 2017)

Los cánceres colorrectales presentan una mezcla compleja de células malignas, de células no transformadas y de microorganismos. Fusobacterium nucleatum se encuentra entre las especies bacterianas con mayor prevalencia en los tejidos del cáncer colorrectal (CCR).

En este artículo, los autores demuestran que la colonización de los CCR humanos por Fusobacterium y su microbioma asociado (incluidas las especies de los géneros Bacteroides, Selenomonas y Prevotella) se mantiene en las metástasis distales, lo que evidencia la estabilidad del microbioma entre los tumores primarios y los metastásicos similares. El análisis por hibridación in situ permitió observar que Fusobacterium aparece asociado principalmente a las células cancerosas en lesiones metastásicas. En xenotrasplantes en ratones de adenocarcinomas colorrectales primarios humanos, Fusobacterium y su microbioma asociado conservan la viabilidad a lo largo del proceso. El tratamiento con el antibiótico metronidazol en ratones con xenotrasplantes de cáncer de colon reduce la carga de Fusobacterium, la proliferación de células cancerosas y el crecimiento tumoral global. Estas observaciones hacen necesario un estudio más profundo de las intervenciones antimicrobianas como posible tratamiento para los pacientes que padezcan CCR asociado a Fusobacterium  [1].

¿Qué ya se sabe de este tema?

Se sabe que la microbiota asociada al cáncer influye en el desarrollo y la progresión del mismo, especialmente en el caso del CCR. La microbiota de los pacientes con CCR es disbiótica, y varios estudios realizados sin consideraciones preconcebidas han demostrado que existe un incremento en los niveles de F. nucleatum en el tejido canceroso y los adenomas, con respecto a los tejidos cólicos no cancerosos [2]. Estas observaciones han sido confirmadas por estudios en los que se evaluó a varias cohortes de pacientes con CCR en todo el mundo. Se han asociado niveles elevados de F. nucleatum con una menor infiltración de linfocitos T en los tumores (mientras que esta infiltración se considera un factor de pronóstico positivo) [3], con un estadio avanzado de la enfermedad, y con una menor supervivencia de los pacientes. Por otro lado, los pacientes con CCR asociado a F. nucleatum presentaban a menudo una localización cólica derecha del cáncer, una mutación del gen BRAF y una inestabilidad de los microsatélites. Estudios realizados con diversos modelos experimentales han sugerido la existencia de un papel protumorigénico de Fusobacterium, que potencia el crecimiento tumoral en modelos con ratones de CCR, en xenotrasplantes derivados de líneas celulares de CCR, y finalmente in vitro en líneas celulares de CCR. Los mecanismos propuestos van desde el incremento de la adhesión y la invasión de las células tumorales, hasta la modulación de la respuesta inmunitaria del huésped, o la activación de la vía del receptor tipo Toll 4. Sin embargo, algunos estudios a nivel animal o celular no han demostrado que Fusobacterium tenga un efecto carcinogénico [4].

¿Cuáles son los principales resultados brindados por este estudio?

Para determinar el papel de Fusobacterium y de su microbiota asociada en el CCR, los autores analizaron la microbiota de 5 cohortes independientes de pacientes con CCR. Mediante muestras congeladas (11 casos), la evaluación de la presencia de Fusobacterium por cultivo ofreció resultados positivos en más del 70% de las ocasiones, demostrando que la bacteria permanece viva dentro del tejido tumoral. Por otra parte, cuando se dispuso de tejido metastásico de buena calidad, Fusobacterium también aparecía en los cultivos. La investigación molecular (PCR cuantitativa) mostró una sensibilidad superior, con más del 80% y del 60% de resultados positivos en el caso de los tejidos primitivos y metastásicos, respectivamente. Los Fusobacterium identificados en los tejidos metastásicos eran los mismos que aparecían en la lesión primitiva. Además de Fusobacterium, se identificaron otras bacterias con un perfil similar, como Bacteroides fragilis o Bacteroides thetaiotaomicron, pero, a diferencia de Fusobacterium, las cepas identificadas en las metástasis eran distintas de las que se encontraron en la lesión primitiva. En una cohorte de 77 pacientes, los autores observaron que no existía relación alguna entre la presencia de Fusobacterium observada mediante cultivo y la recidiva tumoral. Para determinar si la presencia de Fusobacterium desempeña algún papel en la carcinogénesis, o si, por lo contrario, ejerce una función meramente testimonial en el proceso canceroso, los autores utilizaron diversos sistemas, como los xenotrasplantes de células tumorales humanas en ratones inmunodeficientes. Según sus observaciones, los tumores positivos a Fusobacterium se implantaban sin problemas en los ratones, algo que no ocurría en los tumores negativos a Fusobacterium. Por último, la aplicación de metronidazol, un antibiótico con gran actividad frente a Fusobacterium, reducía de forma significativa el crecimiento tumoral (Figura 1).

Imagen

Puntos clave

  • Fusobacterium está presente de forma viable en los tejidos primitivos y metastásicos de la mayoría de pacientes con CCR.

  • En los casos en los que está presente, Fusobacterium promueve el crecimiento tumoral.

  • En un modelo de ratón, el tratamiento antibiótico dirigido a Fusobacterium reduce de forma considerable el crecimiento de los tumores positivos a Fusobacterium.

¿Cuáles son las consecuencias en la práctica?

El tratamiento de las formas metastásicas del CCR continúa siendo un problema clínico importante. Este trabajo demuestra que algunas bacterias de la microbiota, y especialmente las pertenecientes al género Fusobacterium, presentan una persistencia viable y simultánea en el tumor primitivo y en los tejidos metastásicos de la mayoría de los pacientes, desempeñando un papel importante en la progresión del CCR. El uso de tratamientos antimicrobianos dirigidos a estas bacterias es, por tanto, una estrategia que debe tenerse en consideración, intentando siempre que la especificidad sea lo más alta posible, ya que otras bacterias podrían, contrariamente, tener un papel protector, e incluso estar implicadas en la respuesta a los tratamientos anticancerígenos clásicos y a las inmunoterapias [5].

Conclusión

Este estudio demuestra, en varias cohortes independientes, que Fusobacterium está presente y de forma viable en los tejidos primitivos y metastásicos de un porcentaje mayoritario de pacientes con CCR. Además, sugiere que Fusobacterium podría tener un papel facilitador de la progresión tumoral. Estas observaciones hacen necesario un estudio más profundo de las intervenciones antimicrobianas como posible tratamiento para los pacientes que padezcan CCR asociado a Fusobacterium.

Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
Artículo comentado

Abordar la microbiota intestinal para combatir las alergias

Síntesis

Por el Pr. Roberto Berni Canani, MD, PhD
Departamento de Ciencia Médica Traslacional; Laboratorio Europeo para la Investigación de las Enfermedades Provocadas por la Alimentación y Biotecnologías avanzadas CEINGE; Grupo de Trabajo sobre la Investigación de la Microbiota, Universidad de Nápoles “

Photo : Targeting the gut microbiota to combat allergies

La microbiota intestinal disbiótica desempeña un importante papel en la aparición de enfermedades alérgicas, sobre todo de las alergias alimentarias. La microbiota intestinal condiciona la maduración y el funcionamiento del sistema inmunitario, y los factores genéticos, ambientales y alimentarios podrían alterar la microbiota comensal y provocar así la desregulación de la función inmunitaria. Varios factores responsables de una disbiosis se han asociado a la aparición de alergias, como el parto por cesárea, la falta de lactancia materna, el uso de fármacos (principalmente antibióticos e inhibidores del ácido gástrico), el uso de antisépticos, y las dietas bajas en fibra y altas en grasas. Ningún taxón bacteriano concreto se ha asociado de manera sistemática a las alergias, pero los datos indican que las disbiosis intestinal ocurren incluso antes de la aparición de alergia. Los ácidos grasos de cadena corta (AGCC) son metabolitos fundamentales derivados de la microbiota intestinal que intervienen en la relación con el sistema inmunitario. Abordar la composición y el funcionamiento de la microbiota intestinal representa una estrategia prometedora contra las enfermedades alérgicas, y muy especialmente las alergias alimentarias infantiles.

La prevalencia, persistencia y gravedad de las enfermedades alérgicas y, en particular, de las alergias alimentarias (AA) ha aumentado sustancialmente en los últimos decenios en el mundo industrializado, presionadas por las interacciones entre los genes y el ambiente, y que provocan una disfunción del sistema inmunitario mediada, al menos en parte, por mecanismos epigenéticos [1, 2]. Este escenario cambiante ha dado lugar a un aumento de los ingresos hospitalarios, las consultas médicas, los tratamientos, y a una mayor carga asistencial de las familias. Todos estos factores ejercen un efecto significativo en los costes sociales y la calidad de vida, y suponen una gran carga psicológica para los pacientes y sus familias.

Las alergias alimentarias se caracterizan por una respuesta inmunitaria anómala hacia péptidos antigénicos alimentarios que normalmente son bien tolerados. La causa de las AA sigue sin estar bien definida. Partiendo de los conocimientos actuales, la susceptibilidad genética sola no puede explicar el patrón cambiante de las AA y ha habido un interés renovado por la función del ambiente en la sensibilización a los alimentos. Los datos apuntan a que las alteraciones de la microbiota intestinal (MI) (disbiosis) desempeñan un papel patogenético clave en la aparición de las alergias. Una MI sana tiene un efecto fundamental en el desarrollo del aparato digestivo y el sistema inmunitario. Una MI disbiótica está asociada a diversas enfermedades, entre ellas las alergias [3].

Importancia de la exposición microbiana para la tolerancia inmunitaria

Todavía no se ha definido del todo la manera en que los antígenos alimentarios se vuelven no inmunógenos a través de la tolerancia inmunitaria. Los datos permiten suponer un papel fundamental de los linfocitos T reguladores (Treg) que expresan el factor de transcripción Foxp3 (Treg Foxp3+), y de la compleja interacción entre la MI y las células inmunitarias y no inmunitarias. Para una tolerancia completa a los antígenos alimentarios es necesaria la presencia de poblaciones de Treg inducidas tanto por la alimentación como por microorganismos [4].

Durante el parto vaginal, los niños reciben su primer inóculo bacteriano del canal vaginal materno, el tejido cutáneo y, con frecuencia, materia fecal, que exponen al sistema inmunitario inmaduro a una importante carga bacteriana [3]. La maduración de una MI sana en las primeras etapas de la vida permite un cambio en el equilibrio Th1/Th2, al mismo tiempo que favorecen la respuesta celular Th1, mientras que la disbiosis altera la homeostasis huésped-microbiota y produce un desplazamiento del equilibrio de las citocinas Th1/Th2 hacia una respuesta de Th2 [5].

Los Treg se encuentran reducidos en ratones libres de gérmenes y en ratones que reciben una dieta basada en aminoácidos [4, 6]. Las IgA secretoras (IgAs) y los péptidos de la inmunidad congénita desempeñan una función fundamental en la regulación de la composición de la MI. Se ha observado deficiencia de inmunidad congénita y adquirida (sobre todo los valores bajos de IgA) en niños con múltiples AA [7]. Una MI sana que favorece la producción de IgAs facilita la supervivencia de las cepas bacterianas protectoras dentro de la luz intestinal [8].

La microbiota intestinal y las alergias

La expresión de un fenotipo alérgico depende de la interacción entre dos factores principales: la predisposición genética y las interacciones entre genes y ambiente. Un número creciente de estudios apunta a una correlación entre los factores que alteran la MI durante la infancia y la aparición de alergias en un momento posterior de la vida. Cada vez hay más pruebas de que la disbiosis de la MI en las primeras etapas de la vida constituye un factor fundamental en la aparición de las alergias.

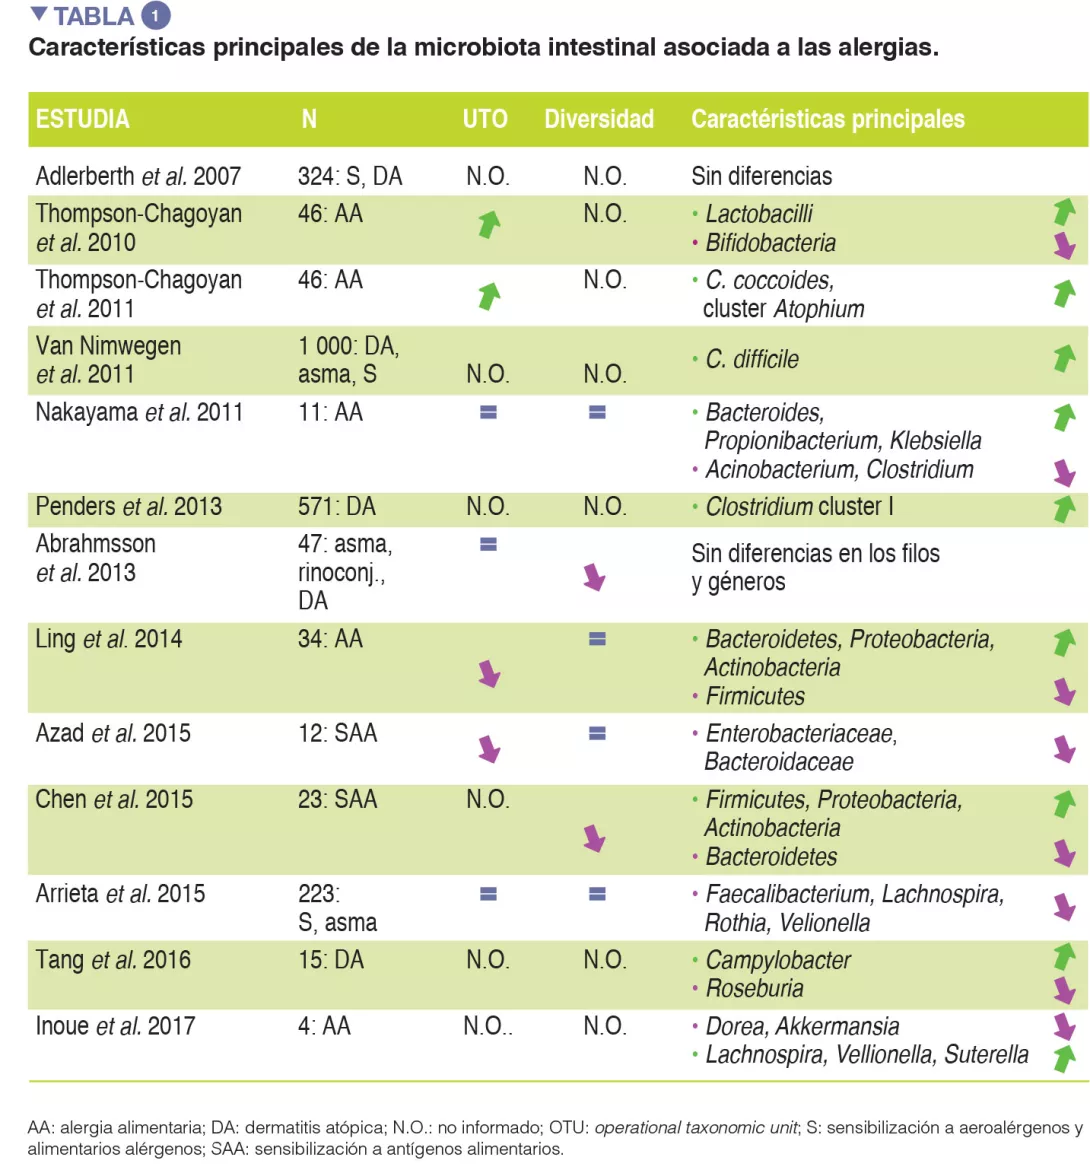
Los principales factores responsables de disbiosis son: nacimiento por cesárea, ausencia de lactancia materna, uso de fármacos (sobre todo antibióticos e inhibidores del ácido gástrico), uso de antisépticos, calendario de introducción de alimentos sólidos, y dietas basadas en comida basura o bajas en fibra/altas en grasas [3, 9]. También se ha publicado que el uso materno de antibióticos antes y durante el embarazo, así como los tratamientos crónicos durante los primeros meses de vida, está asociado a un mayor riesgo de alergias a la leche de vaca (ALV) en niños [10]. Los datos que podrían usarse para caracterizar la microbiota en los pacientes con AA son aún preliminares. Recientemente describimos una disbiosis de la MI en niños afectados de ALV mediada por IgE; los niños con ALV presentaban niveles significativamente reducidos de Bifidobacteriaceae, Streptococcaceae, Enterobacteriaceae y Enterococcaceae y niveles significativamente elevados de determinadas cepas de las familias de Ruminococcaceae y Lachnospiraceae. La MI de los pacientes con ALV estaba formada por un 73 % de los taxones Bacteroidetes y Firmicutes, de los que se sabe que también predominan en el intestino adulto [11].

Aunque están surgiendo pruebas abrumadoras de la asociación entre la disbiosis de la MI y las AA, la heterogeneidad del diseño de los estudios (por ejemplo en los momentos de recogida de muestras, los métodos utilizados para caracterizar la microbiota y los fenotipos alérgicos estudiados) ha dificultado la determinación de una relación causal entre taxones bacterianos específicos y la aparición de alergias. No hay taxones bacterianos específicos que se hayan asociado de manera uniforme a AA, y una gran variedad de microorganismos hallados en el intestino humano podrían intervenir en los mecanismos tolerógenos. Los datos principales de la MI asociada a alergias se resumen en la tabla 1

Imagen

La microbiota intestinal desempeña un papel central en la patogenia de las alergias

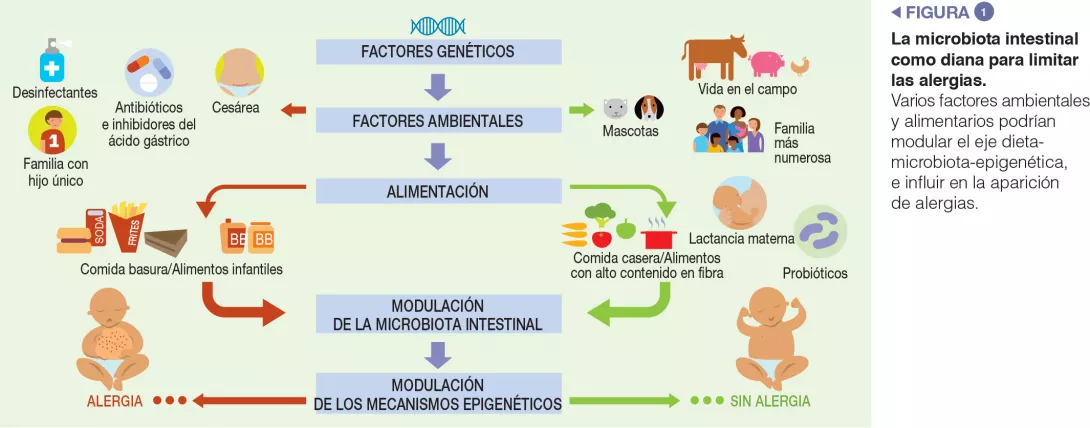
Los datos indican que el eje microbiota intestinal-epigenética, modulado por diversos factores ambientales y alimentarios, desempeña un papel importante en la aparición de alergias. Este eje regula varios mecanismos tolerógenos inmunitarios y no inmunitarios, y podría constituir la diana ideal para estrategias innovadoras, preventivas y terapéuticas contra las alergias.

Los AGCC constituyen los principales metabolitos de la MI que interaccionan con las células humanas. De entre los AGCC, el butirato tiene un papel fundamental en la inducción de inmunotolerancia, y se ha observado deficiencia de butirato en pacientes alérgicos [4]. Podría plantearse la hipótesis de que los diferentes tipos de disbiosis provocan efectos parecidos en términos de AGCC, o que la producción de otros metabolitos derivados de la microbiota puede facilitar la aparición de alergias. Especies de Clostridia, pertenecientes a los grupos IV y XIVa, constituyen la fuente predominante de AGCC en el colon. Los AGCC producidos por bacterias se han relacionado tanto con la regulación de la proporción como con la capacidad funcional de los Treg, que, en algunos estudios, se han atribuido específicamente a la producción de butirato por Clostridiales formadoras de esporas. Se ha observado un incremento de taxones de la clase Clostridia y del filo Firmicutes en sujetos humanos con resolución de ALV [9]. Los datos de nuestro laboratorio pusieron de manifiesto que el tratamiento con butirato oral provoca una inhibición espectacular de la respuesta alérgica aguda de la piel y de la valoración de síntomas anafilácticos, una temperatura corporal reducida, una mayor permeabilidad intestinal, y la producción de IgE de lactoglobulina anti-βLG (BLG), IL-4 e IL-10 en un modelo con ratones de ALV, lo que permite suponer que el butirato tiene un papel protector contra las AA [9]. El butirato presenta varios mecanismos de acción, pero muchos de ellos intervienen en la regulación epigenética de la expreexpresión génica a través de la inhibición de la histona desacetilasa (HDAC). La inhibición de la HDAC9 y 6 aumenta la expresión génica de FoxP3, así como la producción y la función supresora de los Treg [12]. Evaluamos los efectos directos del butirato en células mononucleares de sangre periférica (CMSP) de niños afectados por ALV mediada por IgE y demostrada mediante pruebas de desafío. Las CMSP fueron estimuladas con ALV en presencia o ausencia de butirato. Los resultados preliminares ponen de manifiesto que el butirato estimula la producción de IL-10 e IFN-γ y reduce la tasa de metilación del ADN de estas dos citocinas. La misma dosis efectiva de butirato induce desmetilación de la región promotora FoxP3 y un descenso de la expresión de HDAC6/HDAC9 [2].

Modulación de la microbiota intestinal asociada a las alergias

Los niños expuestos a entornos agrícolas presentan menos riesgo de aparición de alergias. Aunque no se ha demostrado de manera concluyente, una de las explicaciones plausibles del efecto protector asociado a dicha exposición en las primeras etapas de la vida es la función de la MI, ya que las personas expuestas a un entorno agrícola cuentan con una composición microbiana distinta a quienes tienen otros estilos de vida [3]. Otros factores epidemiológicos que protegen de las AA son la existencia de hermanos mayores y la exposición a mascotas en los primeros años de vida. Tener mascotas está asociado a una alta diversidad microbiana en el entornodoméstico. Un estudio reciente que examinó la influencia de los patrones alimentarios en la aparición de AA a los dos años de edad indica que los hábitos alimentarios podrían influir en la aparición de AA al alterar la composición de la microbiota intestinal. En concreto, una dieta infantil con niveles altos de fruta, verdura y comida casera se asoció a menos AA [9] (Figura 1).

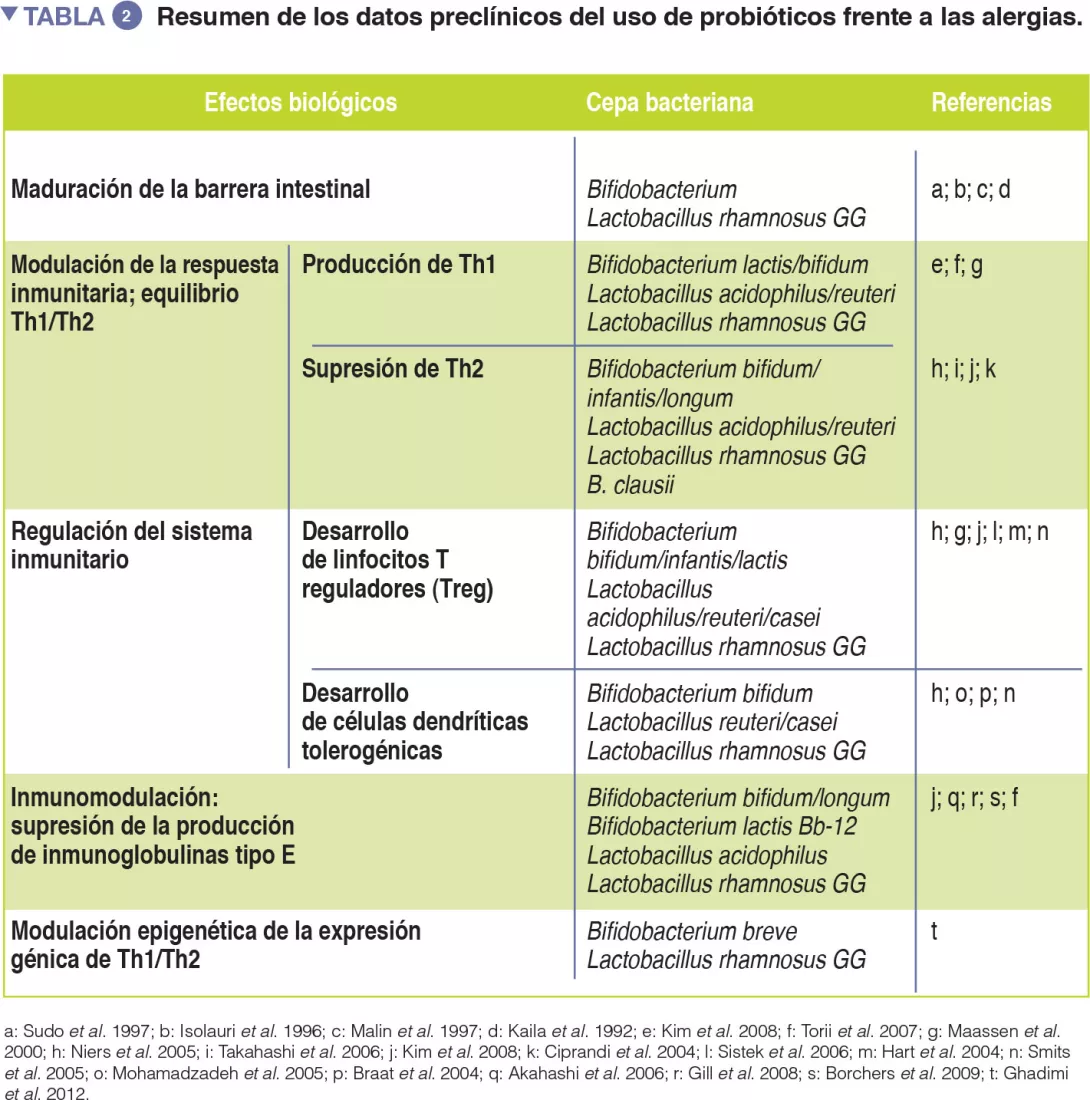
Los probióticos, definidos como microorganismos ingeridos que ofrecen beneficios para la salud del huésped, podrían ser beneficiosos para modular la MI [13]. Los datos sobre el uso de probióticos contra las alergias respiratorias siguen siendo preliminares (Tabla 2). Sin embargo, los metanálisis han revelado que el uso de determinados probióticos, desde la gestación hasta los seis primeros meses de vida, podría reducir la incidencia de eccema atópico en los niños con antecedentes familiares de enfermedad alérgica [14].

¿Cómo modular la microbiota intestinal?

Nuevos datos respaldan el uso de determinadas estrategias alimentarias y cepas probióticas para la prevención y el tratamiento de las alergias. (Tabla 2).

Imagen

Anteriormente hemos demostrado que la adición del probiótico L. rhamnosus una leche maternizada hipoalergénica acelera la adquisición de inmunotolerancia y protege frente a la aparición de otras manifestaciones atópicas en los niños con ALV [15-17]. Cuando comparamos la microbiota fecal de los niños que recibían este tratamiento probiótico inductor de tolerancia, hallamos correlaciones positivas significativas entre la abundancia de géneros bacterianos con potencial de producir butirato y la concentración de butirato fecal [11]. La identificación a nivel de cepa de los géneros productores de butirato (incluidos Roseburia, Coprococcus y Blautia) hallados en niños pequeños que adquirieron tolerancia a la leche de vaca, indican que el tratamiento con L. rhamnosus contribuye a la adquisición de tolerancia, alterando la estructura de la comunidad a nivel de cepas con taxones con potencial de producir butirato [11]. En consecuencia, se ha demostrado que la inmunoterapia oral junto al aporte complementario de otra cepa de L. rhamnosus es eficaz para frenar la reacción a los cacahuetes en el 82 % de los niños alérgicos [18].

Imagen

Conclusión

Los trillones de bacterias que habitan nuestro intestino regulan de manera fundamental funciones fisiológicas clave contra las alergias. Alteraciones de la composición y del funcionamiento de la MI inducidas por el ambiente (reducción de la producción de butirato, por ejemplo) dan lugar a una disbiosis que está vinculada con un mayor riesgo de alergia. El conocimiento del modo en que las comunidades bacterianas intestinales interactúan con el sistema inmunitario está abriendo el camino hacia nuevas estrategias terapéuticas preventivas de las alergias.

Bibliografia

1 Tanaka M, Nakayama J. Development of the gut microbiota in infancy and its impact on health in later life. Aller Internat 2017; 66: 515e522.

2 Paparo L, Di Costanzo M, Di Scala C, et al. The influence of early life nutrition on epigenetic regulatory mechanism of the immune system. Nutrients 2014; 6: 4706-19.

3 Berni Canani R, Gilbert JA, Nagler CR. The role of the commensal microbiota in the regulation of tolerance to dietary antigens. Curr Opin Allergy Clin Immunol 2015; 15: 243-9.

4 Smith PM, Howitt MR, Panikov N, et al. The microbial metabolites, short-chain fatty acids, regulate colonic Treg cell homeostasis. Science 2013; 341: 569-73.

5 Inoue Y, Shimojo N. Microbiome/microbiota and allergies. Semin Immunopathol 2015; 37: 57e64.

6 Kim KS, Hong SW, Han D, et al. Dietary antigens limit mucosal immunity by inducing regulatory T cells in the small intestine. Science 2016; 351: 858-63.

7 Sampath V, Sindher SB, Zhang W, et al. New treatment directions in food allergy. Ann Allergy Asthma Immunol 2018; 120: 254-62.

8 Bieber T, Cork M, Reitamo S. Atopic dermatitis: a candidate for disease-modifying strategy. Allergy 2012; 67: 969-75.

9 Aitoro R, Paparo L, Amoroso A, et al. Gut microbiota as a target for preventive and therapeutic intervention against food allergy. Nutrients 2017; 9: E672.

10 Metsälä J, Lundqvist A, Virta LJ, et al. Mother’s and offspring’s use of antibiotics and infant allergy to cow’s milk. Epidemiology 2013; 24: 303-9.

11 Berni Canani R, Sangwan N, Stefka AT, et al. Lactobacillus rhamnosus GG supplemented formula expands butyrate producing bacterial strains in food allergic infants. ISME J 2016; 10: 742-50.

12  Berni Canani R, Paparo L, et al. Differences in DNA methylation profile of Th1 and Th2 cytokine genes are associated with tolerance acquisition in children with IgE-mediated cow’s milk allergy. Clin Epigenetics 2015; 31: 7-38.

13 Hill C, Guarner F, Reid G, et al. The International Scientific Association for Probiotics and Prebiotics consensus statement on the scope and appropriate use of the term probiotics. Nat Rev Gastro Hepat 2014; 11: 506-14.

14 Cuello-Garcia CA, Brożek JL, Fiocchi A, et al. Probiotics for the prevention of allergy: A systematic review and meta-analysis of randomized controlled trials. J Allergy Clin Immunol 2015; 136: 952-61.

15 Berni Canani R, Nocerino R, Terrin G, et al. Effect of Lactobacillus GG on tolerance acquisition in infants with cow’s milk allergy a randomized trial. J Allergy Clin Immunol 2012; 129: 580-2; 582.e 1-5.

16 Berni Canani R, Nocerino R, Terrin G, et al. Formula selection for management of children with cow’s milk allergy influences the rate of acquisition of tolerance: a prospective multicenter study. J Pediatr 2013; 163:771-7.e1.

17 Berni Canani R, Di Costanzo M, Bedogni G, et al. Extensively hydrolyzed casein formula containing Lactobacillus rhamnosus GG reduces the occurrence of other allergic manifestations in children with cow’s milk allergy: 3-year randomized controlled trial. J Allergy Clin Immunol 2017; 139: 1906-1913.e4.

18 Tang ML, Ponsonby AL, Orsini F, et al. Administration of a probiotic with peanut oral immunotherapy: A randomized trial. J Allergy Clin Immunol 2015; 135: 737-44.e8.


Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
Artículos

La microbiota esofágica: ¿Causa o consecuencia de las enfermedades esofágicas?

Revisión de prensa

Por el Pr. Markku Voutilainen
Facultad de medicina de la Universidad de Turku; gastroenterología, Hospital Universitario de Turku, Finlandia

Illustration showing gastroesophageal reflux.

La enfermedad por reflujo gastroesofágico (ERGE) es habitual en los países occidentales. El endobraquioesófago (EBO), o esófago de Barrett, es una complicación de la ERGE y constituye el principal factor de riesgo de adenocarcinoma del esófago, que está asociado a una tasa de supervivencia a los cinco años de menos del 20 %.

Una revisión reciente ha analizado la función del microbioma esofágico en el esófago de Barrett y el cáncer de esófago [1]. El esófago está expuesto a los microorganismos orales deglutidos, así como a los del reflujo del contenido gástrico. La microbiota del esófago es diferente de la de la boca o del estómago. Las primeras bacterias detectadas en el esófago fueron Streptococcus viridans y los estreptococos del grupo D. Posteriormente, se identificaron seis filos mediante PCR universal ADNr 16S, en concreto Firmicutes, Bacteroidetes, Actinobacteria, Proteobacteria y Fusobacteria, siendo el género Streptococcus es el más representado. El esófago de Barrett y la displasia de alto grado se han asociado al número más elevado de bacterias. En los pacientes que presentaban una esofagitis y un esófago de Barrett, el número de Streptococcus había disminuido, mientras que el de las bacterias microaerófilas y anaerobias gramnegativas había aumentado.

El EBO y el adenocarcinoma del esófago están asociados a un número mayor de Escherichia coli. Otra especie gramnegativa detectada en los pacientes afectados por un cáncer de esófago es Fusobacterium nucleatum. Asimismo, una disbiosis bucal puede asociarse a un mayor riesgo de cáncer del esófago, mientras que la presencia de Helicobacter pylori en el estómago parece constituir una protección contra este cáncer. Una disbiosis gástrica caracterizada por un aumento de Clostridiales y Erysipelotrichaceae está asociada al carcinoma epidermoide del esófago. También se detectan frecuentemente hongos, como Candida albicans y C. glabrata, en las muestras esofágicas de los pacientes afectados por un adenocarcinoma del esófago. Un estudio epidemiológico ha mostrado una asociación dosis-dependiente entre el uso de la penicilina y el aumento del riesgo de cáncer de esófago. Los inhibidores de la bomba de protones también modifican las microbiotas gástrica y esofágica.

Los datos actuales sobre la microbiota esofágica provienen de poblaciones de pacientes de pequeño tamaño, seleccionadas, sintomáticas y provenientes de estudios transversales. Por lo tanto, no se puede extraer ninguna conclusión en cuanto a una posible relación de causalidad entre la microbiota esofágica y las enfermedades esofágicas. Solo una pequeña parte de los pacientes que presentan esófago de Barrett desarrollan un adenocarcinoma, y son necesarios estudios más avanzados para definir el papel de la disbiosis esofágica en la patogénesis del cáncer. También hay que evaluar el impacto de los inhibidores de la bomba de protones sobre la microbiota esofágica y sobre el riesgo de enfermedades esofágicas [1].

La esofagitis eosinofílica (EEo) es una enfermedad inflamatoria alérgica crónica que constituye la primera causa de disfagia en niños y jóvenes adultos de países desarrollados. La EEo presenta características inflamatorias comunes a las otras enfermedades alérgicas y es probable que la exposición a los alérgenos desempeñe un papel clave en la patogénesis de la EEo. Capucilli y Hill han analizado la epidemiología, la patogénesis y el tratamiento de esta enfermedad [2]. La microbiota esofágica podría estar implicada en la patogénesis de la EEo. Centenares de especies bacterianas colonizan el esófago, y los miembros de los filos Firmicutes y Bacteroidetes son los más corrientes [2]. En los pacientes que presentan una EEo activa, los géneros Streptococcus y Atopobiun disminuyen, mientas que Neisseria y Corynebacterium aumentan. Otro estudio ha mostrado que la cantidad total de bacterias esofágicas y la del género Haemophilus en particular aumentaban en la EEo. Los inhibidores de la bomba de protones utilizados en el tratamiento de la EEo producen un enriquecimiento del filo Proteobacteria. La carga bacteriana esofágica aumenta en los pacientes afectados por EEo, independientemente del tratamiento o de la severidad de la eosinofilia a nivel de la mucosa esofágica. Al igual que en otras enfermedades alérgicas y autoinmunes, la toma de antibióticos y el parto por cesárea se asocian a un mayor riesgo de EEo [2].

Conclusión

Los estudios realizados fueron transversales y no hay datos sobre la estabilidad de la microbiota esofágica en el tiempo. Son necesarios más estudios para definir la función de la microbiota esofágica en la patogénesis y la activación de la EEo.

Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
Revisión de prensa

El impacto de la microbiota de los padres en la salud de los hijos

Revisión de prensa

Par le Pr. Markku Voutilainen
Facultad de medicina de la Universidad de Turku; gastroenterología, Hospital Universitario de Turku, Finlandia

Photo : The impact of the parents’ microbiome on the descendants health

El intestino del niño es colonizado por las bacterias vaginales y fecales de la madre en el trascurso de un parto vaginal. La colonización microbiana del intestino empieza durante la vida fetal, aunque su papel es aun objeto de debate. Según la hipótesis de los orígenes del desarrollo de la salud y de las enfermedades (Developmental Origins of Health and Disease, DOHaD), es posible que las condiciones de vida fetal tengan un impacto en los primeros estadios de la vida del recién nacido y que sus perturbaciones aumenten el riesgo de enfermedades crónicas en el niño.

El profesor Friedman analizó la programación del desarrollo [1]. La obesidad, la diabetes y la alimentación occidental en la madre tienen un impacto en las células madre, el sistema inmunitario y la microbiota intestinal del niño. El intestino del recién nacido es colonizado, en primer lugar, por microorganismos aerobios y anaerobios facultativos, que a su vez son sustituidos por anaerobios estrictos. Este fenómeno modifica la señalización inmunitaria innata, las respuestas inmunitarias de las células T auxiliares y la tolerancia a las endotoxinas. La obesidad materna puede perturbar la colonización microbiana normal y aumentar el riesgo ulterior de enfermedades inmunológicas y metabólicas. La toma de antibióticos durante el embarazo aumenta el riesgo de obesidad en el niño. Los hijos de madres obesas presentan una menor cantidad de dos familias de proteobacterias fecales. Además, una alimentación rica en grasas en la madre provoca una pérdida de bacterias clave y disminuye la diversidad bacteriana de la microbiota fecal del niño.

El régimen alimenticio del padre también puede tener un impacto en el estado de salud de las siguientes generaciones. Zhang et al. han estudiado el impacto de una alimentación desequilibrada en un modelo animal [2]. Alimentaron a ratones machos de dos generaciones sucesivas (F0 y F1) con alimentos ricos en grasas, en sacarosa y en sal. El grupo control recibió una alimentación normal. La alimentación enriquecida se asoció a niveles más elevados de aspartato-aminotransferasa en la generación siguiente (F2). Una alimentación desequilibrada también se ha asociado a un peso corporal más elevado. En las hembras de la generación F2, el índice de Shannon de la microbiota intestinal indicaba una diversidad significativamente superior. La variación de la abundancia del género bacteriano se ha asociado a anomalías de la función hepática. La alimentación desequilibrada de las generaciones F0 y F1 se asoció a un aumento de los niveles séricos de colesterol y de lipoproteínas en los ratones macho de la generación F2.

Conclusión

Estos datos sugieren que una alimentación desequilibrada en los padres conlleva una disbiosis de la microbiota intestinal en los niños y que podría aumentar los riesgos de sobrepeso y de diferentes enfermedades crónicas (diabetes de tipo 2, enfermedades hepáticas y cardiovasculares).

Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
Revisión de prensa

Gut Microbiota for Health World Summit 2019

De vuelta del congreso

Por el Pr. Francisco Guarner
Unidad de investigación sobre el sistema digestivo, Hospital Universitaria Vall d’Hebron, Barcelona, España

EII

En su 8ª edición el pasado mes de marzo, el Gut Microbiota for Health World Summit 2019 otorgó un papel protagonista a la alimentación y a la manera en como interactúa con el microbioma intestinal, previniendo o favoreciendo enfermedades.

Alimentación y microbiota intestinal

La alimentación es un elemento esencial de las interacciones simbióticas entre los microbios intestinales y el huésped. Se considera como uno de los principales factores que conforman la microbiota intestinal a lo largo de la vida, según la revisión realizada por Jack A. Gilbert (UC, San Diego), Susan Devkota (Cedars-Sinai, Los Ángeles) y Lipping Zhao (Rutgers, Nueva Jersey). Los alimentos aportan numerosos sustratos para el metabolismo microbiano y la microbiota digestiva es una fábrica química que sintetiza los metabolitos importantes para la salud humana. Los macro y micronutrientes influyen en la estructura y las funciones del ecosistema microbiano intestinal. De hecho, la alimentación resulta ser el factor de impacto más importante en la construcción de una composición microbiana compartida en los seres humanos [1].

Los datos declarativos de los participantes en el proyecto American Gut relacionado con la alimentación [2] sugieren que el número de especies vegetales únicas consumidas tiene más influencia en la diversidad microbiana que los datos declarativos de los participantes del tipo “vegetariano” u “omnívoro”. Se ha descubierto una diversidad microbiana más elevada y una mayor abundancia de especies productoras de ácidos grasos de cadena corta (AGCC) en personas que consumen más de 30 tipos de plantas a la semana frente a las que comen menos de 10 tipos de plantas por semana. El metaboloma fecal también era diferente entre los dos grupos. Además, las personas que consumían más de 30 tipos de plantas presentaban una abundancia de genes de resistencia a los antibióticos significativamente menor respecto de las personas que consumían como máximo 10 tipos de plantas.

La disbiosis intestinal es un estado definible con implicaciones mecánicas. No corresponde a un simple cambio de la diversidad microbiana, sino a una ruptura del equilibrio recíproco entre la microbiota y el huésped, en la que una alimentación inadecuada desempeña un papel nocivo. En caso de homeostasis, el metabolismo de los colonocitos se orienta hacia una fosforilación oxidativa, que lleva aparejada un elevado consumo epitelial de oxígeno. La hipoxia epitelial resultante contribuye a mantener una comunidad microbiana dominada por los anaerobios obligatorios, que han resultado ser beneficios gracias a la conversión de las fibras en productos de fermentación (AGCC) absorbidos por el huésped. Los factores que modifican el metabolismo del epitelio, como una alimentación pobre en fibras, aumentan la oxigenación epitelial, produciendo así un aumento de los anaerobios facultativos, un elemento característico de la disbiosis cólica [3]. Este cambio de composición, común a numerosas enfermedades crónicas en los humanos, podría estar asociado a la disfunción de los colonocitos. Como destacó Susan Devkota, si se elige un régimen alimenticio estricto o extremo, el consumo de fibras mixtas puede conservar la microbiota y prevenir las carencias de nutrientes.

El “gremio de fundadores”

Lipping Zhao señaló que nuestros antepasados consumían muchas más fibras alimenticias que nosotros. La reducción de los aportes de fibras y la disminución de la prevalencia de las bacterias productoras de AGCC podrían explicar numerosas enfermedades crónicas como la diabetes de tipo 2. En un ensayo de intervención, controlado y aleatorizado, realizado en pacientes chinos con diabetes de tipo 2 [4], unos aportes elevados de diversas fibras alimenticias (régimen WTP) favorecieron de manera selectiva la abundancia de un grupo de cepas productoras de ácido acético y de ácido butírico en el intestino. El régimen WTP se basa en el consumo de cereales completos, de alimentos medicinales tradicionales chinos y de prebióticos. El régimen WTP mejoró la homeostasis de la glucosa reduciendo la hemoglobina glicada, la glucemia en ayunas y la hiperglucemia provocada por vía oral.

La abundancia de productores de AGCC en las heces correspondía a los resultados metabólicos y a los niveles en sangre del péptido similar al glucagón tipo 1 y del péptido YY, que inducen la secreción de insulina. Además, la reducción del pH fecal mediante la producción de AGCC se ha asociado a la inhibición de las bacterias nocivas que favorecen la inflamación y suprimen la producción del péptido similar al glucagón tipo 1. Además de proporcionar AGCC que son directamente beneficiosos para el huésped, este grupo de productores de AGCC ejercía funciones ecológicas importantes en la microbiota intestinal. Lipping Zhao sugirió que se trata como de una especie de “gremio de fundadores” para estructurar la microbiota intestinal sana. Para ayudar a los pacientes a recuperar una microbiota intestinal sana, “este gremio de fundadores debe reinocularse y restablecerse”, señaló.

FODMAP y SCI

Según la revisión realizada por Magnus Simren (Universidad de Göteborg), actualmente un 85 % de los médicos recomienda un régimen pobre en oligosacáridos, disacáridos, monosacáridos y polioles fermentables (fermentable oligosaccharides, disaccharides, monosaccharides and polyols, FODMAP) para el tratamiento de los trastornos funcionales del intestino. Los ensayos clínicos sugieren que ciertos pacientes tienen una respuesta favorable a corto plazo a un régimen pobre en FODMAP, pero no hay certeza de que esta pauta alimenticia sea claramente mejor que el tratamiento alimenticio de primera intención para el SCI. En concreto, la administración a corto plazo de un régimen pobre en FODMAP se ha asociado a cambios potencialmente desfavorables de la composición de la microbiota intestinal, en concreto una disminución de las especies que participan en la fermentación (Bifidobacterium, Faecalibacterium y Clostridium grupo XIVa) y un aumento de las puntuaciones del índice de disbiosis [5].

Un ensayo controlado aleatorizado comparó los efectos del régimen pobre en FODMAP y de los galactosacáridos (GOS) prebióticos en la composición de la microbiota intestinal [6]. Las evoluciones de la microbiota fecal fueron diferentes entre los dos grupos después de un periodo de 4 semanas de tratamiento, en concreto a nivel de las bífidobacterias (aumento en el grupo prebiótico y disminución en el grupo pobre en FODMAP) y Bilophila wadsworthia (perfil opuesto).

A pesar de estos efectos diferentes sobre la microbiota, las reducciones de los síntomas fueron muy similares en los dos grupos. Es interesante señalar que la disminución de los síntomas persistió durante el seguimiento de las 2 semanas posteriores a la suspensión del consumo de prebióticos, mientras que los síntomas reaparecieron inmediatamente después de suspender el régimen pobre en FODMAP. La modulación de la microbiota intestinal como estrategia terapéutica en el SCI parece prometedora, pero su inocuidad a largo plazo es un parámetro que hay que tener en cuenta. Los regímenes que reducen los síntomas pero deterioran la salud intestinal (y la salud general a largo plazo) no deben ser la primera elección.

Prevención y septicemia del recién nacido: los simbióticos a prueba

La septicemia en la primera infancia es responsable de un millón de fallecimientos al año en todo el mundo, la mayoría de ellos en países en vías de desarrollo. Pinaki Panigrahi presentó un estudio de intervención para prevenir la septicemia en lactantes en la India rural [7]. Una preparación simbiótica oral (Lactobacillus plantarum más fructooligosacáridos) redujo las septicemias y los fallecimientos de manera significativa en los recién nacidos (riesgo relativo: 0,60; intervalo de confianza del 95 %: 0,48–0,74).

Conclusión

Este resultado sugiere que una gran parte de las septicemias neonatales de los países en desarrollo podrían evitarse gracias a un tratamiento probiótico-prebiótico.

Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
De vuelta del congreso

Microbiota y fibrosis quística

Revisión de prensa

By Pr. Ener Cagri Dinleyici
Servicio de Pediatría, Facultad de Medicina, Universidad Eskisehir Osmangazi, Eskisehir, Turquía

La fibrosis quística es una enfermedad genética progresiva que ocasiona infecciones persistentes de las vías respiratorias inferiores y que se asocia a diferentes signos y síntomas sistémicos. Más de 70 000 personas la padecen en el mundo [1].

Los tipos y la severidad de los síntomas pueden variar considerablemente de un individuo a otro. Están principalmente vinculados a la edad que tenga el paciente así como a la que tenía en el momento del diagnóstico. Los niños y los adolescentes que padecen fibrosis quística presentan un amplio abanico de síntomas y signos, incluyendo manifestaciones gastrointestinales. Estudios recientes han demostrado que la disbiosis es una característica de la fibrosis quística, lo que ha dado lugar a trabajos sobre la relación entre la composición de la microbiota de las vías aéreas, las características clínicas y la función pulmonar en los enfermos [2]. La disbiosis de la microbiota intestinal asociada a la fibrosis quística puede estar vinculada a la evolución natural de la enfermedad (incluyendo una afección gastrointestinal o alteraciones de la microbiota respiratoria). Sin embargo, los pacientes necesitan varios ciclos de tratamiento antibiótico, los cuales pueden modificar la composición de la microbiota.

Estudios han demostrado que pacientes que sufren fibrosis quística generalmente presentan niveles menos elevados de Bifidobacterium spp., del grupo Bacteroides- Prevotella, del clúster XIVa de Clostridium, de Fecalibacterium prausnitzii y de Eubacterium rectale, mientras que los niveles de Enterobacteriaceae y de Clostridia aumentan. De Freitas y sus colaboradores han publicado recientemente, en la revista Plos One, un estudio que quiere evaluar el efecto de la fibrosis quística y de una antibioterapia en la composición de la microbiota intestinal en 19 niños y adolescentes enfermos con respecto a 17 pacientes control de la misma edad y del mismo sexo [3]. La concentración de calprotectina fecal (un marcador de la inflamación intestinal) era más elevado en el grupo afectado de fibrosis quística (independientemente del tratamiento antibiótico) en comparación con los controles sanos. Los autores han mostrado que los niveles de Bacteroides, de Firmicutes, de Eubacterium rectale y de Fecalibacterium prausnitzii se habían reducido de manera significativa, mientras que los niveles de Clostridium difficile, de Escherichia coli y de Pseudomonas aeruginosa habían aumentado significativamente en el grupo enfermo en comparación con los controles sanos. Las principales diferencias de composición de la microbiota entre los pacientes enfermos de fibrosis quística, independientemente del tratamiento antibiótico, se observaron en los Eubacterium rectale, Bifidobacterium, Escherichia coli, Firmicutes, Pseudomonas aeruginosa y Clostridium difficile. Los resultados de este estudio muestran que la composición de la microbiota intestinal en los pacientes afectados de fibrosis quística difiere de la de los controles sanos y que el uso frecuente de antibióticos no tiene efectos suplementarios en estas alteraciones.

Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
Revisión de prensa

Interacciones microbiota-medicamentos (otros que antibióticos): ¿amigos o enemigos?

Revisión de prensa

Por el Pr. Ener Cagri Dinleyici
Servicio de Pediatría, Facultad de Medicina, Universidad Eskisehir Osmangazi, Eskisehir, Turquía

Photo : Microbiota and non-antibiotic drugs interactions: friends or foes?

La mayoría de los estudios recientes que evalúan los efectos de los medicamentos en la composición de la microbiota intestinal se han referido al uso de los antibióticos en diferentes franjas de edad

Estudios anteriores han demostrado que la metformina, los inhibidores de la bomba de protones, los antiinflamatorios no esteroideos y los antipsicóticos atípicos tienen un efecto en la composición de la microbiota intestinal. Sin embargo, estos estudios han presentado resultados generales para clases de medicamentos y no para medicamentos específicos. Lisa Maier y su equipo han publicado los resultados de su nuevo estudio en la revista Nature en 2018 [1]. Su objetivo era clasificar más de 1 000 medicamentos que actúan sobre el microbioma (40 cepas de bacterias intestinales representativas). ¿La finalidad? Facilitar la realización de estudios clínicos y mecanísticos más en profundidad para mejorar el tratamiento y el diseño de los medicamentos. Maier et al. han demostrado que el 24 % de estos 1 000 medicamentos inhibían el crecimiento de al menos una cepa in vitro. Estudios recientes han sugerido que los efectos de los medicamentos en las bacterias intestinales se traducen en efectos secundarios que son similares a los de los antibióticos en el hombre.

El estudio de Maier ha puesto de relieve que la sensibilidad a los antibióticos y a los medicamentos seleccionados se correlaciona entre las especies bacterianas, lo cual sugiere mecanismos de resistencia comunes. Además, se ha puesto de manifiesto un riesgo potencial de que los medicamentos distintos de los antibióticos favorezcan una resistencia a los antibióticos. El uso generalizado de los medicamentos en el mundo podría estar asociado a la disbiosis, en particular en las sociedades occidentales modernas. Por otra parte, este ensayo reciente ha mostrado que la composición de la microbiota intestinal también puede modular la eficacia y la toxicidad de los medicamentos y podría constituir una nueva base para el desarrollo ulterior de moléculas. No obstante, se necesitan otros ensayos clínicos in vivo para comprender mejor el mecanismo de acción. Una identificación global de las interacciones entre agentes terapéuticos y microbiota intestinal ayudará a comprender con precisión los mecanismos subyacentes para estas interacciones y permitirá asegurarse de la inocuidad y eficacia de los tratamientos [2].

Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
Revisión de prensa

3a reunión de la fnm sobre la motilidad gastrointestinal

De vuelta del congreso

By Dr. Jari Punkkinen
Head of Endoscopy Unit, Porvoo Hospital, Department of Medicine, Finland

EII
Image1_Article5_Microbiota_NL-5_FR

Extractos seleccionados sobre el síndrome del intestino irritable (SII) y la microbiota intestinal.

Disbiosis de la microbiota intestinal y el síndrome del intestino irritable

La disbiosis de la microbiota y su vinculación con el síndrome del intestino irritable (SII) han sido analizadas a lo largo de diferentes sesiones de la conferencia. En particular, los catedráticos Magnus Simrén y Uday Ghoshal pusieron de manifiesto ciertas características asociadas a la composición de la microbiota en pacientes afectados por SII. Varios estudios han mostrado que la riqueza microbiana de los pacientes afectados por SII era menor que la de los sujetos sanos, que los Methanobacteriales podían no ser detectados y que la producción de metano era baja en esos pacientes [1]. Además, un subgrupo de pacientes con SII presentaba una disbiosis asociada a un aumento de los enterotipos Firmicutes y Bacteroides con respecto a los individuos sanos que presentaban un aumento de los enterotipos Clostridiales y Prevotella. No obstante, parece importante determinar qué bacterias se asocian al SII, pero también la razón de su presencia en el intestino y cómo intervienen en los mecanismos de hipersensibilidad visceral, de disfunción neuromotora, de aumento de la permeabilidad intestinal y de inflamación de bajo grado. Una proliferación bacteriana del intestino delgado (PBID, en inglés, SIBO: Small Intestinal Bacterial Overgrowth) puede ser la causa del SII en ciertos pacientes. El desafío actual consiste en mejorar la detección de esas PBID dado que el cultivo bacteriano a partir de una muestra de líquido de aspiración del intestino delgado obtenido por endoscopía es difícil de hacer y no siempre resulta posible [2]. El test de hidrógeno espirado (tras la ingesta de glucosa) puede usarse para identificar a estos pacientes; parece ser más preciso que el test de hidrógeno espirado (tras la ingesta de lactulosa).

Modulación de la microbiota intestinal en el síndrome del intestino irritable

¿La microbiota intestinal puede modificarse con fines terapéuticos? ¿Podría esto aliviar los síntomas del SII? La microbiota intestinal puede modularse usando antibióticos, probióticos, simbióticos, modificando la motilidad gastrointestinal, actuando sobre la dieta, y mediante trasplante fecal o bacteriófagos. Estas posibilidades se han analizado en las presentaciones de los catedráticos Uday Ghoshal y Giovanni Barbara. El impacto de los antibióticos es mejor en los pacientes con SII que presentan una PBID. En efecto, la norfloxacina y la rifaximina son significativamente más eficaces para reducir los síntomas del SII en los pacientes positivos para una PBID que en los negativos para una PBID.

En los pacientes afectados de SII que no presentan constipación, conforme a los estudios Target 1 y 2, la rifaximina alivia los síntomas globales del SII y la hinchazón abdominal. El estudio Target 3 y otros estudios han mostrado que la rifaximina podía ser usada de manera reiterada en caso de recidiva del SII-D (SII con diarrea predominante) sin pérdida de efecto ni manifestación de resistencia bacteriana [3, 4]. Además, la rifaximina reduce de manera transitoria la cantidad de bacterias en las heces pero también parece tener un efecto eubiótico, aumentando la abundancia de los Lactobacillaceae. Una dieta baja en FODMAP parece reducir los síntomas en algunos pacientes con SII, pero también ocasiona una reducción del número de bifidobacterias en las heces. En los pacientes con SII que siguen una dieta baja en FODMAP, la disbiosis aumenta, y, por ende, la sensibilidad al régimen alimentario puede predecirse por los perfiles bacterianos fecales. La eficacia del trasplante fecal en el SII sigue siendo controvertida dado que solo ha sido demostrada en uno de los dos grandes estudios controlados aleatorizados [5, 6].

Como lo ha indicado el catedrático Giovanni Barbara y, basándose en 53 ensayos controlados aleatorizados, el American College of Gastroenterology concluyó que los probióticos reducían los síntomas globales del SII, así como la hinchazón abdominal y las flatulencias [7]. Para reforzar el fundamento de esta recomendación serían precisos nuevos datos de alta calidad.

No obstante, todos los probióticos no son equivalentes. El catedrático Eamonn Quigley ha mostrado que Bifidobacterium infantis aliviaba los dolores abdominales, la hinchazón abdominal y las alteraciones del tránsito intestinal y que mejoraba la calidad de vida de los pacientes afectados por todos los subtipos de SII. La cepa también parece tener propiedades antiinflamatorias e inmunomoduladoras, dado que reduce los niveles de CRP y de TNFα en la psoriasis, el síndrome de fatiga crónica y la rectocolitis hemorrágica. Además, los resultados sugieren que, en asociación con Bifidobacterium longum , Bifidobacterium infantis también podría aliviar los síntomas depresivos asociados al SII.

Microbiota y eje intestino-cerebro

Los resultados de estudios preclínicos han mostrado que ciertos metabolitos bacterianos podían modificar la respuesta cerebral a ciertos estímulos. No obstante, el desafío consiste en trasladar esos estudios al plano clínico. El Dr. Huiying Wang mostró en su reciente estudio que la cepa Bifidobacterium longum modulaba la actividad cerebral durante el estrés social observado en el transcurso de una partida de Cyberball en voluntarios sanos basándose en una evaluación realizada mediante magnetoencefalografía y cuestionarios sobre la calidad de vida. Además de un efecto en las oscilaciones neuronales, la cepa también mejora la sensación de vitalidad y reduce la fatiga mental en comparación con el placebo a lo largo de un período de seguimiento de cuatro semanas. El catedrático Paul Enck describió la relación entre el estrés o la ansiedad y el SII como de doble sentido dado que los síntomas pueden ser al mismo tiempo causa y consecuencia del SII. Un estudio [8] desarrollado en pacientes con SII mostró que la presencia de Bifidobacterium longum estaba correlacionada con una reducción de los niveles de depresión y ansiedad; sin embargo, al ingresar al estudio, esos niveles no estaban lo suficientemente altos como para establecer un diagnóstico de depresión o ansiedad. Así, parece más apropiado decir que este probiótico afecta el humor más que la depresión o la ansiedad. Al igual que Bifidobacterium longum, la rifaximina modularía la actividad cerebral, aumentaría la relajación y reduciría la ansiedad en una situación de estrés social. Es lo que ha demostrado un ensayo doble ciego desarrollado en voluntarios sanos evaluados mediante magnetoencefalografía [9].

Bibliografia

1 Tap J, Derrien M, Törnblom H et al. Identification of an intestinal microbiota signature associated with severity of irritable bowel syndrome. Gastroenterology 2017; 152: 111-23.

2 Ghoshal UC, Sukla R, Ghoshal U. Small intestinal bacterial overgrowth and irritable bowel syndrome: a bridge between functional organic dichotomy. Gut Liver 2017; 11: 196-208.

3 Lembo A, Pimentel M, Rao SS et al. Repeat treatment with rifaximin is safe and effective in patients with diarrhea-predominant irritable bowel. Gastroenterology 2016;151;1113-21

4 Pimentel M, Cash BD, Lembo A et al. Repeat rifaximin for irritable bowel syndrome: no clinically significant changes in stool microbial antibiotic sensitivity. Dig Dis Sci 2017;62:2455-2463

5 Johnsen PH, Hilpüsch F, Cavanagh JP, et al. Faecal microbiota transplantation versus placebo for moderate-to-severe irritable bowel syndrome: a double-blind, randomised, placebo-controlled, parallel-group, single-centre trial. Lancet Gastroenterol Hepatol 2018; 3: 17-24.

6 Halkjær SI, Christensen AH, Lo BZS, et al. Faecal microbiota transplantation alters gut microbiota in patients with irritable bowel syndrome: results from a randomised, double-blind placebo-controlled study. Gut. 2018;67(12):2107-2115.

7 Ford AC, Moayyedi P, Chey WD, et al. American College of Gastroenterology Monograph on management of irritable bowel syndrome. Am J Gastroenterol 2018; 113: 1-18.

8 Pinto-Sanchez MI, Hall GB, Ghajar K, et al. Probiotic Bifidobacterium longum NCC3001 reduces depression scores and alters brain activity: a pilot study in patients with irritable bowel syndrome. Gastroenterology 2017; 153: 448-59.

9 Wang H, Braun C, Enck P. Effects of rifaximin on central responses to social stress – a pilot experiment. Neurotherapeutics 2018; 15; 807-8.

Summary
Off
Sidebar
Off
Migrated content
Désactivé
Updated content
Désactivé
Hide image
Off
De vuelta del congreso